
Macrolepiota konradii
Macrolepiota konradii
Odmiana gatunku Macrolepiota mastoidea
Essbar

Lege deinen Standort fest, um Daten für deine Region zu sehen.


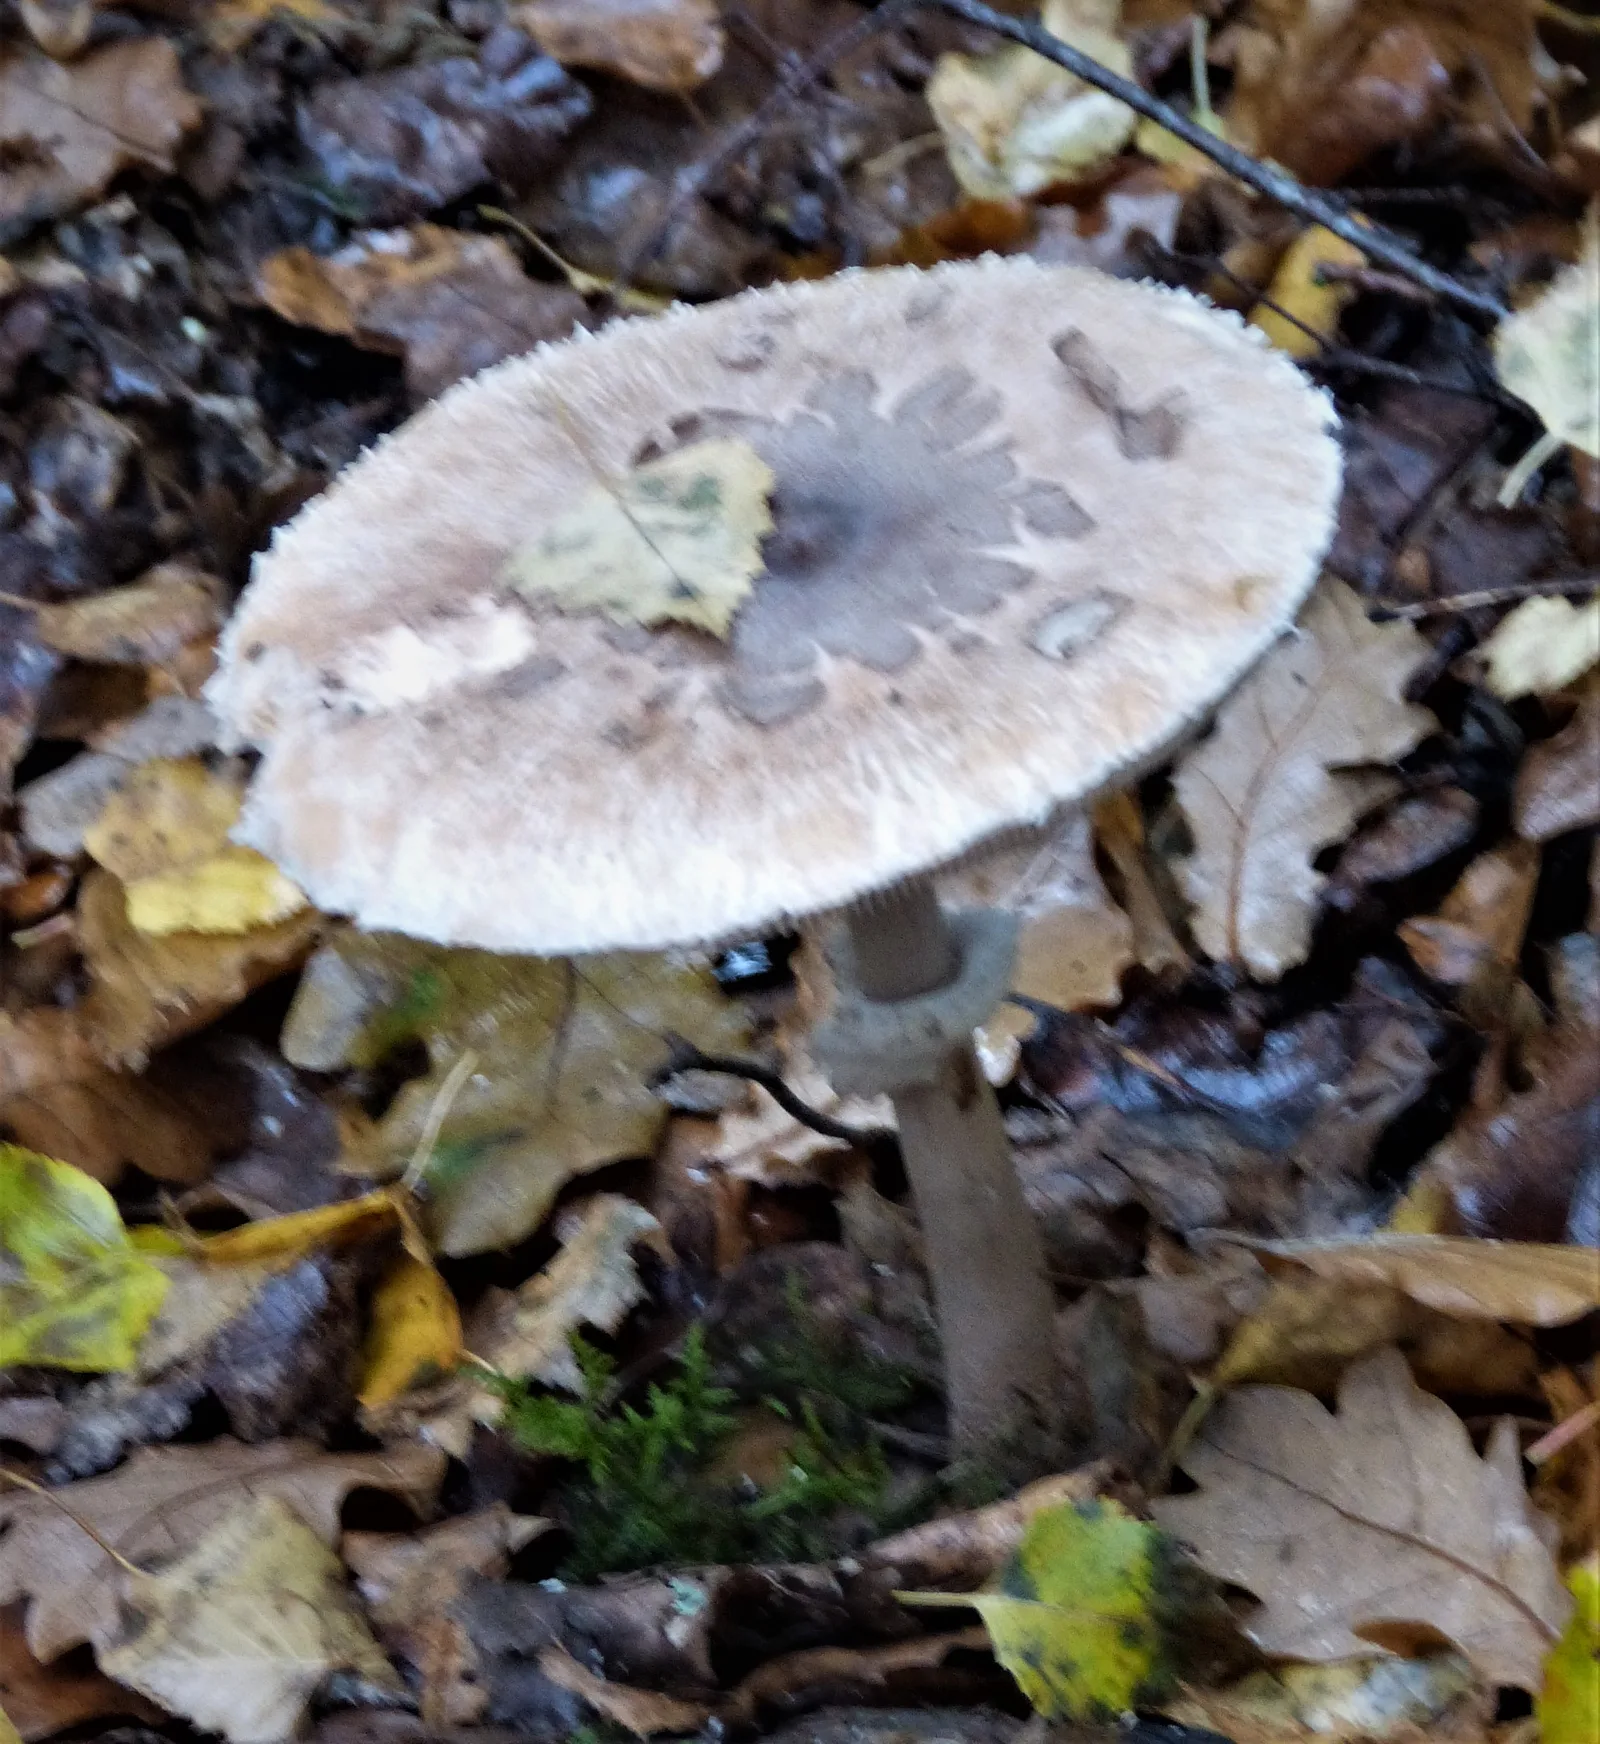
Der Sternschuppige Riesenschirmling ist ein stattlicher Lamellenpilz, dessen Erkennungszeichen die aufreißende Huthaut ist, die um die dunklere Mitte ein charakteristisches, sternförmiges Muster bildet. Er wächst auf einem schlanken Stiel mit verschiebbarem Ring und knolliger Basis. Obwohl er im Gelände durch sein kontrastreiches Muster ins Auge sticht, erfordert seine genaue Unterscheidung von verwandten Riesenschirmlingen die Beachtung zahlreicher anatomischer Merkmale und nicht nur der Zeichnung auf dem Hut.
Erkennung, Lebensraum und wichtigste Unterschiede.
Pilzsammler
Fruchtkörperaufbau
- Fruchtkörperform
- Fruchtkörperform: Hut.
Fruchtkörperform: Stiel.
Hut
- Hutform
- Hutform: halbkugelig.
Hutform: gewölbt.
bei jungen Fruchtkörpern: Hutform: eiförmig oder glockenförmig.
Hutform: kegelig.
Hutform: flach. - Hutbedeckung
- Hutbedeckung: schuppig (in Flecken, bräunlichgraue Bedeckung).
Hutbedeckung: schuppig (glatte Oberfläche der Bedeckung). - Hutfarbe
- Hutfarbe: weißlich (Grundfarbe).
Hutfarbe: weiß (Grundfarbe).
Hutfarbe: cremefarben (Grundfarbe). - Randbekleidung
- Randbekleidung: kahl.
Randbekleidung: schuppig. - Velumreste am Rand
- Velumreste am Rand: mit Velumresten.
- Hutdurchmesser
- Der Hutdurchmesser beträgt 50–120 mm.
- Hutmitte
- Hutmitte: mit deutlichem Buckel.
Hutunterseite
- Hymenophortyp
- Hymenophortyp: Lamellen.
Lamellen am Stielansatz
- Ansatz des Hymenophors am Stiel
- Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
- Farbe des Hymenophors
- Farbe des Hymenophors: weiß.
Farbe des Hymenophors: cremefarben. - Lamellenabstand
- Lamellenabstand: dicht stehend.
Stiel und Basis
- Stielform
- Stielform: zylindrisch.
- Stielbasis
- Stielbasis: knollig.
- Stielfarbe
- Stielfarbe: weißlich oder bräunlich.
- Überzug der Stieloberfläche
- Überzug der Stieloberfläche: schuppig.
Überzug der Stieloberfläche: faserig oder schuppig. - Muster der Stieloberfläche
- Muster der Stieloberfläche: zickzackförmig.
- Stiellänge
- Stiellänge: 60–150 mm.
- Stieldurchmesser
- Stieldurchmesser: 6–15 mm.
Ring
- Vorhandensein eines Rings
- Vorhandensein eines Rings: vorhanden (Anzahl der Ringe: 1, einfach gebaut).
- Ringfarbe
- Ringfarbe: bräunlich (Unterseite des Rings).
- Überzug der Ringoberfläche
- Überzug der Ringoberfläche: flockig (Rand des Rings).
- Beweglichkeit des Rings
- Beweglichkeit des Rings: verschiebbar.
Knolle
- Breite der Knolle an der Stielbasis
- Breite der Knolle an der Stielbasis: bis 25 mm.
Fleisch
- Fleischfarbe
- Fleischfarbe: weißlich.
- Fleischstruktur
- Fleischstruktur: faserig.
Wo und wann wächst er
- Wuchsweise der Fruchtkörper
- Wuchsweise der Fruchtkörper: einzeln oder in Gruppen.
- Fruchtzeit
- Die Fruchtkörper erscheinen von Juni bis November.
- Verbreitungsgebiet
- Potwierdzono występowanie w Polsce.
Essbarkeit und Küche
- Speisewert
- Essbar
Recht
- Schutzstatus
- Die Art steht in Polen nicht unter Artenschutz.
- Handel
- Die Art ist in Polen weder für den Handel noch für die Herstellung von Pilzerzeugnissen zugelassen.
Verwechslungsmöglichkeiten
Macrolepiota procera
Wichtigste Unterschiede
Der Parasol (Macrolepiota procera) bildet gewöhnlich deutlich größere Fruchtkörper. Sein Hut ist mit abstehenden, filzigen Schuppen bedeckt, und am reifen Stiel zeigt sich ein deutlich kräftigeres, quer verlaufendes Zickzackmuster.
Macrolepiota excoriata
Wichtigste Unterschiede
Der Ackerschirmling (Macrolepiota excoriata) unterscheidet sich vom Sternschuppigen Riesenschirmling durch einen deutlich helleren Hut und eine glatte Stieloberfläche, der feine bräunliche Schüppchen fehlen.
Macrolepiota mastoidea
Wichtigste Unterschiede
Der Warzenschirmling (Macrolepiota mastoidea) bildet feinere und dichter angeordnete Schuppen auf dem Hut und wächst häufiger an offenen, grasigen Standorten. Im internationalen Register Species Fungorum wird der Name M. konradii als Synonym von M. mastoidea geführt, während beide Taxa in vielen regionalen Atlanten separat beschrieben werden.
Der Sternschuppige Riesenschirmling (Macrolepiota konradii) zeichnet sich durch größere, spärlicher angeordnete Hutschuppen aus, die in einem charakteristischen sternförmigen Muster aufreißen, das sich von der feinen Schuppung des Warzenschirmlings unterscheidet. Obwohl er von einigen Autoren in den weiten Komplex Macrolepiota mastoidea einbezogen wird, stellt er in der Feldbeobachtung ein eigenständiges Taxon dar.
FAQ
Woher stammt der Name des Sternschuppigen Riesenschirmlings?
Er leitet sich vom charakteristischen Aufreißen der Huthaut ab, die sich um den dunkleren Scheitel in einer Form ausbreitet, die an die Zacken eines Sterns erinnert.
Ist der Sternschuppige Riesenschirmling ein Speisepilz?
In Pilzführern gilt er als essbar, doch aufgrund des hohen Risikos von Verwechslungen mit tödlich giftigen Knollenblätterpilzen oder Schirmlingen wird Sammlern ohne Fachwissen vom Sammeln abgeraten.
Wodurch unterscheidet er sich vom Parasol?
Er ist in der Regel kleiner und zarter, und sein Hut reißt im Gegensatz zu den feineren Schuppen des Parasols in größere, sternförmig angeordnete Schollen auf.
Bedeutet das Vorhandensein von Bäumen daneben, dass er mit ihnen eine Mykorrhiza bildet?
Nein. Die Nähe von Bäumen ist kein Beleg für eine Mykorrhiza – diese Art ist ein Saprobiont und bezieht Nährstoffe aus zersetzter Laubstreu und Humus.
In welchen Monaten kann man ihn in freier Natur antreffen?
Die Fruchtkörper erscheinen während der Saison von Sommer bis Herbst, in der Regel von Juli oder August bis Oktober, abhängig von der Feuchtigkeit der Streu und der Temperatur.
In welchen Lebensräumen wächst er am häufigsten?
Er kommt in Laub-, Nadel- und Mischwäldern, an Waldrändern, auf Waldlichtungen, in Gebüschen sowie in baumbestandenen Parks vor.
Bietet das sternförmige Muster auf dem Hut allein Sicherheit bei der Bestimmung?
Nein. Die morphologische Variabilität der Riesenschirmlinge ist groß, und eine sichere Bestimmung erfordert die Beurteilung aller Merkmale: Stiel, Ring, Lamellen sowie Mikroskopie.
Wie ist die Beziehung zwischen M. konradii und M. mastoidea?
In regionalen Ansätzen werden sie mitunter getrennt behandelt, aber in vielen modernen taxonomischen Quellen gilt M. konradii als Varietät oder Synonym von M. mastoidea.
Welche Teile des Fruchtkörpers eignen sich für einen eventuellen Verzehr?
Ausschließlich die Hüte nach gründlicher thermischer Behandlung. Die Stiele sind hart, holzig und unverdaulich, weshalb man sie immer verwirft.
Wie sieht der Ring am Stiel des Sternschuppigen Riesenschirmlings aus?
Er ist ausgeprägt, häutig und verschiebbar – man kann ihn vorsichtig am Stiel auf und ab schieben, ohne ihn vom Fruchtkörper zu trennen.
Liebhaber
Namen und Geschichte
- Obowiązująca nazwa krajowa
- Czubajka gwiaździsta
- Obowiązująca nazwa taksonomiczna
- Macrolepiota konradii
Heimische Beobachtungen
Sporenabwurf
- Benötigte Materialien
- frischer, reifer Hut, Blatt Papier, Glas oder Schälchen, Wasser
- Zeit
- 2–24 h
- Durchführung
- Den Hut mit der Unterseite auf das Papier legen.
- Einen Tropfen Wasser auf die Oberseite geben und abdecken.
- Hebe den Hut nach 2–24 Stunden an und betrachte den Sporenabdruck.
Wonach gesucht werden soll
- Sporenpulverfarbe
- Sporenpulverfarbe: weiß.
Unter dem Mikroskop
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Wasser, Sporen aus dem Sporenabwurf
- Durchführung
- Mit einer Nadel etwas Sporenabwurf auf den Objektträger übertragen.
- Einen Tropfen Wasser hinzufügen, mit dem Deckglas abdecken und die Sporen betrachten.
Wonach gesucht werden soll
- Sporenform
- Sporenform: ellipsoid. Sporenform: eiförmig.
- Sporenmaße
- Länge 11,5–17,2 µm, Breite 8–10,9 µm.
- Sporenmaße
- Länge 14,4 µm, Breite 9,6 µm.
- Sporenmaße
- Länge 14,3 µm, Breite 9,6 µm.
Maße erst nach Kalibrierung der Mikrosk解读enskala vergleichen.
Außerkulinarische Verwendungen
Kulinarisch werden ausschließlich die Hüte verwertet, da die Stiele zu zäh, holzig und faserig sind. Nach gründlichem Säubern werden sie meist paniert zubereitet oder in Butter gebraten, ähnlich wie andere größere Riesenschirmlinge. Dieser Pilz besitzt keine dokumentierten medizinischen oder industriellen Verwendungszwecke, und seine Bedeutung beschränkt sich auf das gelegentliche Hobbysammeln sowie einen ästhetischen Reiz in der Naturfotografie.
Geschichte und Kultur
Die Art wurde zu Ehren des Schweizer Mykologen Paul Konrad benannt. In der europäischen Literatur sorgt ihre systematische Stellung seit Langem für Diskussionen – in regionalen Bestimmungsbüchern wird sie teils als eigenes Taxon geführt, während ein Teil zeitgenössischer Register und Autoren sie als Form oder Synonym des Zitzen-Riesenschirmlings (Macrolepiota mastoidea) betrachtet. Aufgrund dieser nomenklatorischen Unklarheiten hat dieser Pilz keine tiefergehenden, eigenständigen Volkstraditionen herausgebildet.
Essbarkeit und Sicherheit
In der Fachliteratur wird er bisweilen als Speisepilz geführt und ähnlich wie der Parasol geschätzt, doch sein Sammeln birgt erhebliche Risiken. Das Vorhandensein von Lamellen, Ring und knolliger Stielbasis sind Merkmale, die er mit tödlich giftigen Knollenblätterpilzen teilt, und kleinere Fruchtkörper können leicht mit gefährlichen Schirmlingen verwechselt werden. Unzureichend durchgegarte Hüte können Magen-Darm-Beschwerden verursachen, weshalb Personen ohne Fachkenntnisse auf das Sammeln zu Speisezwecken verzichten sollten.
Lebensraum und Vorkommen
Fruchtkörper trifft man von Sommer bis Herbst in Laub-, Nadel- und Mischwäldern sowie auf Lichtungen, in Gebüschen und Parks an. Obwohl er in der Nähe verschiedener Bäume wächst, bedeutet die Anwesenheit von Buche, Eiche oder Kiefer keine Mykorrhizabeziehung – dieser Pilz ist ein Saprobiont, der organisches Material in Boden und Streu zersetzt. Er erscheint meist einzeln oder in kleinen Gruppen und bevorzugt lichtdurchflutete Stellen mit humusreichem Untergrund.
Forscher
Essbarkeit und Küche
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Speisewert
- Essbar
Źródło oznaczenia.
Marek Snowarski, atlas i GRej: Macrolepiota konradii / czubajka gwiaździsta · jadalne czy trujące?: Jadalna [105]. Nie jest to ocena surowych owocników ani wymóg gotowania.
Dosłowna ocena atlasowa jadalności — grzyby.pl i ČMS · Myko.cz / Kuchyňské využití: Je jedlá a chutná podobně jako bedla vysoká, jen trochu méně vydatná. Wtórny dosłowny odczyt.
Wissenschaftliche Namen und Taxonomie
- Gültiger wissenschaftlicher Name
Macrolepiota konradii
Czubajka gwiaździsta jest opisywana pod nazwą naukową Macrolepiota konradii (Huijsman ex P.D.Orton) M.M.Moser. Według Index Fungorum kombinację tę opublikował Moser w 1967 r. na stronie 185 trzeciego wydania Kleine Kryptogamenflora (tom 2b/2). Basionim Lepiota konradii został opublikowany w 1960 r. Przynależność do rodziny pieczarkowatych (Agaricaceae) potwierdzają Index Fungorum, czeski atlas mykologiczny oraz baza NCBI.
Zakres ujęcia tego taksonu różni się w zależności od bazy danych. W rekordzie Index Fungorum 317072 jako aktualna nazwa (Species Fungorum current name) figuruje Macrolepiota mastoidea (Fr.) Singer (1951). Z kolei baza NCBI prowadzi Macrolepiota konradii jako odrębny gatunek (taxid 90954), a polskie i czeskie atlasy traktują go w osobnych opracowaniach. Klasyfikacja NCBI nie stanowi jednak niezależnego autorytetu nomenklatorycznego, a same rozbieżności w bazach nie pozwalają na automatyczne utożsamienie wszystkich dawnych zbiorów, zdjęć i szczepów.
W historii taksonomii grzyb ten funkcjonował pod nazwami Lepiota konradii, Lepiota excoriata var. konradii oraz Macrolepiota procera var. konradii, które baza NCBI traktuje jako relacje homotypowe lub basionim. Dawne ujęcie w randze odmiany nie oznacza jednak, że każdy okaz oznaczony jako konradii mieści się we współczesnym ujęciu Macrolepiota procera. Atlas czeski przytacza również Macrolepiota gracilenta (Krombh.) Wasser; w rewizji de Koka i Vellingi z 1998 r. taksony M. gracilenta i M. rickenii włączono do kompleksu M. mastoidea.
W analizie filogenetycznej Ge, Yanga i Vellingi z 2010 r. sekwencje oznaczone jako Macrolepiota konradii trafiły do kladu /macrosporae obok M. mastoidea, M. excoriata, M. orientiexcoriata, M. phaeodisca, M. psammophila oraz M. subsquarrosa. Cały klad uzyskał maksymalne poparcie statystyczne (100% bootstrap, PP 1,00). Wysokie poparcie tej grupy potwierdza bliskie pokrewieństwo gatunków, lecz samo w sobie nie rozstrzyga o ich odrębności ani o synonimice.
Abgrenzung des Taxons und Bestimmungsgrenzen
Prawidłowe oznaczenie czubajki gwiaździstej wymaga łącznej oceny cech makroskopowych i mikroskopowych: układu płatów na kapeluszu, faktury trzonu, budowy i ruchomości pierścienia, wykształcenia blaszek, bulwy u nasady oraz parametrów zarodników. Sam „gwiaździsty” wzór pęknięć na kapeluszu nie wystarcza do pewnej identyfikacji taksonu.
- Zakres ujęcia taksonomicznego
Osobny wpis katalogowy 45 dla czubajki gwiaździstej, pod źródłową nazwą Macrolepiota konradii. Równorzędny z wpisem 44 w katalogowej grupie Macrolepiota mastoidea. GBIF ujmuje nazwę jako synonim; Blanco-Dios 2016 publikuje M. mastoidea var. konradii. Zachowano odrębne zakresy źródeł, okazów i szczepów. Historyczne błędne użycie konradii dla rhodosperma nie uzasadnia automatycznego łączenia danych. Członkostwo w grupie nie rozstrzyga formalnej rangi.
[1] [21]
Namen und Klassifikationsgeschichte
Karta České mykologické společnosti: Karta Czeskiego Towarzystwa Mykologicznego przedstawia takson pod nazwą Macrolepiota konradii i podaje jego synonimy.
de Kok i Vellinga (1998): Artykuł podaje, że M. konradii była rzadka w Holandii i opisuje historyczne, błędne użycie nazwy Lepiota excoriata subsp. mastoidea dla tego taksonu; nie wskazuje odrębnego eksykatu.
Ge i in. (2010): W artykule M. konradii występuje w drzewie filogenetycznym jako sekwencje z Holandii; nie należy do sześciu gatunków opisanych z materiału chińskiego.
Index Fungorum 317072: Rekord podaje kombinację M. konradii, basionym Lepiota konradii oraz powiązane pole bieżącej nazwy w Species Fungorum.
Publikacje Łopusiewicza i współautorów (2015–2016): Trzy zachowane rekordy publikacji wskazują M. konradii jako nazwę materiału badawczego. Jest to użycie nazwy w pracach o ekstraktach, nie rewizja taksonomiczna.
NCBI Taxonomy 90954: Rekord NCBI zachowuje nazwę M. konradii i listę synonimów; sam wskazuje, że nie jest autorytetem nomenklatorycznym.
Atlas Marka Snowarskiego: Pełna karta atlasowa używa nazwy Macrolepiota konradii i polskiej nazwy czubajka gwiaździsta.
Blanco-Dios (2016): Artykuł publikuje Macrolepiota mastoidea var. konradii, MycoBank MB818011, z basionym Lepiota konradii Huijsman ex P.D. Orton (1960).
Friebes (2013): Autor odróżnia pierwotne M. konradii sensu Orton od użycia tej nazwy przez Breitenbach i Kränzlin dla M. rhodosperma.
[11] [12] [16] [17] [18] [19] [9] [20] [21] [10] [15]Ökologie und Verbreitung
Labordiagnostik
Dane ustrukturyzowane
Sporen
- Mittleres Verhältnis von Sporenlänge zu Sporenbreite
- Mittleres Verhältnis von Sporenlänge zu Sporenbreite: 1,5 (Mittelwert). [21] [8]
Mittleres Verhältnis von Sporenlänge zu Sporenbreite: 1,5 (Mittelwert). [21] [8] - Sporenlänge
- Sporenlänge: 13–17 µm. [5]
Sporenlänge: 11,9–17,2 µm. [6]
Sporenlänge: 11,5–16,2 µm. [7]
Sporenlänge: 14,3 µm (Mittelwert). [7]
Sporenlänge: 14,4 µm (Mittelwert). [6] - Verhältnis von Sporenlänge zu Sporenbreite
- Verhältnis von Sporenlänge zu Sporenbreite: 1,3–1,7. [6]
Verhältnis von Sporenlänge zu Sporenbreite: 1,3–1,7. [7] - Dextrinoide Reaktion der Sporen
- Dextrinoide Reaktion der Sporen: dextrinoid. [5]
Untersuchungsmaterial und -methoden
Mikroskopische Daten — Quelle und Einschränkungen
Materiał: Źródłowa próba mikroskopowa GRej 375033, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]Materiał: Źródłowa próba mikroskopowa GRej 374428, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]- In den Quellen dokumentierte Ergebnisse — Sporenlänge
- Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 13–17 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,9–17,2 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,3 mikrometra. [7]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,4 mikrometra. [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,5–16,2 µm [7] - In den Quellen dokumentierte Ergebnisse — Verhältnis von Sporenlänge zu Sporenbreite
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [7] - In den Quellen dokumentierte Ergebnisse — Sporenbreite
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,5 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [7]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,9 µm [7]
Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 8–10 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [6]
Metody i zapisy źródłowe — Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „13–17 × 8–10 µm” [5]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „Dekstrynoidalne, czerwonobrązowe w Melzerze.” [5]
Kształt zarodnika — zapis źródłowy: „Eliptyczne lub jajowate.” [5]
Metody i zapisy źródłowe — GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017129.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 374428: 11,9–16,8 –17,2! × 8,3–10,5 µm; średnio 14,4 × 9,6 µm!; Q 1,3–1,7, średnio 1,5!” [6]
Metody i zapisy źródłowe — GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017123.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 375033: 11,5–16,2 × 8,3–10,9 µm; średnio 14,3 × 9,6 µm; Q 1,3–1,7, średnio 1,5” [7]
Vergleiche, Merkmale und Quellenmaterial
Česká mykologická společnost: Karta opisuje cechy M. konradii i możliwe pomyłki. Dwa numery Nálezy wskazują wpisy z kraju środkowoczeskiego; karta nie podaje dla nich numeru zielnikowego.
de Kok i Vellinga (1998): Pełny artykuł wskazuje historyczne błędne użycie nazwy przy omawianiu M. mastoidea; po przeszukaniu wszystkich stron nie przedstawiono odrębnego opisu diagnostycznego ani oznaczonego eksykatu M. konradii.
Ge i in. (2010): Autorzy uwzględniają M. konradii w analizie filogenetycznej, ale opisują morfologicznie sześć innych gatunków z Chin; trzy holenderskie sekwencje mają odrębne pochodzenie od materiału chińskiego opisanego w części metodycznej.
Łopusiewicz (2016), próba nasion: Szczep pochodził z owocnika zebranego we wrześniu 2013 r. w lesie mieszanym koło Kobylanki. Tkankę trzonu przeniesiono na PDA; hodowlę płynną prowadzono trzy tygodnie w 25 °C przy 150 obr./min. W teście kukurydzy i fasoli układano po 10 nasion na krążku bibuły, dodając 5 ml ekstraktu chloroformowo-acetonowego o stężeniu 10, 50 lub 100 mg/ml; kontrola otrzymywała wodę. Długość korzeni oceniano w dniach 3, 4, 5 i 8.
Łopusiewicz i Lisiecki (2015): Zachowany wtórny zapis wskazuje Kobylankę, wrzesień 2013 r. i szczep izolowany z trzonu; numer zielnikowy, potwierdzenie DNA i liczba niezależnych kultur nie zostały podane.
Atlas i wpisy GRej Marka Snowarskiego: Atlas zawiera opis, porównania i 26 wpisów GRej. Wzmianki o roślinach rosnących w pobliżu opisują kontekst miejsca, nie potwierdzają gospodarza mikoryzowego.
Blanco-Dios (2016): Na stronie 27 cechy trzonu i cebulowatej podstawy M. konradii są przedstawione jako wcześniejsze doniesienia cytowanych autorów; nie są nową obserwacją vouchera.
Friebes (2013): Klucz na stronie 21 opisuje pierwotne M. konradii jako takson o ciemnych, grubych łuskach kapelusza i wyraźnym garbku; użycie nazwy dla M. rhodosperma pozostaje oddzielne.
Okaz BGF0017129: Zapis badania łączy GRej 374428 z eksykatem BGF0017129, zbiorem 4 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Okaz BGF0017123: Zapis badania łączy GRej 375033 z eksykatem BGF0017123, zbiorem 18 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Łopusiewicz i Mizielińska (2016), powłoki PLA: Badano szczep czubajki z okolic Kobylanki oraz bakterie E. coli DSMZ 1576, S. aureus DSMZ 346, M. luteus DSMZ 20729 i B. atrophaeus DSMZ 675. Filtrat hodowli ekstrahowano mieszaniną chloroformu, acetonu i octanu etylu 3:2:1. Porównano czystą folię PLA, folię z 10% etylocelulozą oraz powłokę zawierającą ekstrakt. Warstwę 100 µm suszono 20 minut w 45 °C; ocenę wykonano według ASTM E 2180-01 i metodą dyfuzyjno-krążkową.
[11] [12] [16] [18] [19] [21] [10] [15] [6] [7] [9]Überprüfung des Vorkommens — Umfang und Grenzen
Materiał: Dwa wpisy atlasowe 0066-2024-0264 i 0066-2019-0200 ze Středočeskiego kraju, odpowiednio z 10 października 2024 r. i 20 października 2019 r.
Zakres odczytu: Pełny tekst.
Data przeglądu: 27.10.2026.
[11]Bearbeitungsumfang
Vor dem Abschluss muss der Datensatz ergänzt oder müssen offene Prüfungen abgeschlossen werden.
- Die erfassten Quellenangaben müssen noch geklärt werden.
- Die bei der Durchsicht der neuen Quellen gefundenen Angaben müssen noch geprüft und geklärt werden.
Noch zu klärende Angaben: 12
Rechtsgrundlage und Bewertungsumfang
Vorschriften für Standort: Polen
Wichtigste Inhaltsstoffe und ihre Wirkung
Badania biochemiczne dotyczyły wyciągów uzyskanych z płynu pohodowlanego grzybni oznaczonej jako Macrolepiota konradii. Pomiary te charakteryzują mieszaniny metabolitów wydzielanych do podłoża i nie określają całościowego składu chemicznego owocników rosnących w naturze.
W pracy Łopusiewicza i Lisieckiego (2015) grzybnię wyizolowano z tkanki trzonu owocników zebranych w Kobylance we wrześniu 2013 r. Pierwotną izolację prowadzono na agarze glukozowo-ziemniaczanym (PDA) z dodatkiem 50 mg/l chloramfenikolu w temperaturze 25 °C. Po oczyszczeniu kultury przechowywano w 4 °C, a przed zaszczepieniem hodowli płynnej pasażowano na podłoże PDA bez antybiotyku.
Podłoże płynne w badaniu z 2015 r. zawierało w 1 l wody: 20 g glukozy, 10 g peptonu, 10 g ekstraktu drożdżowego, 0,5 g MgSO₄·7H₂O oraz 1 g K₂HPO₄. Do kolb o pojemności 500 ml wlewano 250 ml pożywki i szczepiono fragmentem agaru PDA z grzybnią o wymiarach 1 × 1 cm. Hodowlę prowadzono przez 21 dni w temperaturze 25 °C na wytrząsarce IKA KS 4000 przy 150 obr./min. Kontrolę stanowiła sterylna pożywka bez grzybni.
Płyn pohodowlany sączono przez filtr o porach 0,2 µm. Do 25 ml filtratu dodawano 25 ml mieszaniny chloroformu, acetonu i octanu etylu w stosunku 3:2:1 (v/v), mieszano przez godzinę przy 300 obr./min, po czym rozdzielano warstwy (określone przez autorów jako dolna warstwa octanowo-etylowa i górna chloroformowo-acetonowa). Rozpuszczalniki odparowywano w 60 °C do zaniku zapachu, a suchy ekstrakt rozpuszczano w 1% roztworze DMSO do stężenia 200 mg/ml (mieszanie przez 30 min przy 100 obr./min w temperaturze pokojowej).
W teście dyfuzyjno-studzienkowym z 2015 r. stosowano płytki Petriego 90 mm z 20 ml agaru Mueller–Hinton oraz 200 µl inokulum bakteryjnego o gęstości 5 w skali McFarlanda. Do trzech studzienek o średnicy 8 mm wprowadzano po 150 µl ekstraktu o stężeniu 200 mg/ml. Płytki poddawano 2-godzinnej predyfuzji w 4 °C, po czym inkubowano przez 24 h w 37 °C. Jako kontrolę negatywną stosowano ekstrakt ze sterylnej pożywki, a jako kontrolę dodatnią – chloramfenikol o stężeniu 0,05 mg/ml.
W próbie dyfuzyjnej ekstrakt o stężeniu 200 mg/ml wytworzył następujące strefy zahamowania wzrostu bakterii:
- Escherichia coli (DSMZ 1576): 16 mm,
- Staphylococcus aureus (DSMZ 346): 17 mm,
- Staphylococcus epidermidis (CBIMO): 18 mm,
- Micrococcus luteus (DSMZ 20729): 36 mm,
- Bacillus cereus (CBIMO): 0 mm,
- Bacillus athrophaeus (DSMZ 675 IZT): 0 mm.
W tym samym badaniu przetestowano sześć gatunków grzybów mikroskopowych: Aspergillus clavatus, Aspergillus niger, Botrytis cinerea, Mucor sp., Penicillium chrysogenum oraz Rhizopus sp. Na podłożu Sabourauda z inokulum zarodników (100 µl zawiesiny w soli fizjologicznej z 0,1% Tween 80), po naniesieniu po 150 µl ekstraktu do studzienek i inkubacji przez 48 h w 25 °C (z 2-godzinną predyfuzją w 4 °C), nie stwierdzono żadnych stref zahamowania wzrostu testowanych grzybów.
W teście przeżywalności bakterii w bulionie Mueller–Hinton ekstrakt (200 mg/ml) dozowano w objętościach od 2,5 do 375 µl (odpowiednio 2,5, 25, 50, 125, 175, 250, 300 i 375 µl). Po odparowaniu rozpuszczalnika w 50 °C dodawano 450 µl bulionu oraz 50 µl zawiesiny bakteryjnej o gęstości 0,5 McFarlanda (ok. 1,5 × 10⁸ CFU/ml). Po 24 h inkubacji w 37 °C wykonywano seryjne rozcieńczenia (10⁻¹–10⁻⁹ w 0,9% NaCl) i posiewano po 100 µl w trzech powtórzeniach na płytki 55 mm, inkubując kolejne 24 h w 37 °C. W metodyce wymieniono stężenia 1–150 mg/ml, a w tabeli wyników ujęto dodatkowo stężenie 170 mg/ml.
Liczba jednostek tworzących kolonie (CFU/ml) po inkubacji z ekstraktem w badaniu z 2015 r.:
- 0 mg/ml (kontrola): E. coli 200 000 000 CFU/ml; S. aureus 175 000 000 CFU/ml,
- 1 mg/ml: E. coli 129 000 000 CFU/ml; S. aureus 145 000 000 CFU/ml,
- 10 mg/ml: E. coli 124 000 000 CFU/ml; S. aureus 128 000 000 CFU/ml,
- 20 mg/ml: E. coli 71 000 000 CFU/ml; S. aureus 1 800 000 CFU/ml,
- 50 mg/ml: E. coli 16 600 CFU/ml; S. aureus 240 000 CFU/ml,
- 70 mg/ml: E. coli 13 200 CFU/ml; S. aureus 91 000 CFU/ml,
- 100 mg/ml: E. coli 9 500 CFU/ml; S. aureus 11 500 CFU/ml,
- 120 mg/ml: E. coli 7 100 CFU/ml; S. aureus 9 600 CFU/ml,
- 150 mg/ml: E. coli 6 400 CFU/ml; S. aureus 6 500 CFU/ml,
- 170 mg/ml: E. coli 5 500 CFU/ml; S. aureus 4 000 CFU/ml.
W podsumowaniu badania autorzy określili spadek liczby żywych bakterii jako redukcję o około pięć rzędów wielkości (przy 150 mg/ml dla E. coli i 120 mg/ml dla S. aureus). Dokładne wyliczenie logarytmiczne ze stężeń w tabeli daje spadek o 4,49 rzędu wielkości dla E. coli oraz 4,26 dla S. aureus.
Wydajność suchego ekstraktu pohodowlanego podana przez badaczy wyniosła 25,25 g/l. W doświadczeniu masa krystalizatora wzrosła z 78,26 g do 82,15 g (przyrost o 3,89 g) po odparowaniu 154 ml ekstraktu.
W pracy Łopusiewicza z 2016 r. badano właściwości fitotoksyczne frakcji chloroformowo-acetonowej z hodowli płynnej szczepu z Kobylanki (hodowla 21 dni w 25 °C przy 150 obr./min, pożywka o tożsamym składzie soli, peptonu, glukozy i ekstraktu drożdżowego, ekstrakcja w układzie 3:2:1 i odparowanie w 60 °C). Roztwór podstawowy przygotowano w 1% DMSO w stężeniu 200 mg/ml.
Test fitotoksyczności przeprowadzono na nasionach fasoli zwyczajnej (Phaseolus vulgaris) oraz kukurydzy (Zea mays) firmy Semas. Nasiona odkażano w 50 ml 50% etanolu przez 1 min, trzykrotnie płukano sterylną wodą i wykładano na bibułę w szklanych płytkach Petriego po 10 sztuk. Podawano po 5 ml ekstraktu o stężeniu 10, 50 lub 100 mg/ml, a próba kontrolna otrzymywała 5 ml sterylnej wody destylowanej. Inkubację prowadzono w temperaturze pokojowej, mierząc długość korzeni w 3, 4, 5 i 8 dniu.
W 8. dniu testu zanotowano następujące skrócenie średniej długości korzeni siewek w porównaniu z kontrolą wodną:
- kukurydza przy 10 mg/ml: 55,06%,
- kukurydza przy 50 mg/ml: 63,39%,
- kukurydza przy 100 mg/ml: 91,07%,
- fasola przy 10 mg/ml: 20,00%,
- fasola przy 50 mg/ml: 46,95%,
- fasola przy 100 mg/ml: 94,61%.
Średnia długość korzeni siewek kukurydzy w poszczególnych dniach pomiaru kształtowała się następująco:
- kontrola (0 mg/ml): dzień 3 – 6,5 mm; dzień 4 – 13,1 mm; dzień 5 – 20,6 mm; dzień 8 – 33,6 mm,
- ekstrakt 10 mg/ml: dzień 3 – 2,1 mm; dzień 4 – 4,6 mm; dzień 5 – 10,2 mm; dzień 8 – 15,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 0,4 mm; dzień 4 – 3,4 mm; dzień 5 – 9,3 mm; dzień 8 – 12,3 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 0,0 mm; dzień 5 – 0,3 mm; dzień 8 – 3,0 mm.
Średnia długość korzeni siewek fasoli w poszczególnych dniach pomiaru wynosiła:
- kontrola (0 mg/ml): dzień 3 – 6,25 mm; dzień 4 – 21,0 mm; dzień 5 – 28,5 mm; dzień 8 – 35,25 mm,
- ekstrakt 10 mg/ml: dzień 3 – 6,9 mm; dzień 4 – 15,4 mm; dzień 5 – 21,3 mm; dzień 8 – 28,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 1,3 mm; dzień 4 – 9,0 mm; dzień 5 – 16,4 mm; dzień 8 – 18,7 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 1,5 mm; dzień 5 – 1,7 mm; dzień 8 – 1,9 mm.
Przy najwyższym stężeniu ekstraktu (100 mg/ml) kiełkowanie było wyraźnie opóźnione – pierwsze kiełkujące nasiona fasoli zaobserwowano dopiero w 4. dniu, a kukurydzy w 5. dniu testu. Podana przez autora wartość redukcji wzrostu korzeni kukurydzy dla 10 mg/ml wyniosła 55,06% (wyliczenie z zaokrąglonych wartości bezwzględnych 15,2 mm względem 33,6 mm daje 54,76%).
Łopusiewicz i Mizielińska (2016) zbadali aktywność ekstraktów z Macrolepiota konradii oraz ich powłok na folii PLA. Sam ekstrakt chloroformowo-acetonowy hamował M. luteus, S. aureus i E. coli (nie działał na B. atrophaeus). Jednak w testach powłok etylocelulozowych na PLA (wobec E. coli i S. aureus) dodatek ekstraktu dał znikomy efekt w porównaniu z samą etylocelulozą; autorzy uznali, że ekstrakt nie tworzy aktywnej powłoki przeciwbakteryjnej.
[9]Analytische Ergebnisse
Quellenergebnisse und ihre Grenzen
Drzewo filogenetyczne Ge i in. (2010): Pełne drzewo pokazuje sekwencje AY243603, AY243602 i AY243601 jako M. konradii z Holandii; są nieoznaczone gwiazdką, więc nie zostały wygenerowane w tej pracy.
Zachowane wtórne zestawienie z 2015 r.: W zachowanym wtórnym zestawieniu tabela 1 podaje sześć średnic stref w milimetrach; odchylenia standardowe i liczba powtórzeń nie zostały podane.
Ekstrakt i powłoki PLA — Łopusiewicz i Mizielińska (2016): Przy stężeniu ekstraktu 200 mg/ml tabela 1 podaje strefy zahamowania 16 mm dla E. coli, 17 mm dla S. aureus, 36 mm dla M. luteus i 0 mm dla B. atrophaeus. W porównaniu czystej folii PLA, samej etylocelulozy i powłoki z ekstraktem tabela 3 podaje dla E. coli odpowiednio 787, 11,7 i 6,89 × 10⁶ JTK/ml, a tabela 4 dla S. aureus: 55,4, 3,89 i 1,33 × 10⁵ JTK/ml. Obie tabele zachowują osobne SD. Autorzy opisują nieznacznie większe działanie powłoki z ekstraktem, lecz we wniosku nie uznają uzyskanej powłoki etylocelulozowej za aktywną. Liczby tabel i procenty podane w tekście zachowano jako odrębne wyniki źródła.
Test korzeni kukurydzy i fasoli — Łopusiewicz (2016): W dniu 8 ryciny 2 i 4 podają długość korzeni jako procent kontroli. Dla stężeń 10, 50 i 100 mg/ml są to odpowiednio: kukurydza 44,94%, 36,61% i 8,93%; fasola 80%, 53,05% i 5,39%. To długość pozostała względem kontroli, nie procent redukcji. Dla kukurydzy przy 10 mg/ml rycina 1 podaje jednocześnie 15,2 mm wobec kontroli 33,6 mm, co nie odpowiada dokładnie procentowi z ryciny 2. Obie wartości źródłowe zachowano. Badanie dotyczyło siewek w płytkach, nie skuteczności w terenie.
[16] [19] [9] [18]Ökologische Untersuchungen
Vorkommen und Lebensraum
Česká mykologická společnost: Atlas ČMS podaje okres od lipca do listopada i występowanie w ściółce lasów liściastych oraz iglastych. Dwa odrębne zgłoszenia z 10 października 2024 r. i 20 października 2019 r. dotyczą kraju środkowoczeskiego; ogólny opis sezonu nie jest ograniczony do tych stanowisk.
Atlas Marka Snowarskiego: Atlas grzybów Polski dokumentuje występowanie w Polsce i podaje okres od lata do jesieni. Zbiory GRej 374428 i 375033 pochodzą z województwa zachodniopomorskiego, odpowiednio z 4 i 18 listopada 2023 r. Datowane znaleziska nie wyznaczają pełnego sezonu.
Historyczna wzmianka o Holandii: de Kok i Vellinga (1998, s. 69) określają Macrolepiota konradii jako rzadką w Holandii. Jest to historyczna wzmianka krajowa; autorzy nie wskazują tu konkretnego stanowiska, daty zbioru ani vouchera.
[11] [21] [12]Lebensraum und Vorkommen
Lebensraum, Gebiet und Jahreszeit
W Czechach gatunek występuje w rozproszeniu od lipca do listopada. Rośnie w ściółce lasów liściastych oraz iglastych, preferując miejsca jaśniejsze i lepiej doświetlone.
W Niderlandach w rewizji de Koka i Vellingi z 1998 r. zarówno Macrolepiota konradii, jak i M. mastoidea zostały określone jako taksony rzadkie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Quellen |
|---|---|---|---|
| Tschechien | Mittelböhmische Region | Nie ustalono |
|
| Polen | Woiwodschaft Westpommern | VI–XI |
|
Quellen
- GBIF — dokładne dopasowanie Macrolepiota konradii
- Weryfikacja polskich wykazów ochrony i obrotu dla czubajki gwiaździstej
- Atlas ČMS — opis mikroskopowy (także [11])
- GRej 374428 — okaz BGF0017129 (także [7], [21])
- Źródłowa średnia Q — GRej 374428
- Dokumentacja źródłowa badań z 2016 roku: metody i wyniki, czubajka gwiaździsta.
- Blanco-Dios J.B. 2016. Agaricales de las dunas de Galicia (VI): una nueva variedad de Macrolepiota y algunas combinaciones nuevas. Tarrelos 18:27-28.
- de Kok R.P.J., Vellinga E.C. 1998. Notulae ad Floram agaricinam neerlandicam—XXXII.Macrolepiota. Persoonia17(1): 69–79
- Rozporządzenie Ministra Środowiska 9.10.2014; Dz.U. 2014 poz. 1408
- Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U. 2026 poz. 258
- Friebes G. 2013. Der Tintling 83:19-22.
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota(Agaricaceae, Basidiomycota)inChina. FungalDiversity45:81–98. DOI 10.1007/s13225-010-0062-0
- Index Fungorum 317072, Macrolepiota konradii
- Łopusiewicz Ł.2016. Ocena możliwości zastosowania ekstraktu z grzyba Macrolepiota konradii jako naturalnego bioherbicydu
- Łopusiewicz Ł., Lisiecki S. 2015. Analiza właściwości bakteriostatycznych i fungistatycznych grzyba Macrolepiota konradii. Badania i Rozwój Młodych Naukowców wPolsce, Nauki przyrodnicze TomI, CzęśćII, str.79–84
- NCBI Taxonomy90954, Macrolepiota konradii