
Ядомы

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.
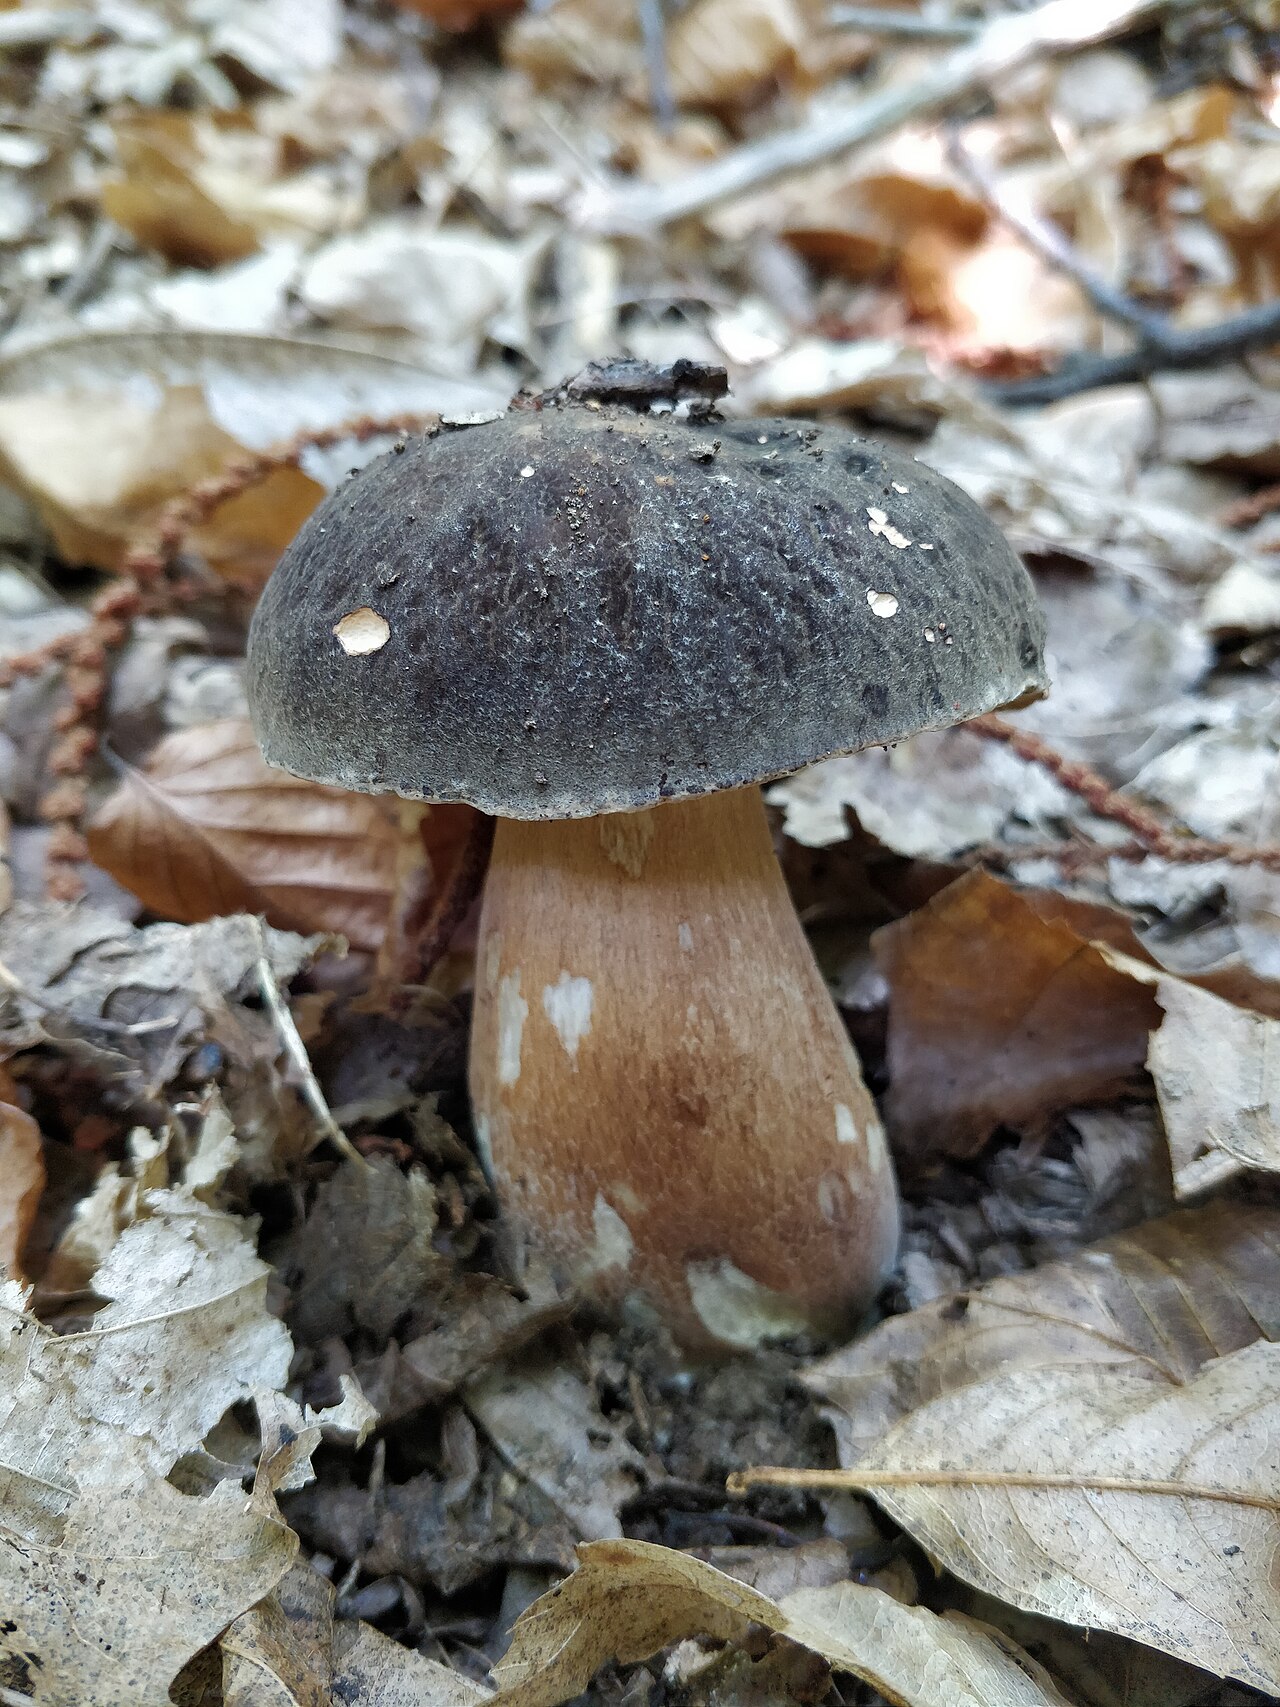
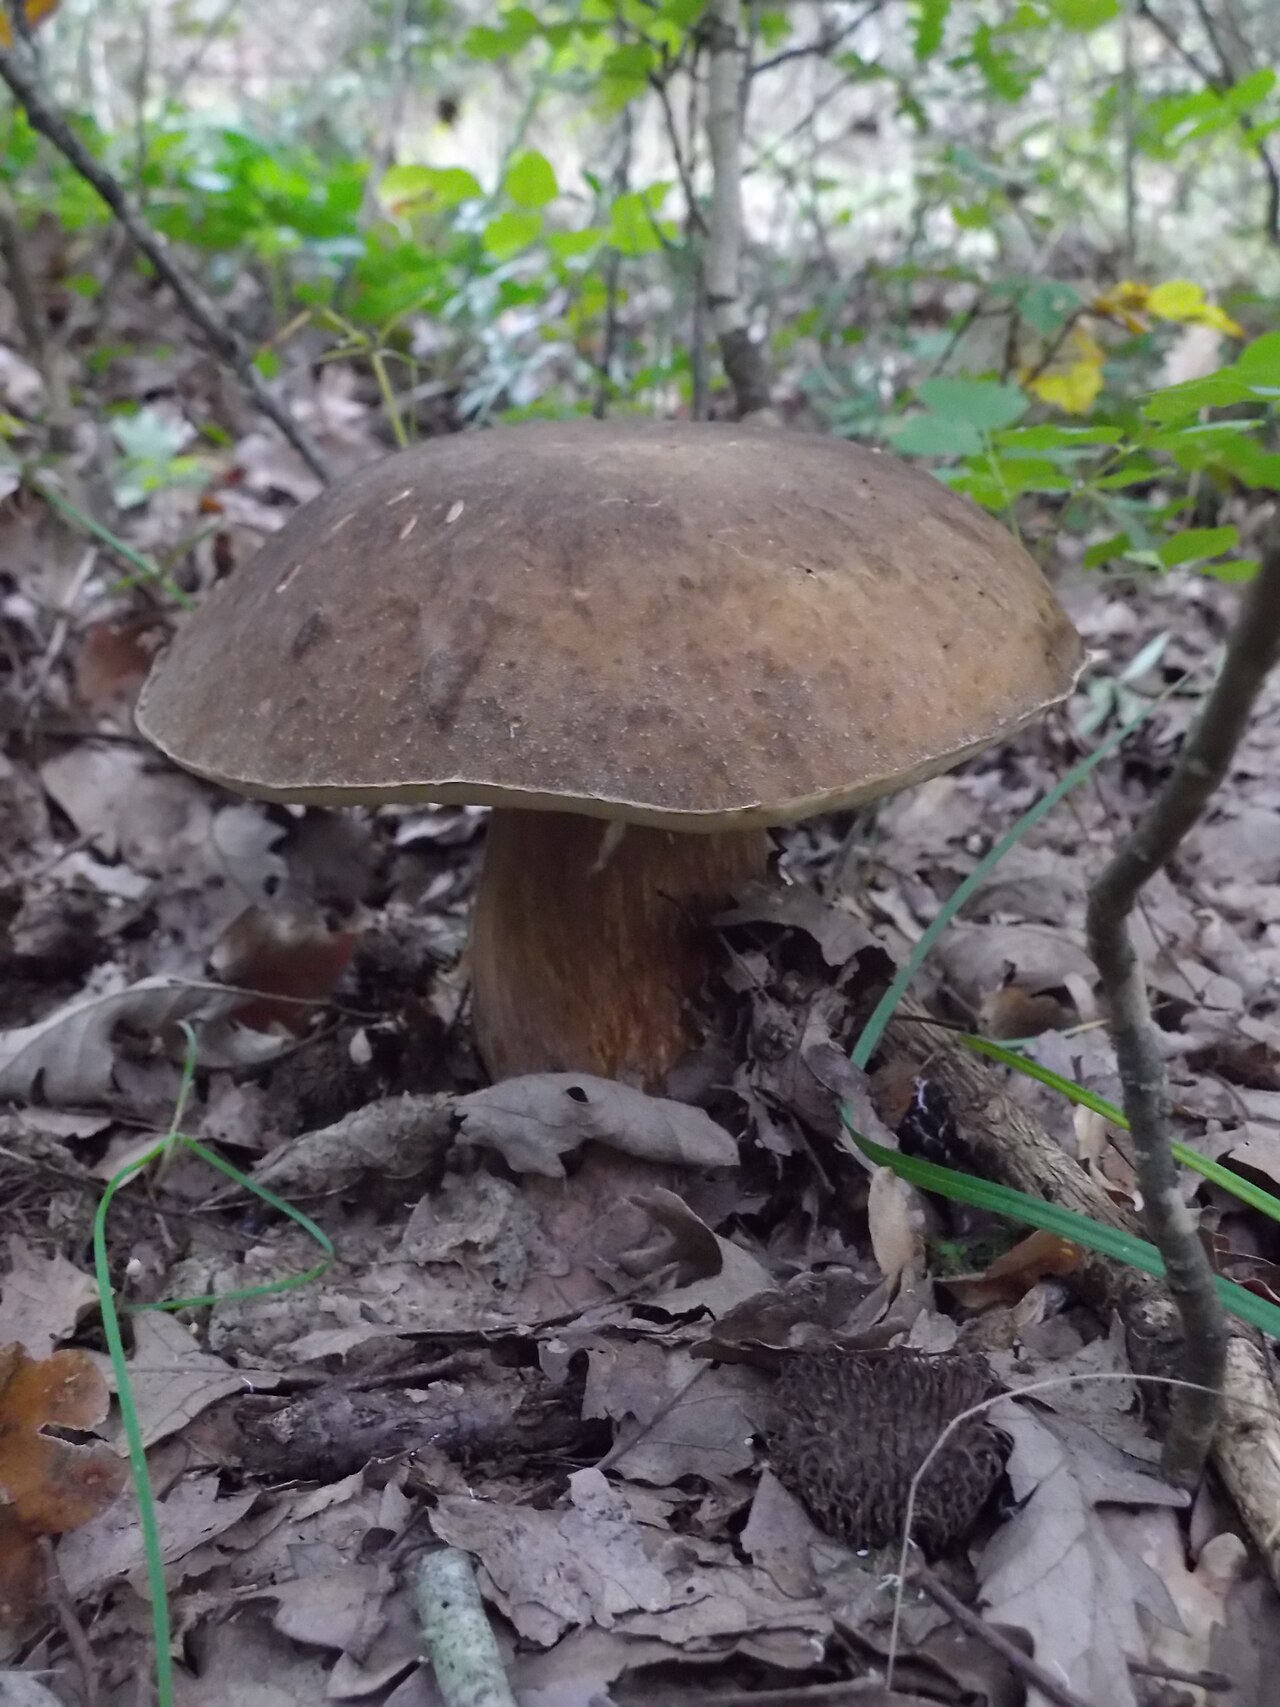
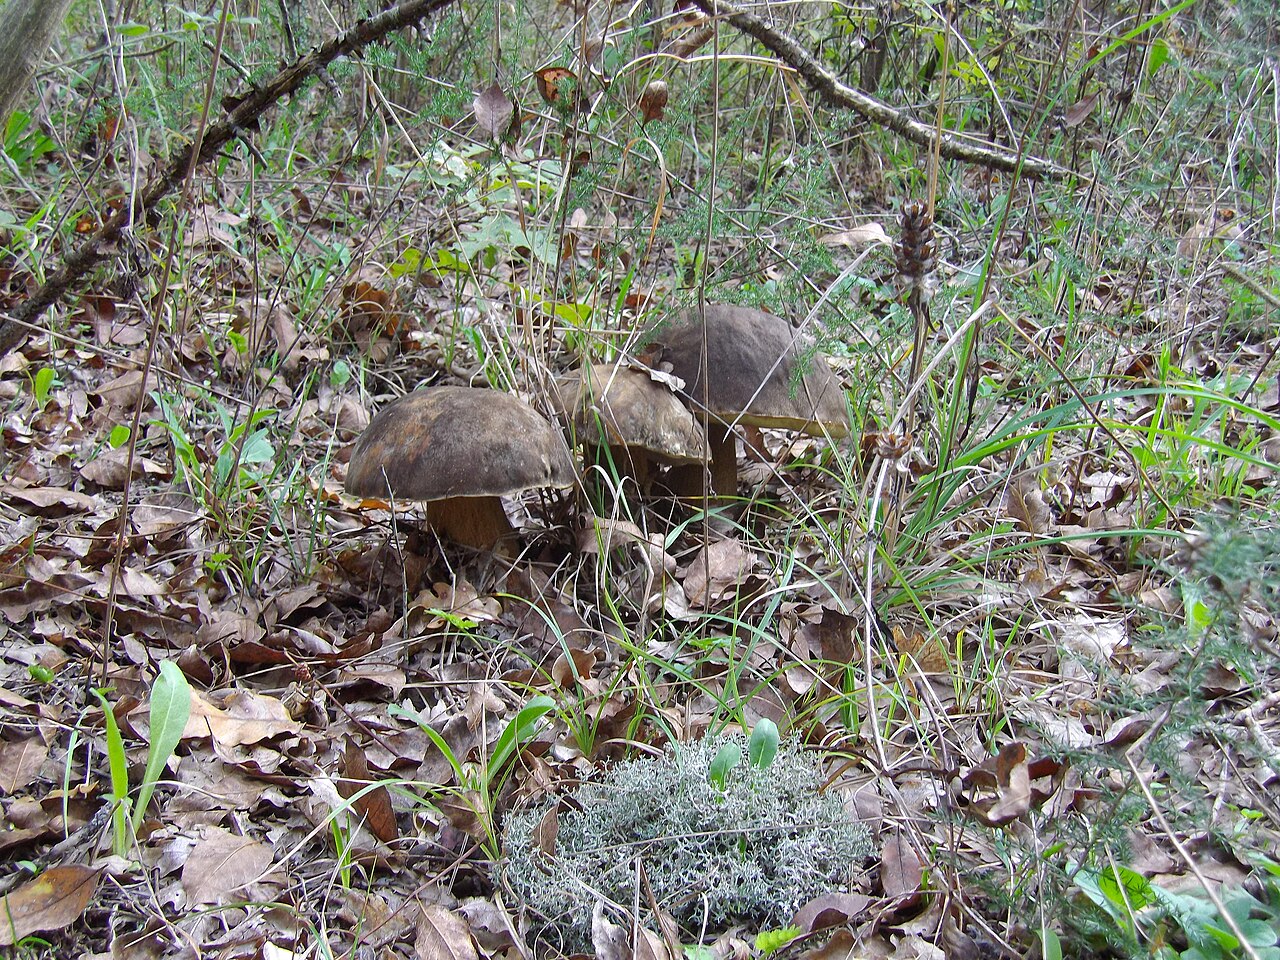
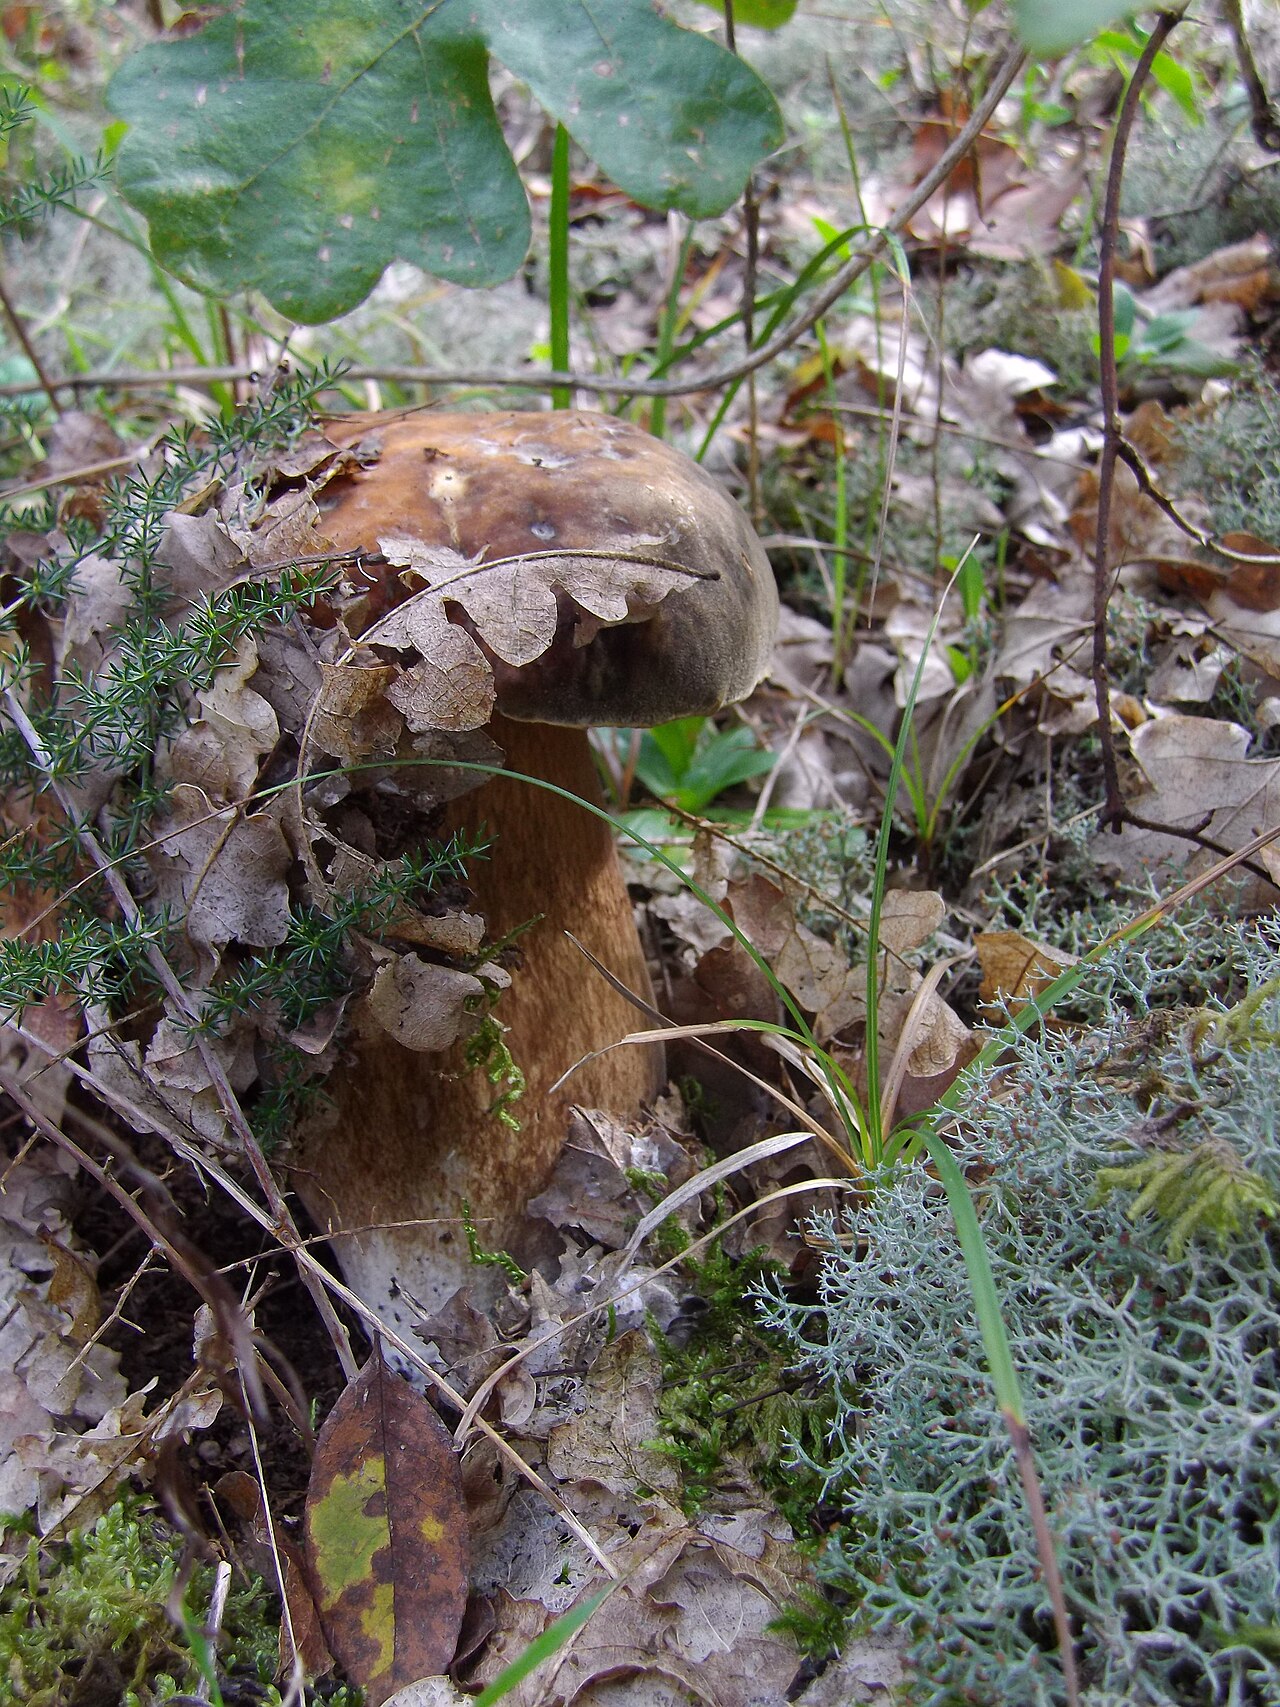
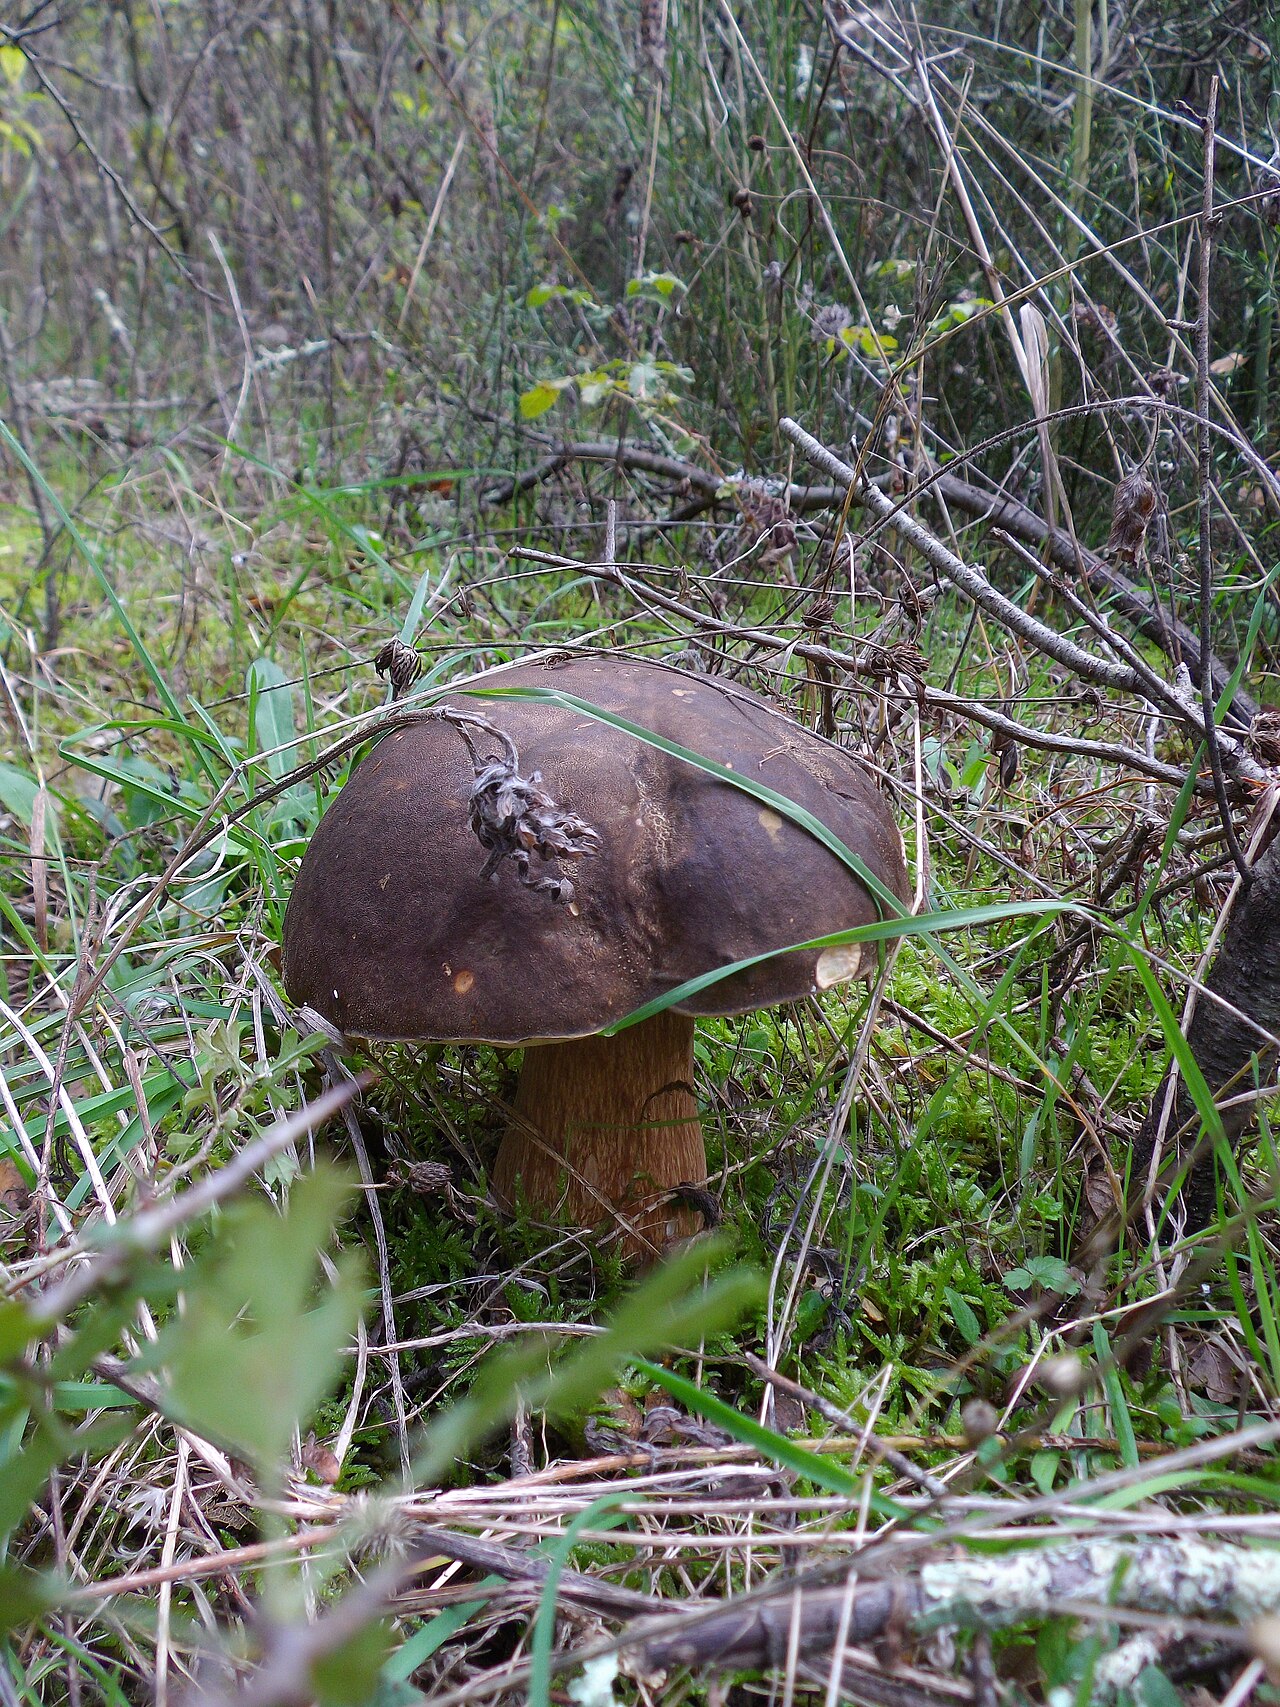
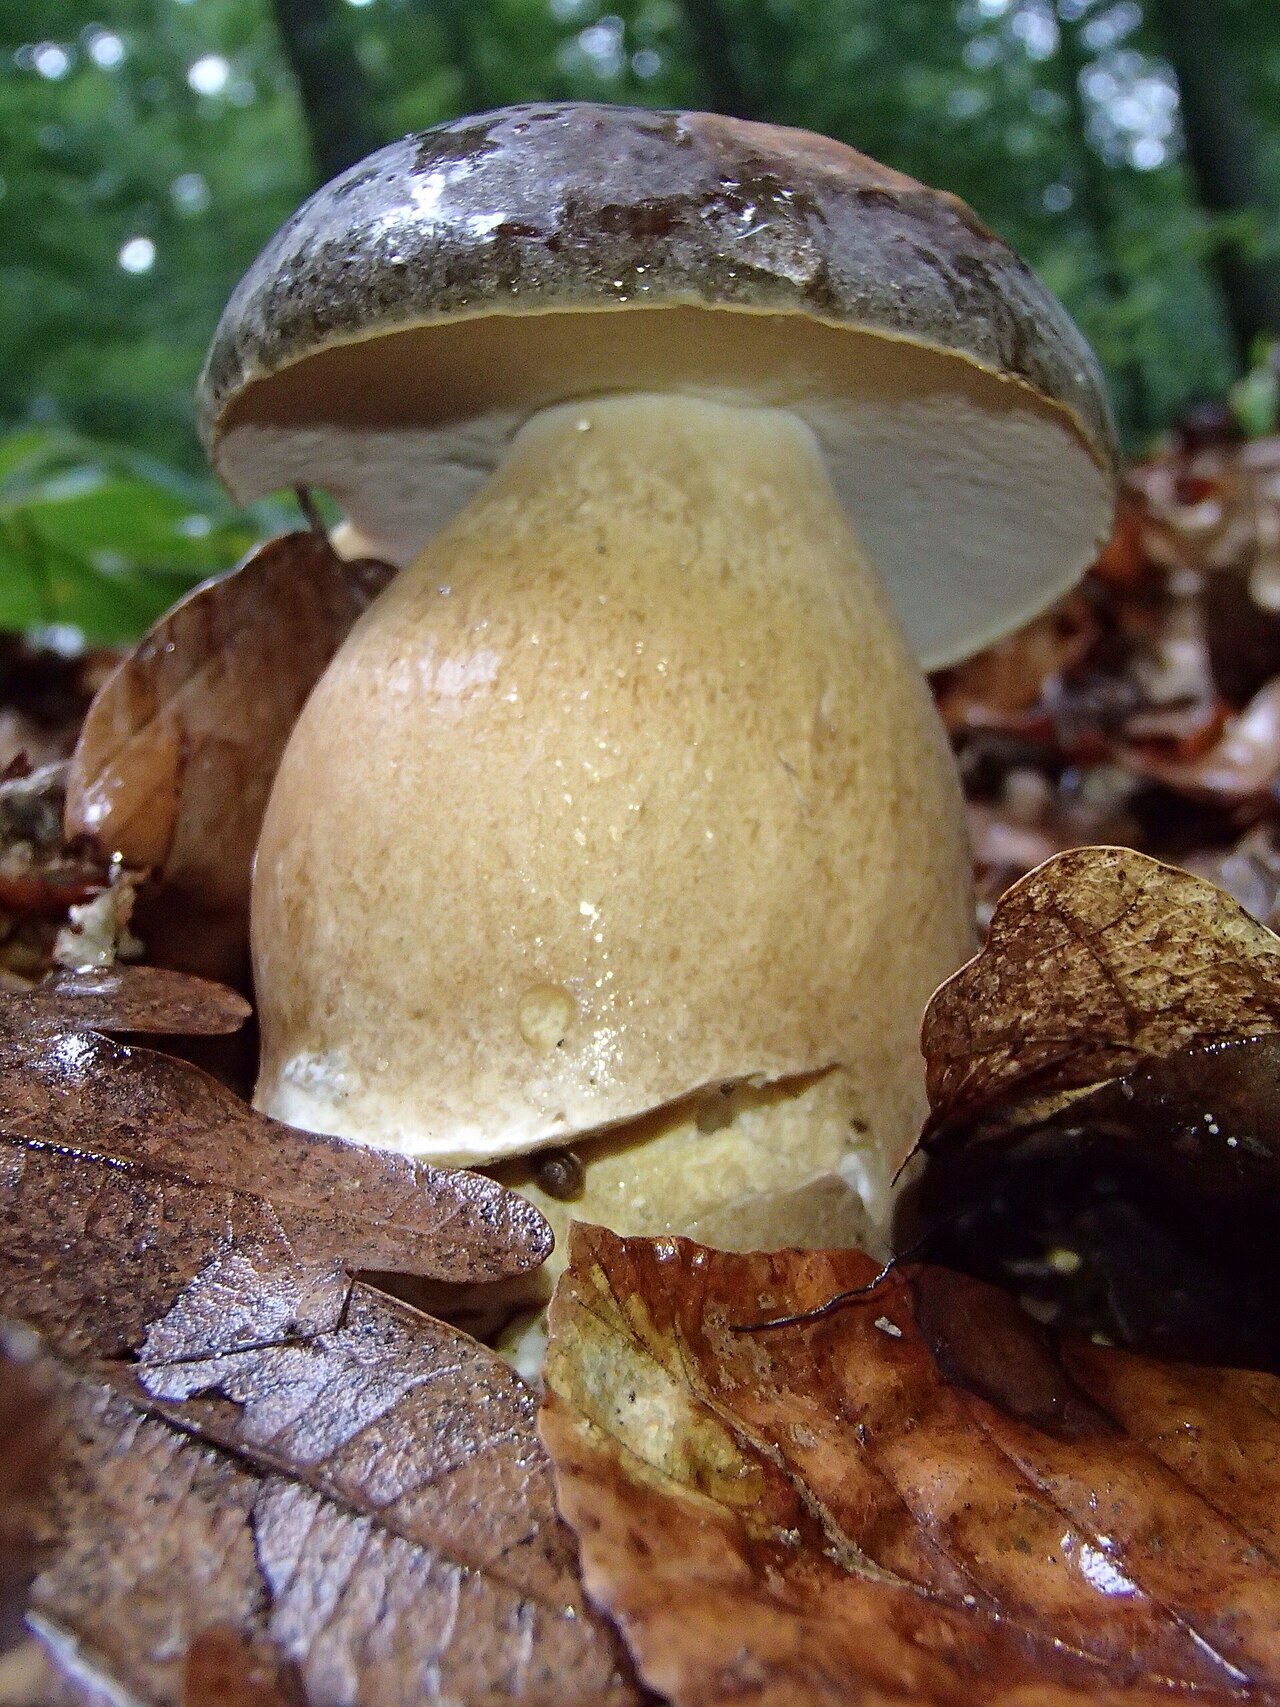
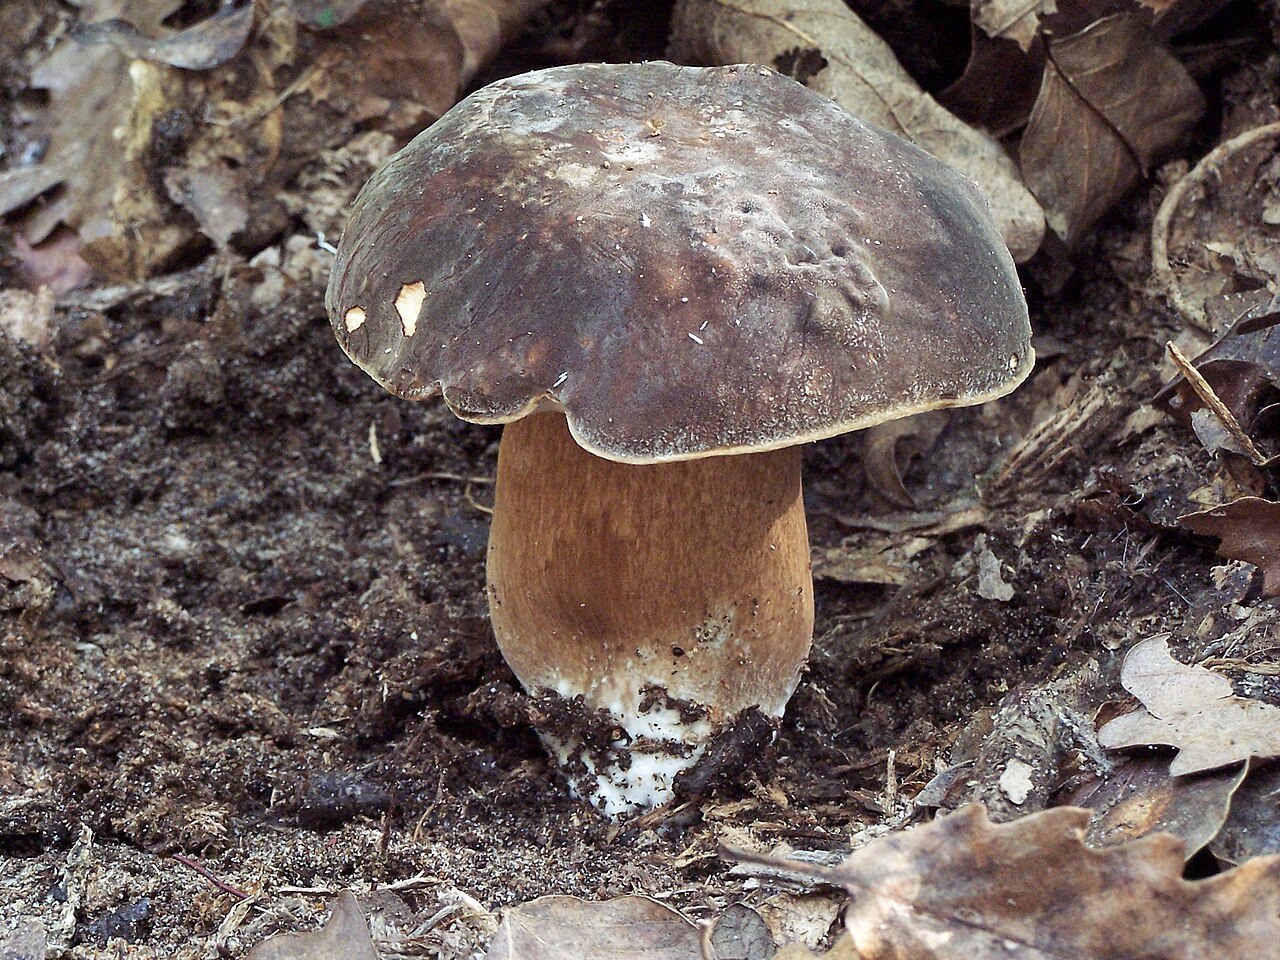
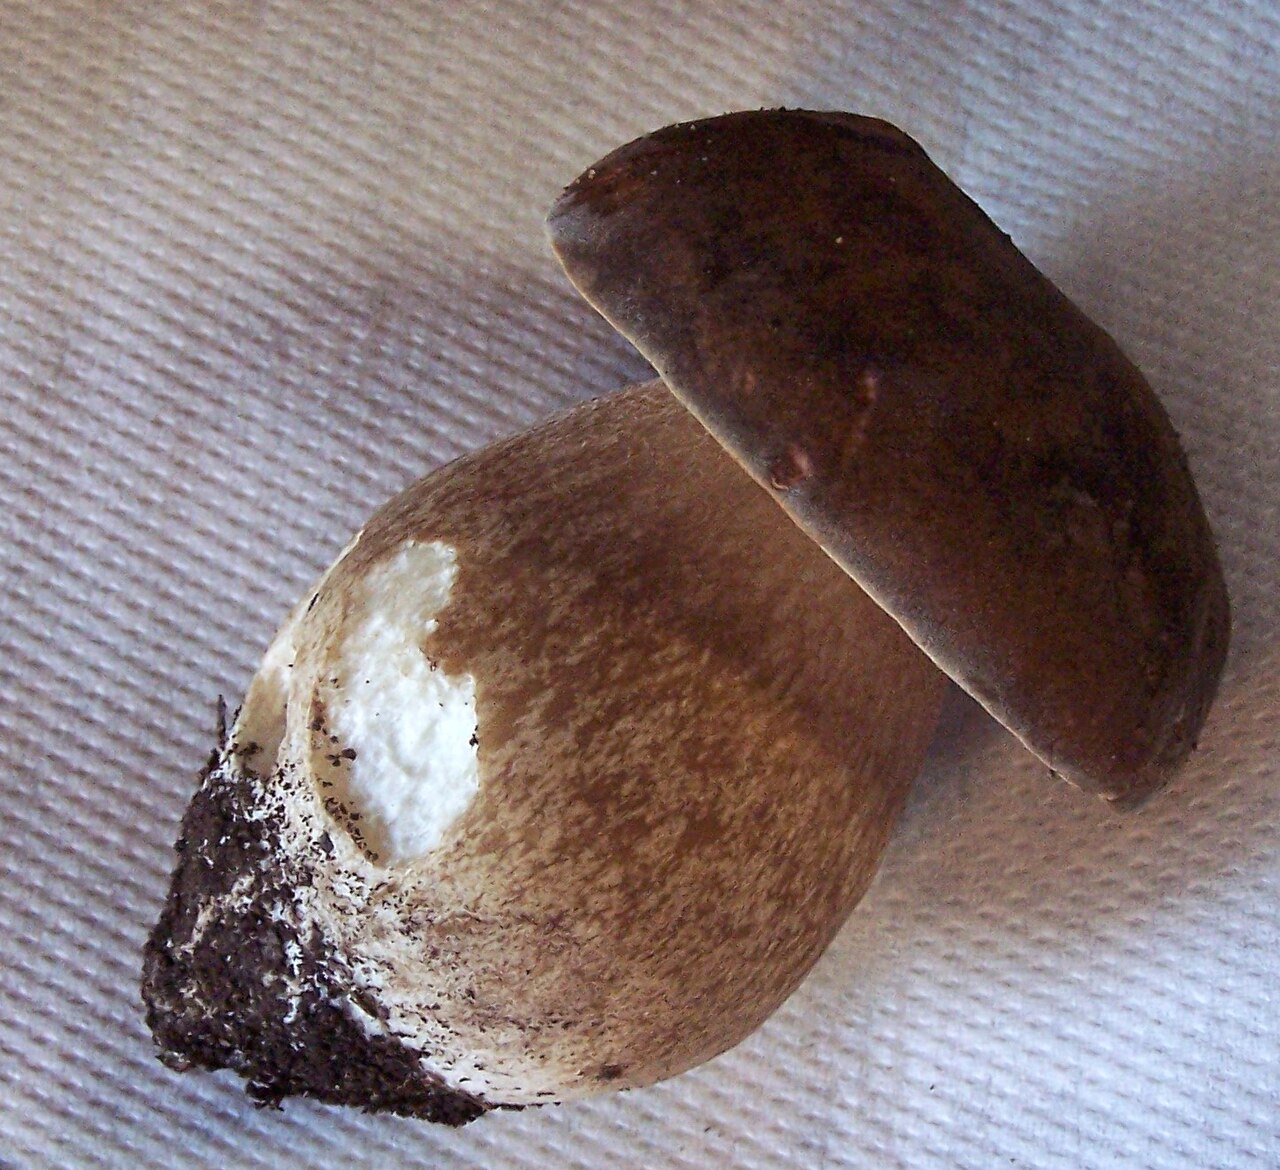
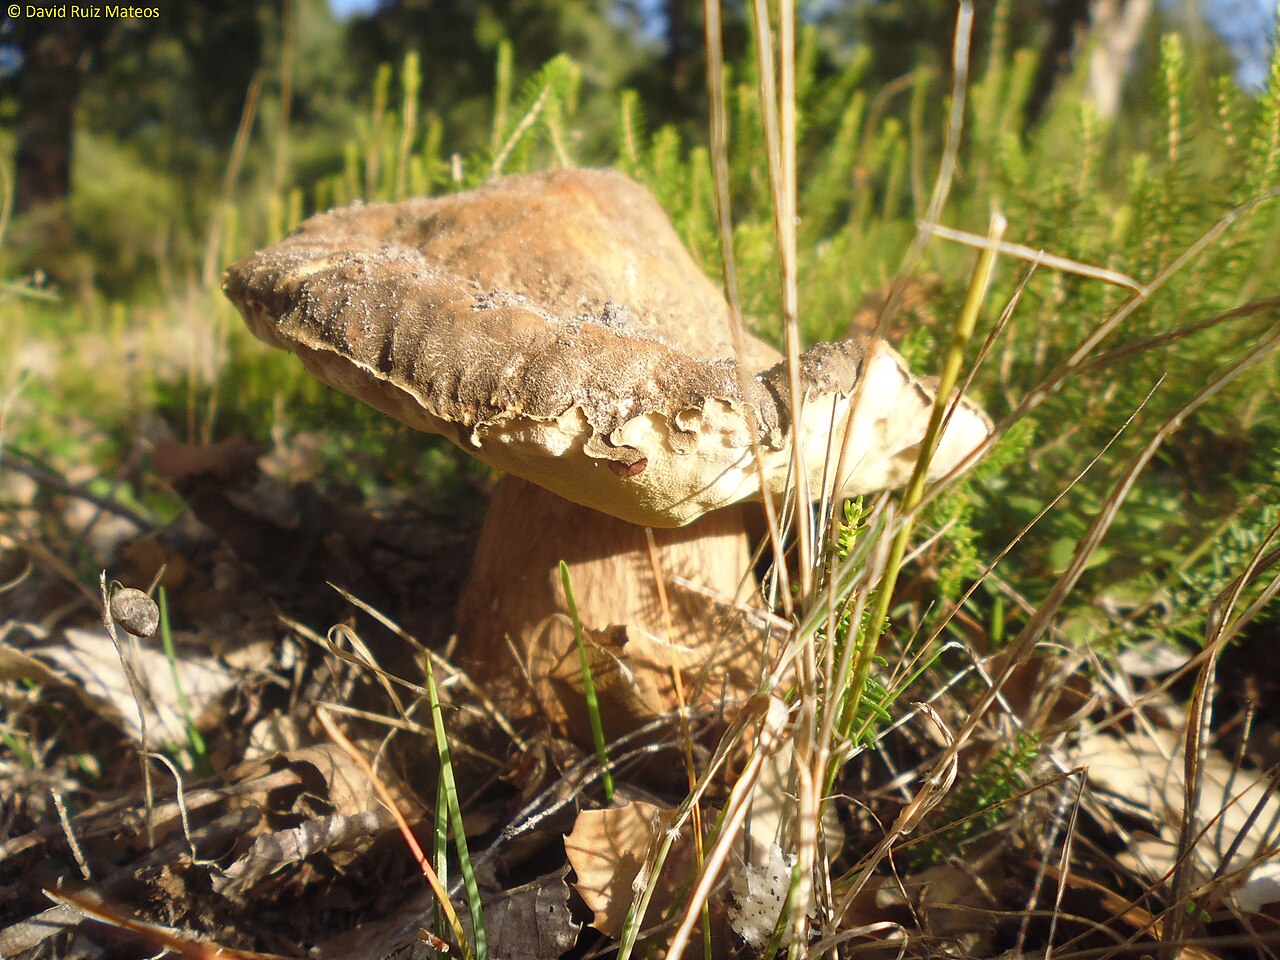
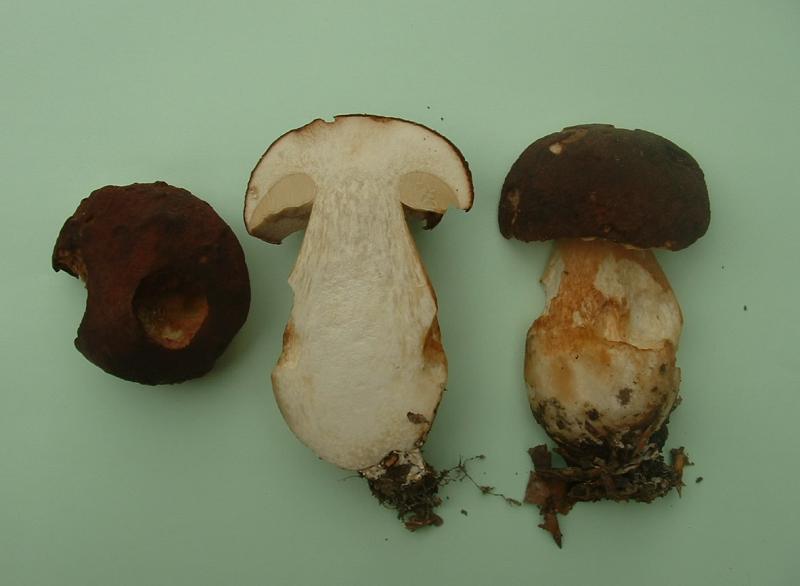
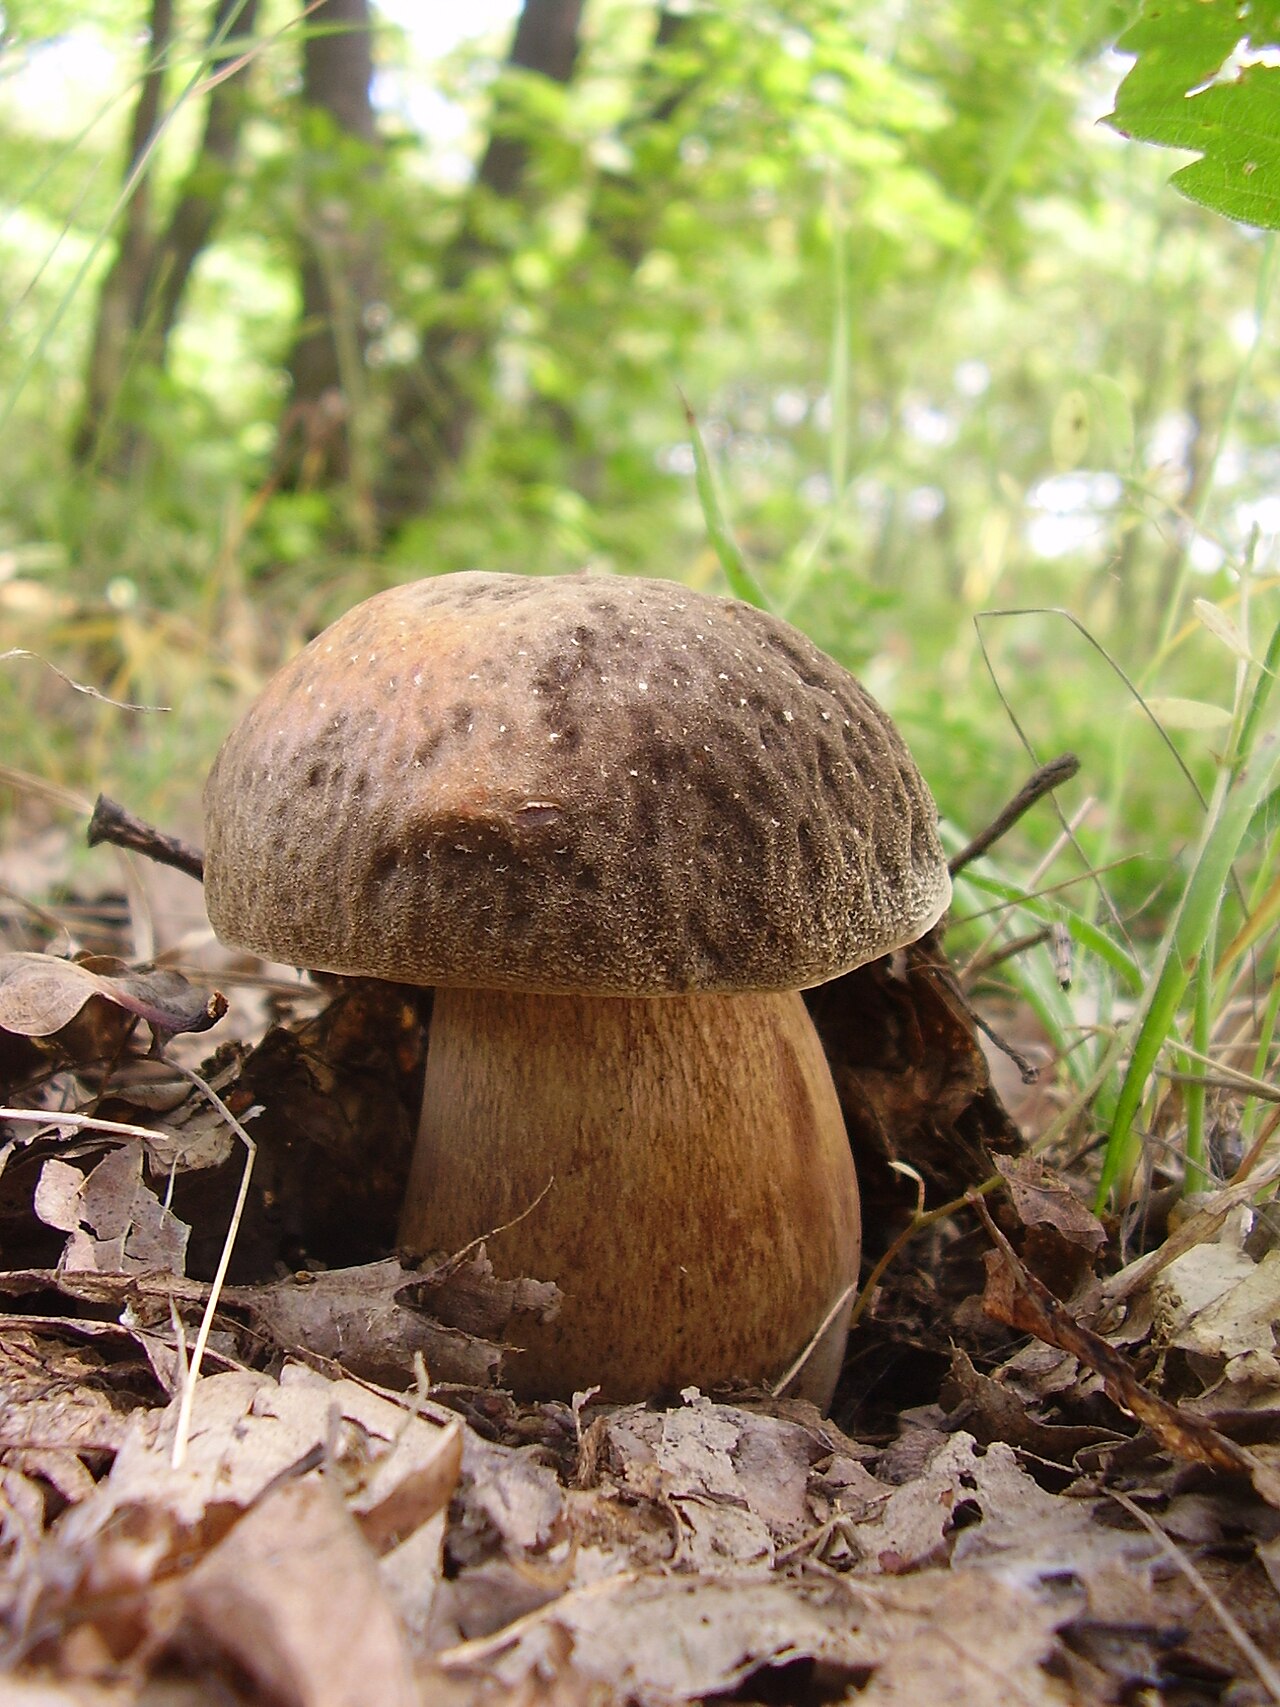
Плодавае цела складаецца з мясістай шапкі і ножкі, а спод шапкі ўтварае трубчасты гіменафор, які заканчваецца порамі. У чэшскім атласе шапка мае 50–200 мм у дыяметры, ножка — 50–100 мм у даўжыню і 20–40 мм у таўшчыню. Італьянскі дапаможнік прыводзіць шапку 5–25 см і ножку 7–15 × 3–6 см. DGfM называе шапку да 25 см і ножку да 15 см вышынёй і да 5 см таўшчынёй. Шапка спачатку паўшарападобная, затым выпуклая або падушкападобная, а паводле італьянскага апісання ў канцы распасцёртая. Можа мець няроўнасці ў выглядзе бугаркоў і паглыбленняў. Яна шчыльная і пругкая. У маладых плодавых целаў скурка бывае амаль чорнай і аксаміцістай; з узростам можа станавіцца больш гладкай і бліскучай. Паверхня сухая, дробналямцавая, з часта прыпудранай або ашаранелай зонай каля краю. Колер шапкі знаходзіцца ў адценнях карычневага і чорна-карычневых колераў, часам амаль чорных. Чэшскі атлас называе таксама аліўкавыя і медна-карычневыя тоны; ISPRA апісвае арэхавыя, пясчаныя, медныя, сепіевыя і аліўкава-карычневыя адценні; польскі атлас прыводзіць ад цёмнага чырвона-карычневага да чорна-карычневага. Трубачкі пад шапкай маюць паводле чэшскага атласа 5–30 мм у даўжыню. Спачатку яны белыя, а поры з узростам жаўцеюць і набываюць аліўкавае адценне. DGfM апісвае пераход ад белага праз крэмавы да зялёна-жоўтага, у той час як рэгіянальная каталонская праца згадвае белыя або шараватыя трубачкі з дробнымі белымі порамі. Італьянскі дапаможнік звязвае пабурэнне гіменафора са старасцю або распадам плодавага цела. Дапаможнік ISPRA апісвае трубачкі як густа размешчаныя, свабодныя і нязменныя па колеры, а іх пласт — як лёгка аддзяляльны ад белай мякаці шапкі. Поры дробныя, цыліндрычныя і супадаюць па колеры з трубачкамі. Ножка ў маладых плодавых целаў бочкападобная або пузатая, з узростам становіцца булавападобнай, цыліндрычнай або больш стройнай. Ніжняя палова ножкі бывае выразна патоўшчанай і паводле каталонскіх звестак у маладых плодавых целаў можа быць шырэйшай за шапку. Яе колер звычайна карычневы і святлейшы за шапку; ISPRA апісвае пераход ад светла-вохрыстага да карычневага падчас паспявання і старэння. Ножка пругкая і шчыльная. На яе паверхні прысутнічае далікатная сетачка, у нямецкім апісанні — светлая на карычняватым фоне. Зона распаўсюджвання сетачкі выяўляе зменлівасць: ISPRA размяшчае яе каля вяршыні ножкі, часам да паловы яе даўжыні, у той час як табліца ў працы Beugelsdijk і суаўтараў апісвае сетачку па ўсёй ножцы. Мякаць белая, пругкая і шчыльная; у рэгіянальным каталонскім апісанні яе ахарактарызавалі як цвёрдую. ISPRA падкрэслівае беласць непасрэдна пад скуркай шапкі. Пасля разрэзвання мякаць не змяняе колеру. Свежае плодавае цела мае мяккі грыбны пах, які паводле чэшскага атласа выразна ўзмацняецца пасля сушкі. ISPRA вызначае пах як прыемны, а смак як прыемны і саладкавы. Споравы парашок аліўкавы. Споры ў чэшскім атласе маюць 12–18 × 4–6 µm, яны гладкія і ад падоўжана-эліпсаідальных да вераценападобных. ISPRA прыводзіць 12–16 × 4–5 µm і вераценападобную форму пры назіранні з KOH. У мікраскапічным аглядзе Beugelsdijk і суаўтараў элементы скуркі шапкі дасягаюць шырыні да 11 µm і ўтрымліваюць дробныя ўнутрыклеткавыя зярністасці.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
Форма капялюшыка: паўшарападобны.
Форма капялюшыка: выпуклы.
Форма капялюшыка: плоскі.
Форма капялюшыка: увагнуты. - Рэльеф паверхні капялюшыка
- Рэльеф паверхні капялюшыка: гарбкаватая.
у спелых пладовых цел: Рэльеф паверхні капялюшыка: гладкі. - Покрыва капялюшыка
- у маладых пладовых цел: Покрыва капялюшыка: замшавая.
Покрыва капялюшыка: мучністы (на краі капялюшыка).
Покрыва капялюшыка: голая. - Бляск паверхні капялюшыка
- у спелых пладовых цел: Бляск паверхні капялюшыка: бліскучы.
- Колер капялюшыка
- Колер капялюшыка: чорна-карычневы.
Колер капялюшыка: карычневы.
Колер капялюшыка: цёмна-карычневы.
Колер капялюшыка: медны.
Колер капялюшыка: арэхава-карычневы.
Колер капялюшыка: аліўкава-карычневы.
Колер капялюшыка: сепіява-карычневы.
Колер капялюшыка: палевы.
Колер капялюшыка: чарнаваты.
Колер капялюшыка: цёмны чырвона-карычневы.
Колер капялюшыка: бронзавы.
Колер капялюшыка: каштанавы.
Колер капялюшыка: аранжава-карычневы.
у маладых пладовых цел: Колер капялюшыка: чарнаваты. - Дыяметр капялюшыка
- Дыяметр капялюшыка складае 50–250 mm.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: трубачкі.
Трубачкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: вольны ад ножкі (трубачкі).
Прымацаванне гіменафора да ножкі: прырослы да ножкі (трубачкі).
- Аддзяляльнасць гіменафора ад капялюшыка
- Аддзяляльнасць гіменафора ад капялюшыка: лёгка аддзяляецца (трубачкі).
- Колер гіменафора
- у старых пладовых цел: Колер гіменафора: карычневы.
у спелых пладовых цел: Колер гіменафора: аліўкавы.
у маладых пладовых цел: Колер гіменафора: белаватая. - Форма пор
- Форма пор: круглы.
- Натуральны колер пор
- Натуральны колер пор: белы.
у спелых пладовых цел: Натуральны колер пор: аліўкавы.
у маладых пладовых цел: Натуральны колер пор: белы.
у спелых пладовых цел: Натуральны колер пор: жоўты. - Памер пор
- Памер пор: малы.
- Натуральны колер трубачак
- Натуральны колер трубачак: шэраваты.
Натуральны колер трубачак: белы.
Натуральны колер трубачак: крэмавы.
Натуральны колер трубачак: зеленавата-жоўты.
у спелых пладовых цел: Натуральны колер трубачак: серна-жоўтая. - Шчыльнасць размяшчэння трубачак
- Шчыльнасць размяшчэння трубачак: густыя.
Ножка і аснова
- Форма ножкі
- у маладых пладовых цел: Форма ножкі: бочкападобны.
у спелых пладовых цел: Форма ножкі: булавападобны.
у спелых пладовых цел: Форма ножкі: цыліндрычны.
у маладых пладовых цел: Форма ножкі: брухаты. - Аснова ножкі
- Аснова ножкі: патоўшчаная.
- Колер ножкі
- Колер ножкі: карычневы.
Колер ножкі: бэжавая.
Колер ножкі: аранжава-карычневы.
Колер ножкі: каштанава-карычневая.
Колер ножкі: белы.
Колер ножкі: белаватая.
у маладых пладовых цел: Колер ножкі: светла-вохрысты.
у спелых пладовых цел: Колер ножкі: карычневы.
у старых пладовых цел: Колер ножкі: карычневы. - Рэльеф паверхні ножкі
- Рэльеф паверхні ножкі: сеткаватае (толькі на верхавіне ножкі).
Рэльеф паверхні ножкі: сеткаватае (верхняя палова ножкі).
Рэльеф паверхні ножкі: сеткаватае (верхнія дзве трэці ножкі). - Унутраная будова ножкі
- Унутраная будова ножкі: суцэльны.
- Кансістэнцыя ножкі
- Кансістэнцыя ножкі: шчыльны.
- Даўжыня ножкі
- Даўжыня ножкі: 50–150 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 20–100 mm.
Кольца
- Наяўнасць кольца
- Наяўнасць кольца: без кольца.
Мякаць
- Колер мякаці
- Колер мякаці: белы.
Колер мякаці: белы (мякаць капялюшыка, пад скуркай).
Колер мякаці: брудна-ружовы (мякаць капялюшыка, пад скуркай).
Колер мякаці: бледна-карычневы (мякаць капялюшыка, пад скуркай). - Шчыльнасць мякаці
- Шчыльнасць мякаці: шчыльны.
Шчыльнасць мякаці: цвёрды.
Шчыльнасць мякаці: шчыльны (мякаць капялюшыка). - Смак мякаці
- Смак мякаці: салодкі.
Смак мякаці: слабы. - Тып кансістэнцыі мякаці
- Тып кансістэнцыі мякаці: мясісты (мякаць капялюшыка).
- Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: без змены колеру.
Колер мякаці пасля пашкоджання: без змены колеру. - Пах мякаці
- Пах мякаці: грыбны, слабы.
Пах мякаці: зямлісты.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: лісцевы лес.
Месцапражыванне: змешаны лес.
Месцапражыванне: хвойны лес. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з ліпеня да кастрычніка.
- Арэал распаўсюджання
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
З чым можна паблытаць
Boletus edulis
Асноўныя адрозненні
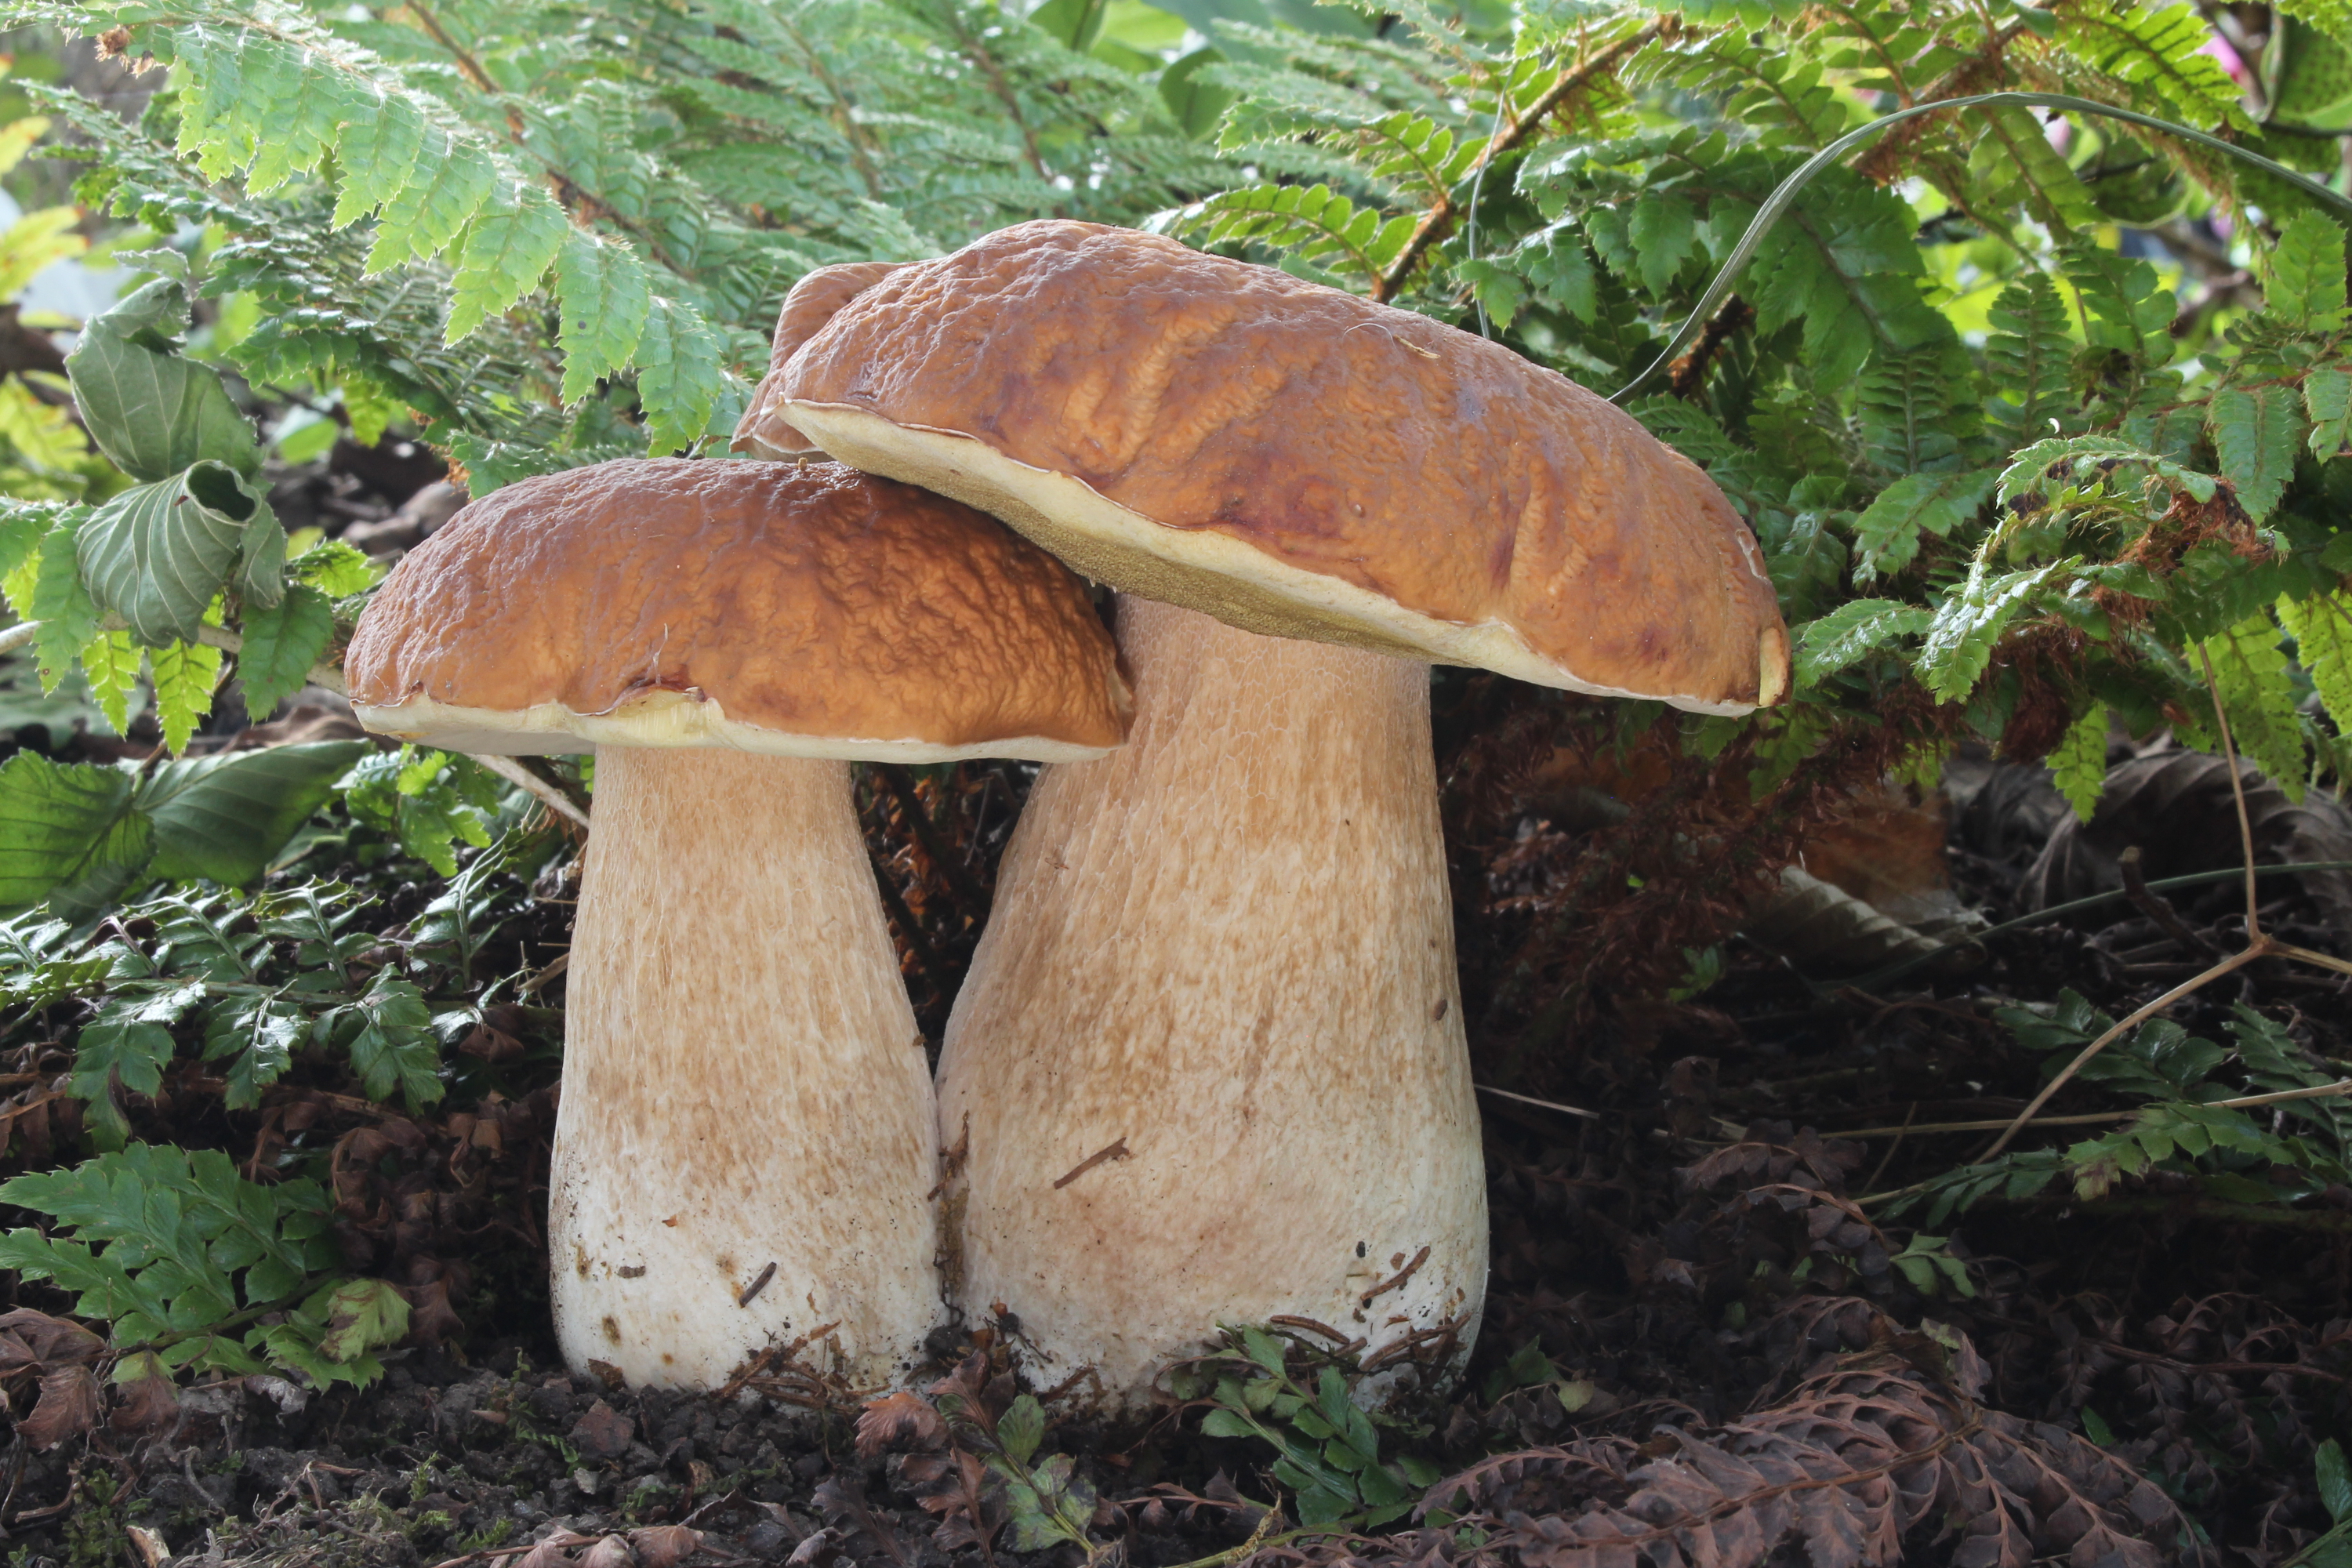
Баравік высакародны (Boletus edulis) адрозніваецца гладкай, у вільготных умовах тлустай навобмацак скуркай шапкі, больш шырокай палітрай больш светлых і больш цёмных адценняў карычневага, а таксама бялявай сетачкай, якая звычайна прысутнічае ў верхняй палове ножкі (радзей спускаецца ніжэй). Мікраскапічна канцавыя элементы скуркі шапкі ў B. edulis маюць 4–19 µm у шырыню, тады як у B. aereus шапка сухая, дробналямцавая і вельмі цёмная, хоць асобныя прыкметы афарбоўкі могуць перакрывацца.
Баравік цёмна-карычневы (Boletus aereus) сустракаецца ў цёплых лісцевых лясах, пераважна дубовых, таксама на вапнавых глебах, радзей пад каштанамі. Мае вельмі цёмную, сухую, далікатна апушаную шапку. Пад мікраскопам канцавыя элементы яго скуркі дасягаюць да 11 µm у шырыню і ўтрымліваюць дробназярністы ўнутрыклеткавы пігмент.
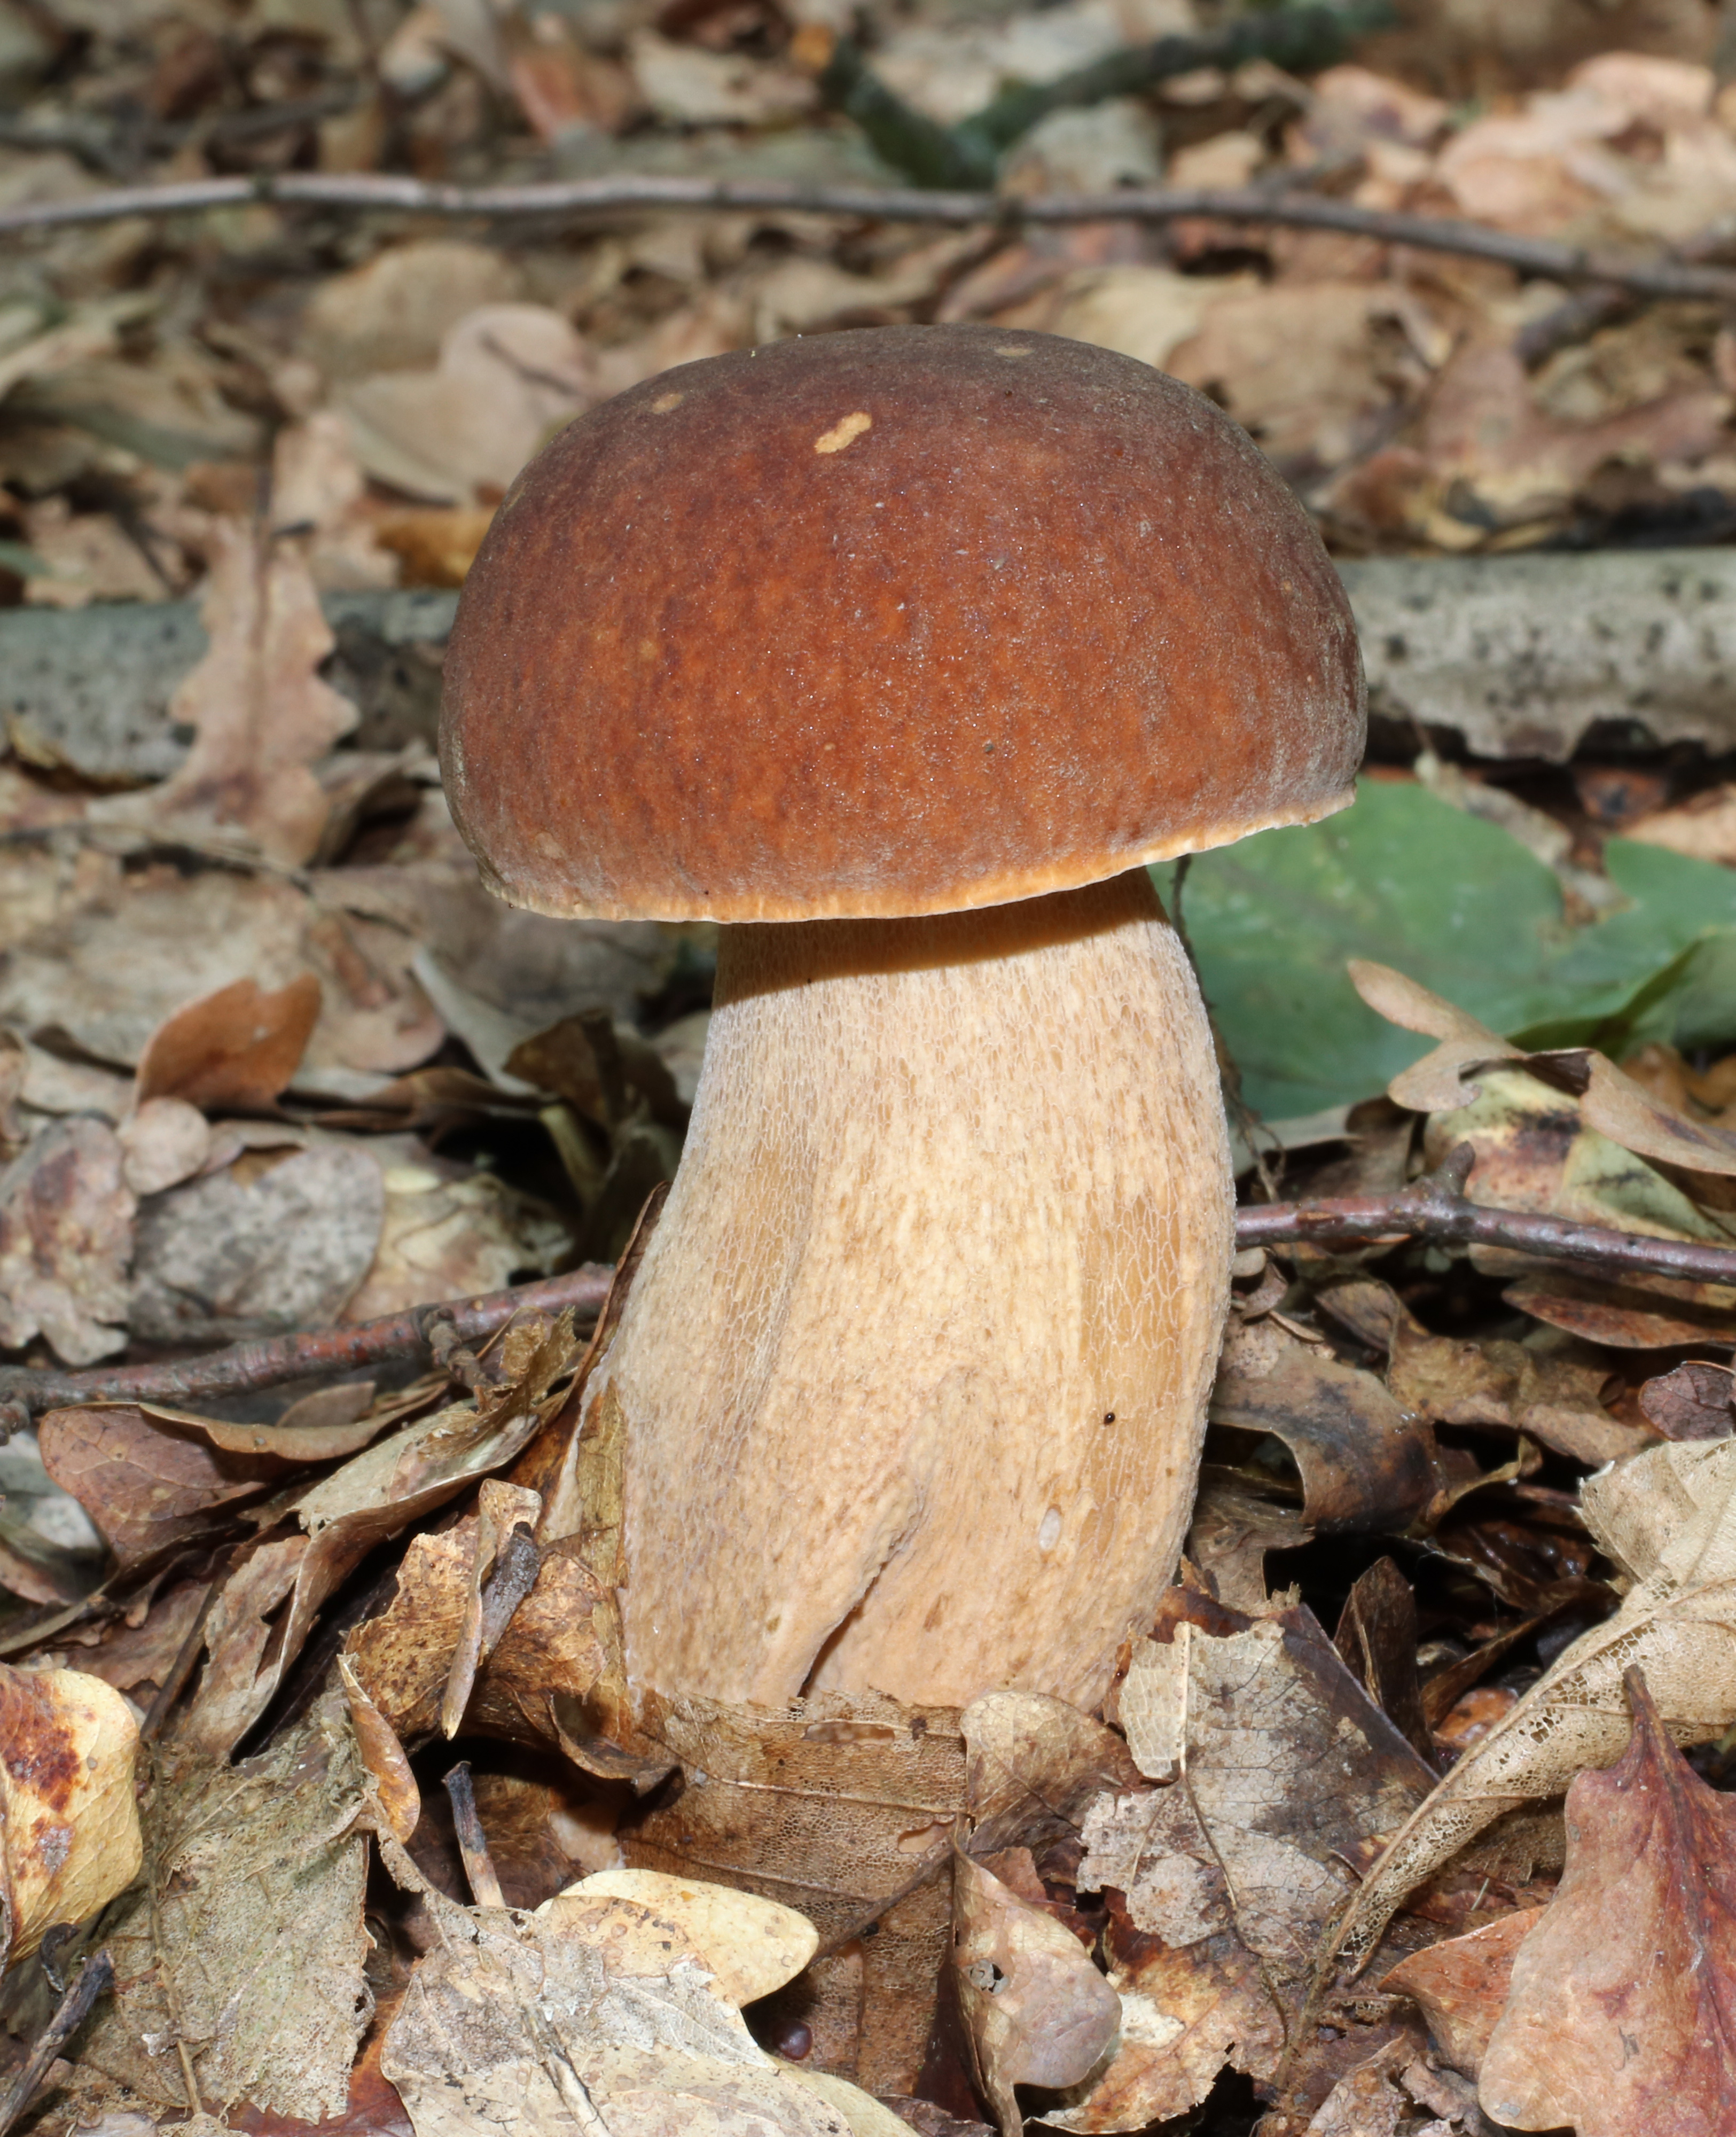
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Крыніца фота · Public domainBoletus reticulatus
Асноўныя адрозненні
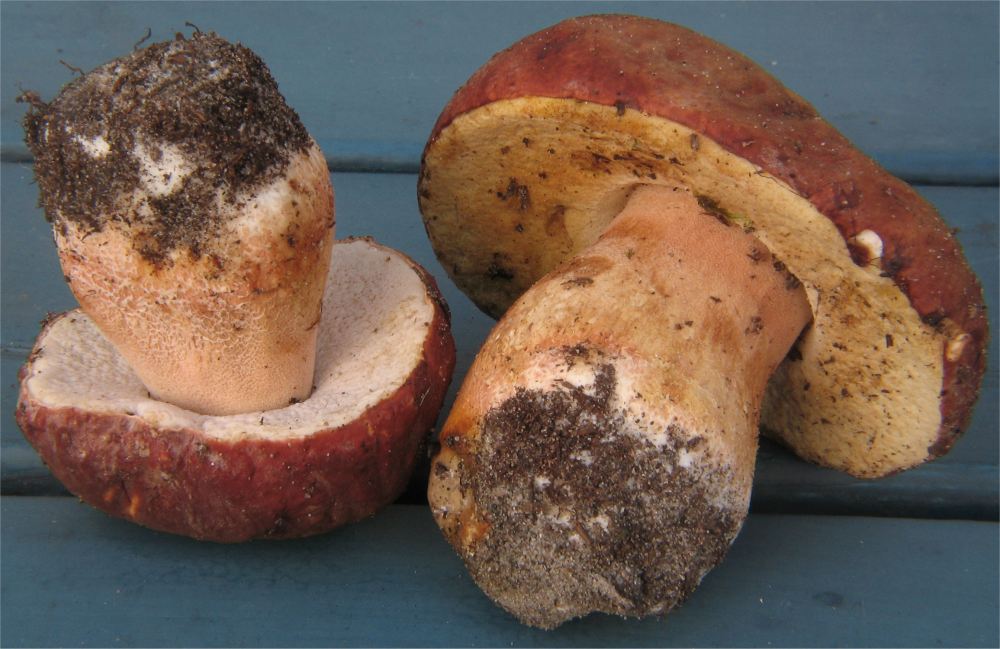
Баравік цёмна-карычневы (Boletus aereus) адрозніваецца ад баравіка сеткаватага больш цёмным колерам шапкі і ножкай карычнева-меднага адцення.
Boletus pinophilus
Асноўныя адрозненні
Баравік соснавы (Boletus pinophilus) характарызуецца чырвона-карычневым, ад каштанавага да махагоніевага колерам шапкі з паверхняй, часта зморшчанай і жэлацінізаванай, больш тоўстай сетачкай каля вяршыні ножкі і больш шырокімі элементамі скуркі шапкі (да 27 µm у шырыню), чый карычневы пігмент раствараецца гідраксідам калію (KOH).
Баравік цёмна-карычневы (Boletus aereus) адрозніваецца шапкай, пазбаўленай чырванаватых адценняў, з афарбоўкай ад вельмі цёмна-карычневай да амаль чорна-карычневай, з сухой, дробна апушанай паверхняй і ашаранелым краем. На ножцы прысутнічае цёмна-карычневая сетка, якая пакрывае амаль усю яе даўжыню. Канцавыя элементы гіфаў скуркі вузейшыя (да 11 µm у шырыню) і ўтрымліваюць дробныя ўнутрыклеткавыя зярняткі пігменту.
FAQ
Ці з'яўляецца баравік цёмна-карычневы ядомым у Польшчы?
Ён з'яўляецца ядомым грыбам, аднак у Польшчы вельмі рэдкім і прызнаным выміраючым у нацыянальным чырвоным спісе, таму яго не варта збіраць з прыродных месцапражыванняў.
Чаму баравік цёмна-карычневы знаходзіцца ў чырвоным спісе?
Ён з'яўляецца вельмі рэдкім і выміраючым грыбам у Польшчы. Чырвоны спіс дакументуе ступень пагрозы віду, аднак не тоесны юрыдычнай ахове відаў.
Пад якімі дрэвамі часцей за ўсё расце Boletus aereus?
Ён расце ў мікарызе з лісцевымі дрэвамі, перш за ўсё з дубамі і букамі, а на поўдні Еўропы яго тыповым партнёрам з'яўляецца таксама каштан ядомы.
У якіх месяцах можна сустрэць пладовыя целы гэтага віду?
У атласе Lasów Państwowych для Польшчы пазначаны месяцы з мая па верасень. У іншых рэгіёнах Еўропы час з'яўлення залежыць ад мясцовага клімату.
Як адрозніць баравіка цёмна-карычневага ад баравіка белага?
Яго вылучае выразна цямнейшы, амаль карычнева-чорны капялюшык і прыхільнасць да цёплых дуброў; баравік белы мае больш светлы капялюшык і больш шырокі арэал.
Ці змяняе баравік цёмна-карычневы колер мякаці пасля разразання?
Не, яго мякаць белая, пругкая і не сінее і не цямнее пасля пашкоджання або разразання, што адрознівае яго ад шматлікіх мадрыцавых ці чырвона-баравіковых грыбоў.
Ці можна пераблытаць гэты від з атрутным грыбам?
Яго часам блытаюць з неядомым гарчаком жоўцевым і іншымі баравіковымі. Правільнае адрозненне патрабуе дакладнай ацэнкі ўсяго комплексу прыкмет пладовага цела.
Дзе ў Еўропе Boletus aereus збіраюць найбольш ахвотна?
Яго традыцыйна збіраюць у басейне Міжземнага мора — у тым ліку ў Італіі, Іспаніі і паўднёвай Францыі, дзе ён з'яўляецца каштоўным ядомым грыбам.
Якую структуру мае паверхня капялюшыка баравіка цёмна-карычневага?
Паверхня капялюшыка матавая, сухая, замшавая або дробна зморшчаная, у адценнях цёмна-карычневага, бронзава-карычневага, а часам з іржавымі плямамі.
Якое значэнне мае Boletus aereus у генетычных даследаваннях?
Асобнікі гэтага віду выкарыстоўваюцца ў даследаваннях ДНК для дакладнага размежавання эвалюцыйных ліній і роднасных сувязей паміж еўрапейскімі баравікамі.
Аматар
Ніз шапкі
- Даўжыня трубачак
- Даўжыня трубачак: 5–30 mm.
Назвы і гісторыя
- Obowiązująca nazwa taksonomiczna
- Boletus aereus
- Pozostałe nazwy
- borowik ciemnobrązowy
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: зялёны. Колер споравага адбітка: карычневы.
- Адценне споравага адбітка
- Адценне споравага адбітка: аліўкавай. Адценне споравага адбітка: аліўкава-карычневы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: падоўжана-эліпсоідны. Форма споры: верацёнападобны. Форма споры: верацёнападобны. Форма споры: амаль верацёнападобны.
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 10,5–19 µm, шырыня 3,5–7 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджванне
- Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: дуб.
Лісцевыя дрэвы ў наваколлі: бук.
Лісцевыя дрэвы ў наваколлі: каштан ядомы. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: піхта.
- Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Quercus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Fagus (агульны пералік партнёраў). - Грыбы ў наваколлі
- Грыбы ў наваколлі: Boletus reticulatus.
Гісторыя і культура
Баравік цёмна-карычневы быў упершыню навукова апісаны ў 1789 годзе французскім батанікам і міколагам Pierre Bulliard у працы „Herbier de la France” (tablica 385). Відавая назва была затым зацверджана ў 1821 годзе Elias Fries. У гісторыі таксанаміі статус гэтага грыба інтэрпрэтаваўся па-рознаму — у больш даўніх мікалагічных зводках яго часам разглядалі як разнавіднасць баравіка белага (Boletus edulis), на што паказвае m.in. Władysław Wojewoda (2003).
Лацінскі відавы эпітэт „aereus” паходзіць ад слова, якое азначае „бронзавы” або „з бронзы”, што з'яўляецца непасрэднай адсылкай да характэрнай цёмнай афарбоўкі капялюшыка. Ад гэтага азначэння паходзіць традыцыйная гістарычная польская назва „borowik spiżowy”, як і французская агульнаўжывальная назва „cèpe bronzé”. У краінах басейна Міжземнага мора, а асабліва ў Італіі, гэты грыб здаўна існуе ў мясцовай традыцыі пад шырокаўжыванай назвай „porcino nero” (чорны баравік), якая адрознівае яго ад форм са святлейшай афарбоўкай.
Ядомасць і бяспека
Баравік цёмна-карычневы з'яўляецца ядомым грыбам, які цэніцца за шчыльную, пругкую мякаць, а таксама прыемны водар і смак. Падобна іншым баравікам, перад спажываннем ён патрабуе адпаведнай тэрмічнай апрацоўкі, такой як варка, тушэнне або абсмажванне. Варта таксама пазбягаць старых, пераспелых або спляснелых асобнікаў.
Гэты від карыстаецца вялікай папулярнасцю ў Паўднёвай Еўропе, асабліва ў Італіі (дзе ён традыцыйна вядомы як „porcino nero”) і ў Іспаніі. Аднак у Польшчы сітуацыя выглядае зусім інакш — гэты грыб вельмі рэдкі і традыцыйна адносіцца да катэгорыі E (выміраючыя) у чырвоным спісе макраміцэтаў. Варта прама выправіць частую памылку: Boletus aereus не значыцца ў нацыянальных спісах грыбоў, якія знаходзяцца пад юрыдычнай аховай відаў — ні пад строгай, ні пад частковай (Rozporządzenie Ministra Środowiska, Dz.U. 2014 poz. 1408, załączniki 1 i 2). Нягледзячы на адсутнасць фармальнай забароны, якая вынікае з гэтай пастановы, выключная рэдкасць гэтага віду і высокая катэгорыя пагрозы цалкам апраўдваюць адназначную рэкамендацыю пакідаць усе знойдзеныя пладовыя целы ў прыродным асяроддзі, не збіраючы іх для кулінарных мэт.
Месцапражыванне і сустракальнасць
Баравік цёмна-карычневы — гэта цеплалюбны від, які расце перш за ўсё ў лісцевых лясах умеранага і міжземнаморскага паясоў. Уступае ў мікарызныя сувязі пераважна з лісцевымі дрэвамі, у прыватнасці з дубамі (Quercus), радзей з букамі або каштанамі. Як паказваюць даследаванні Beugelsdijk і інш. (tabela 2), для месцапражыванняў гэтага віду характэрны цяжкі, гліністы і часта злёгку вапнавы субстрат. Хоць ён тыпова асацыюецца з цёплымі дубровамі, польскі рэгіянальны каталог дакументуе таксама два прыкладныя жнівеньскія выяўленні пладовых цел у мяшаных барах.
Тэрмін з'яўлення пладовых цел у літаратуры апісваецца па-рознаму ў залежнасці ад крыніцы. Табліца на картцы падае дыяпазон з ліпеня па кастрычнік (VII–X), у той час як атлас Lasów Państwowych указвае на месяцы з мая па верасень (V–IX). У больш цёплых рэгіёнах Паўднёвай Еўропы спрыяльныя тэрмічныя ўмовы могуць дазваляць ранні пачатак пладанашэння і яго працяг да позняй восені, тады як у Польшчы кожнае задакументаванае з'яўленне належыць да рэдкасці.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Źródło bez opisu bibliograficznego · jadalne czy trujące? / Jadalny
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Boletus aereus
- Ранейшыя навуковыя назвы
- Boletus aereus f. citrinus Camello & De la Peña
Boletus aereus var. cepa (Thore) DC.
Boletus aereus var. cravetta (Bellardi) DC.
Boletus aereus var. leucoporus Pers.
Boletus cepa Thore
Boletus cravetta Bellardi
Boletus edulis f. aereus (Bull.) Vassilkov
Dictyopus aereus (Bull.) Quél.
Suillus aereus (Bull.) Kuntze
Tubiporus aereus (Bull.) P. Karst.
Tubiporus edulis subsp. aereus (Bull.) Maire[10]
Borowik ciemnobrązowy nosi ważną nazwę naukową Boletus aereus Bull. Według Species Fungorum bazuje ona na rycinie 385 w 9. tomie Herbier de la France, opublikowanej w 1789 r. Pod względem pozycji systematycznej rodzaj Boletus należy do rodziny borowikowatych (Boletaceae), rzędu borowikowców (Boletales), podklasy pieczarkopodobnych (Agaricomycetidae), klasy pieczarniaków (Agaricomycetes), gromady podstawczaków (Basidiomycota) i królestwa grzybów (Fungi).
[10] [2]W literaturze mykologicznej odnotowano następujące historyczne kombinacje oraz synonimy taksonomiczne (dwa identycznie brzmiące zapisy Boletus edulis f. aereus odnoszą się do odrębnych pozycji bibliograficznych):
| Zapis nazwy | Publikacja |
|---|---|
| Tubiporus aereus (Bull.) P. Karst. | Bidr. Känn. Finl. Nat. Folk 37:5 (1882) |
| Dictyopus aereus (Bull.) Quél. | Enchiridion Fungorum:159 (1886) |
| Suillus aereus (Bull.) Kuntze | Revis. gen. pl. 3(3):535 (1898) |
| Tubiporus edulis subsp. aereus (Bull.) Maire | Mém. Soc. Sci. Nat. Maroc 45:87 (1937) |
| Boletus edulis f. aereus (Bull.) Vassilkov | Compl. Fl. Champ. Supér. Maroc:32 (1955) |
| Boletus edulis f. aereus (Bull.) Vassilkov | Belyi Grib:19 (1966) |
| Boletus cravetta Bellardi | Append. Flor. Pedemont.:73 (1792) |
| Boletus aereus var. cravetta (Bellardi) DC. | Fl. franç. 5/6:42 (1815) |
| Boletus cepa Thore | Essai Chloris Dép. Landes:482 (1803) |
| Boletus aereus var. cepa (Thore) DC. | Fl. franç. 5/6:42 (1815) |
| Boletus aereus var. leucoporus Pers. | Mycologia Europaea 2:138 (1825) |
| Boletus aereus f. citrinus Camello & De la Peña | Tarrelos 19:35 (2017) |
Межы таксона і абмежаванні вызначэння
Badania molekularne Beugelsdijka i współpracowników z 2008 r. wykazały odrębność czterech europejskich linii ewolucyjnych odpowiadających gatunkom Boletus aereus, Boletus edulis, Boletus pinophilus oraz Boletus reticulatus na podstawie sekwencji regionu ITS1–5.8S–ITS2 oraz genu dehydrogenazy aldehydu 3-fosfoglicerynowego (GAPDH). Dwie próby Boletus aereus z Holandii oznaczono symbolami SvdL49 i SvdL94; zarejestrowano dla nich sekwencje ITS (odpowiednio EU417844 i EU417845) oraz GAPDH (EU417876 i EU417877), przy czym domniemanym partnerem mikoryzowym w obu stanowiskach był dąb (Quercus). Analiza filogenetyczna objęła 31 taksonów, 1356 pozycji sekwencji i 96 pozycji informatywnych dla parsymonii. Wyniki te potwierdzają status europejskiego materiału badawczego, nie rozstrzygają jednak granic zmienności taksonu w skali globalnej ani relacji z Boletus mamorensis.
[4]Лабараторная дыягностыка
Dane ustrukturyzowane
Скурка шапкі
- Шырыня элементаў скуркі капялюшыка
- Шырыня элементаў скуркі капялюшыка: да 11 µm. [4]
- Інкрустацыя гіф скуркі
- Інкрустацыя гіф скуркі: адсутны. [13]
- Унутрыклетачныя гранулы ў скурцы капялюшыка
- Унутрыклетачныя гранулы ў скурцы капялюшыка: наяўны. [4]
- Будова скуркі капялюшыка
- Будова скуркі капялюшыка: трыхадэрм. [13]
Споры
Матэрыял і метады даследаванняў
- Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- Materiał badania: Source-described Boletus aereus spores. 13–16 µm [15]
Materiał badania: Source-described Boletus aereus spores. 14–17 µm [17]
Materiał badania: Source-described Boletus aereus spores. 12–18 µm [1]
Materiał badania: Source-described Boletus aereus spores. 10,5–19 µm [13]
Materiał badania: Source-described Boletus aereus spores. 12–16 µm [3] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- Materiał badania: Source-described Boletus aereus spores. 4–5,5 µm [15]
Materiał badania: Source-described Boletus aereus spores. 4–6 µm [1]
Materiał badania: Source-described Boletus aereus spores. 4–5 µm [3]
Materiał badania: Source-described Boletus aereus spores. 3,5–7 µm [13]
Materiał badania: Source-described Boletus aereus spores. 4,5–6 µm [17]
Metody i zapisy źródłowe — Boletus aereus pileipellis elements in Beugelsdijk2008 Table2
Szerokość elementów skórki; Ziarnistości wewnątrz elementów skórki — zapis źródłowy: „Pileipellis elements up to11µm wide, with fine intracellular grains; exact aereus Table2 row.” [4]
Metody i zapisy źródłowe — Source-described Boletus aereus cap cuticle
Metody i zapisy źródłowe — Source-described Boletus aereus spores
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „S01 describes dimensions, elongate-ellipsoid to fusiform shape and smooth surface; technique, preparation, N and measurement extent unreported.” [1]
Metody i zapisy źródłowe — Source-described Boletus aereus spores
Długość zarodnika; Kształt zarodnika; Szerokość zarodnika — zapis źródłowy: „S03 PDF69 recommends observation in KOH (da osservare con KOH); it does not document an actually performed preparation or measurement protocol.” [3]
Metody i zapisy źródłowe — Source-described Boletus aereus spores
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Source species description, collection, preparation, technique, N and measurement extent unreported.” [13]
Metody i zapisy źródłowe — Source-described Boletus aereus spores
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Source identification guide; photographed spores do not establish specimen linkage, full method or N.” [15]
Metody i zapisy źródłowe — Source-described Boletus aereus spores
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Species key result; method, preparation, specimen linkage, N and measurement extent unreported.” [17]
Праверка пашырэння — абсяг і абмежаванні
Materiał: Udokumentowany polski zbiór z województwa lubelskiego.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[2]Аб’ём апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Пошук рэгіёнаў распаўсюджання патрабуе разліку.
- Сувязі папярэдніх высноў патрабуюць паўторнай праверкі.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Найважнейшыя рэчывы і іх дзеянне
W badaniach składu chemicznego prowadzonych w 2020 r. przez Zhanga i współpracowników wykorzystano owocniki pozyskane od Teng Hui Agriculture w Kunming (prowincja Junnan, Chiny), oznaczone taksonomicznie przez prof. Li Yu z Rolniczego Uniwersytetu w Jilin. Próbki wysuszono w temperaturze 60 ± 2 °C i rozdrobniono do frakcji przechodzącej przez sito o gęstości 60 mesh.
[6]W analizach biochemicznych zawartość cukrów ogółem wyznaczono metodą fenolowo-siarkową, cukry redukujące oznaczono odczynnikiem kwasu 3,5-dinitrosalicylowego (DNS), białko ogólne metodą Kjeldahla, a tłuszcz surowy ekstrakcją Soxhleta. Profil aminokwasowy zbadano na analizatorze L8900 po 22-godzinnej hydrolizie w 6 M HCl w 110 ± 1 °C. Pierwiastki mineralne analizowano metodą optycznej spektrometrii emisyjnej ze wzbudzeniem w plazmie indukcyjnie sprzężonej (ICP-OES), a profil kwasów tłuszczowych techniką chromatografii gazowej sprzężonej ze spektrometrią mas (GC-MS QP2010). Flawonoidy i triterpeny oznaczano kolorymetrycznie, mannitol jodometrycznie, witaminy i nukleotydy metodą HPLC, sterole spektrofotometrycznie w UV, a polifenole metodą Folina–Ciocalteu.
[6]Główne składniki odżywcze i witaminy w wysuszonych owocnikach (Main components, %):
| Składnik | Zawartość (%) |
|---|---|
| Cukry ogółem (Total sugar) | 30,60 |
| Mannitol | 17,90 |
| Popiół ogólny (Total ash) | 5,60 |
| Białko (Protein) | 24,30 |
| Triterpeny ogółem (Total triterpenes) | 1,44 |
| Flawonoidy ogółem (Total flavonoids) | 0,23 |
| Cukry redukujące (Reducing sugar) | 4,80 |
| Nukleotydy (Nucleotide) | nie wykryto (ND) |
| Tłuszcz surowy (Crude fat) | 12,20 |
| Sterole (Sterols) | 1,40 |
| Polifenole (Polyphenols) | 2,03 |
| Witamina A | nie wykryto (ND) |
| Witamina B1 | nie wykryto (ND) |
| Witamina B2 (×10⁻³) | 1,71 |
| Witamina B3 (×10⁻²) | 4,16 |
| Witamina B6 | nie wykryto (ND) |
| Witamina C | nie wykryto (ND) |
| Witamina D2 | nie wykryto (ND) |
| Witamina D3 | nie wykryto (ND) |
| Witamina E | nie wykryto (ND) |
Profil aminokwasowy suszu (Amino acid, %):
| Aminokwas | Zawartość (%) |
|---|---|
| Kwas asparaginowy (Asp) | 0,32 |
| Izoleucyna (Iso) | 0,18 |
| L-Treonina (Thr) | 0,21 |
| Leucyna (Leu) | 0,30 |
| Seryna (Ser) | 0,19 |
| Tyrozyna (Tyr) | 0,16 |
| Kwas glutaminowy (Glu) | 0,39 |
| Fenyloalanina (Phe) | 0,18 |
| Glicyna (Gly) | 0,30 |
| Lizyna (Lys) | 0,16 |
| Alanina (Ala) | 0,26 |
| Histydyna (His) | 0,16 |
| Cystyna (Cys) | 0,03 |
| Arginina (Arg) | 0,17 |
| Walina (Val) | 0,15 |
| Prolina (Pro) | 0,15 |
| Metionina (Met) | 0,60 |
Zawartość pierwiastków mineralnych w badanym materiale (Minerals, %):
| Pierwiastek | Zawartość (%) |
|---|---|
| Rtęć (Hg) (×10⁻⁵) | 8,76 |
| Mangan (Mn) (×10⁻³) | 2,38 |
| Ołów (Pb) (×10⁻⁵) | 2,32 |
| Chrom (Cr) (×10⁻⁴) | 2,27 |
| Selen (Se) (×10⁻⁴) | 6,81 |
| Wapń (Ca) (×10⁻²) | 1,83 |
| Arsen (As) (×10⁻⁵) | 6,58 |
| Miedź (Cu) (×10⁻³) | 2,70 |
| Kadm (Cd) (×10⁻⁵) | 8,32 |
| Sód (Na) (×10⁻²) | 2,56 |
| Cynk (Zn) (×10⁻²) | 1,02 |
| Potas (K) | 1,74 |
| Żelazo (Fe) (×10⁻²) | 3,78 |
Profil kwasów tłuszczowych w badanym suszu (Fatty acid, %):
| Kwas tłuszczowy | Zawartość (%) |
|---|---|
| Kwas kaprynowy (C10:0) | nie wykryto (ND) |
| Kwas γ-linolenowy (C18:3n6) | nie wykryto (ND) |
| Kwas undekanowy (C11:0) | nie wykryto (ND) |
| Kwas arachidowy (C20:0) (×10⁻³) | 5,44 |
| Kwas laurynowy (C12:0) (×10⁻⁴) | 3,60 |
| Kwas paullinowy (C20:1) (×10⁻³) | 7,34 |
| Kwas tridekanowy (C13:0) | nie wykryto (ND) |
| Kwas eikozadienowy (C20:2) (×10⁻³) | 3,62 |
| Kwas mirystynowy (C14:0) (×10⁻³) | 6,63 |
| Kwas eikozatrienowy (C20:3n3) (×10⁻⁴) | 9,78 |
| Kwas mirystoleinowy (C14:1n5) | nie wykryto (ND) |
| Kwas dihomo-γ-linolenowy (C20:3n6) | nie wykryto (ND) |
| Kwas pentadekanowy (C15:0) (×10⁻²) | 1,73 |
| Kwas arachidonowy (C20:4n6) (×10⁻³) | 2,71 |
| Kwas cis-10-pentadecenowy (C15:1n5) | nie wykryto (ND) |
| Kwas eikozapentaenowy (C20:5n3) | nie wykryto (ND) |
| Kwas heksadekanowy / palmitynowy (C16:0) | 0,96 |
| Kwas heneikozanowy (C21:0) (×10⁻³) | 1,58 |
| Kwas palmitooleinowy (C16:1n7) | 0,03 |
| Kwas dokozanowy / behenowy (C22:0) (×10⁻²) | 1,53 |
| Kwas heptadekanowy (C17:0) | 0,01 |
| Kwas erukowy (C22:1n9) (×10⁻³) | 1,87 |
| Kwas heptadecenowy (C17:1n7) | 0,01 |
| Ester metylowy kwasu cis-13,16-dokozadienowego (C22:2) | nie wykryto (ND) |
| Kwas stearynowy (C18:0) | 0,18 |
| Kwas dokozaheksaenowy (C22:6n3) | nie wykryto (ND) |
| Kwas oleinowy (C18:1n9) | 1,23 |
| Kwas trikozanowy (C23:0) (×10⁻³) | 1,72 |
| Kwas elaidynowy (C18:1n9t) | nie wykryto (ND) |
| Kwas lignocerynowy / tetrakozanowy (C24:0) (×10⁻²) | 1,85 |
| Kwas linolowy (C18:2n6c) | 2,66 |
| Kwas nerwonowy (C24:1n9) (×10⁻³) | 6,74 |
| Kwas translinolowy (C18:2n6t) | nie wykryto (ND) |
| Kwas kaprylowy / oktanowy (C8:0) | nie wykryto (ND) |
| Kwas α-linolenowy (C18:3n3) | nie wykryto (ND) |
W publikacji Zhanga i współpracowników odnotowano rozbieżność w podawanych stężeniach witamin B2 i B3: tabela 1 wymienia witaminę B2 z wartością 1,71 przy mnożniku ×10⁻³ w kategorii procentowej oraz witaminę B3 z wartością 4,16 przy mnożniku ×10⁻², podczas gdy w tekście wyników podano odpowiednio 0,02% i 0,42%.
[6]W badaniach Alaimo i współpracowników z 2018 r. przeanalizowano zawartość 28 pierwiastków w owocnikach Boletus aereus i Clitopilus prunulus zebranych na 11 niezanieczyszczonych stanowiskach na Sycylii. U borowika ciemnobrązowego mediany stężeń wynosiły: dla potasu 31 290 µg/g w kapeluszach i 24 009 µg/g w trzonach, a dla cynku odpowiednio 107 µg/g i 57 µg/g. Szereg malejący najobficiej występujących pierwiastków określono jako K > Na > Ca > Mg > Fe > Al > Rb > Zn.
[12]W materiale z Sycylii większość analizowanych pierwiastków kumulowała się silniej w kapeluszach niż w trzonach. Skład mineralny grzybów rosnących na podłożu wulkanicznym różnił się od próbek zebranych na podłożu osadowym, natomiast odczyn gleby (pH) nie wykazał istotnego statystycznie wpływu w badanym zbiorze. W porównaniu międzygatunkowym rosnący na tych samych stanowiskach Clitopilus prunulus akumulował 2–4 razy więcej Co, Cr, Fe, Mg, Mo, Pb, U i V, podczas gdy Boletus aereus zawierał wyższe stężenia Cu, Se i Tl.
[12]Месцапражыванне і сустракальнасць
Асяроддзе, рэгіён і сезон
Borowik ciemnobrązowy jest gatunkiem ciepłolubnym. W Czechach rośnie w ciepłych lasach liściastych oraz na groblach stawów, najczęściej pod dębami, rzadziej pod bukami, wykazując preferencję do podłoży o charakterze wapiennym. W Polsce opisywany jest w ciepłych lasach liściastych, mieszanych, a także w świerczynach, na glebach gliniastych i wapiennych; tworzy związki mikoryzowe przede wszystkim z dębami oraz jodłami, a w cieplejszych rejonach południowej Europy także z kasztanem jadalnym.
[1] [2]We Włoszech podręcznik ISPRA wiąże występowanie gatunku wyłącznie z lasami liściastymi: przede wszystkim dąbrowami, w dalszej kolejności drzewostanami z kasztanem jadalnym (Castanea sativa), a znacznie rzadziej buczynami. W strefie śródziemnomorskiej mikoryzę tworzy także z dębem ostrolistnym (Quercus ilex), dębem korkowym (Quercus suber) oraz krzewami z rodzaju Cistus i gatunkami Erica arborea oraz Arbutus unedo. Stanowiska koncentrują się głównie w piętrze podgórskim.
[3]W materiale europejskim analizowanym przez Beugelsdijka i współpracowników owocniki zbierano w sąsiedztwie dębów, na ciężkich, gliniastych i często umiarkowanie wapiennych glebach, m.in. na przydrożach i w parkach. W Niemczech DGfM podaje występowanie w suchych do świeżych lasach liściastych, parkach i na cmentarzach, na podłożu gliniastym, marglistym lub wapiennym. Gatunek uznawany jest tam za rzadki, spotykany częściej w południowej części kraju.
[4] [11]W Katalonii borowik ciemnobrązowy notowany jest w odmiennym typie siedliska – pod dębami korkowymi na podłożach krzemianowych, a także pod dębami ostrolistnymi i innymi gatunkami dębów. Regionalne opracowanie wskazuje występowanie przede wszystkim w nadmorskiej części prowincji Girona, natomiast w środkowej Katalonii gatunek należy do rzadkości.
[7]Pora owocnikowania różni się w zależności od szerokości geograficznej i strefy klimatycznej. W Polsce owocniki pojawiają się od lipca do października, w Czechach od maja do października, a w Niemczech od lipca do września. W cieplejszym klimacie śródziemnomorskim (ISPRA) sezon trwa od maja do grudnia, a na Sycylii tradycyjny zbiór dokumentowano od wiosny do jesieni.
[2] [1] [3] [11] [5]W Czechach odnotowano trzy datowane stanowiska w kraju środkowoczeskim (Středočeský kraj): 8 lipca 2022 r. (nr wpisu 0087-2022-0102), 14 lipca 2022 r. (0087-2022-0096) oraz 13 września 2022 r. (0066-2022-0167).
[1]Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Крыніцы |
|---|---|---|---|
| Чэхія | Nie ustalono regionów w zapisanych danych | V–X | |
| Германія | Nie ustalono regionów w zapisanych danych | VII–IX | |
| Вялікабрытанія | Nie ustalono regionów w zapisanych danych | VIII–X |
|
| Ірландыя | Nie ustalono regionów w zapisanych danych | VIII–X |
|
| Італія | Nie ustalono regionów w zapisanych danych | V–XII |
|
| Польшча | Люблінскае ваяводства | VII–X |
|