
Macrolepiota mastoidea
Macrolepiota mastoidea
Odmiana gatunku Macrolepiota mastoidea
Jedlý

Nastavte polohu, aby sa zobrazili údaje pre váš región.


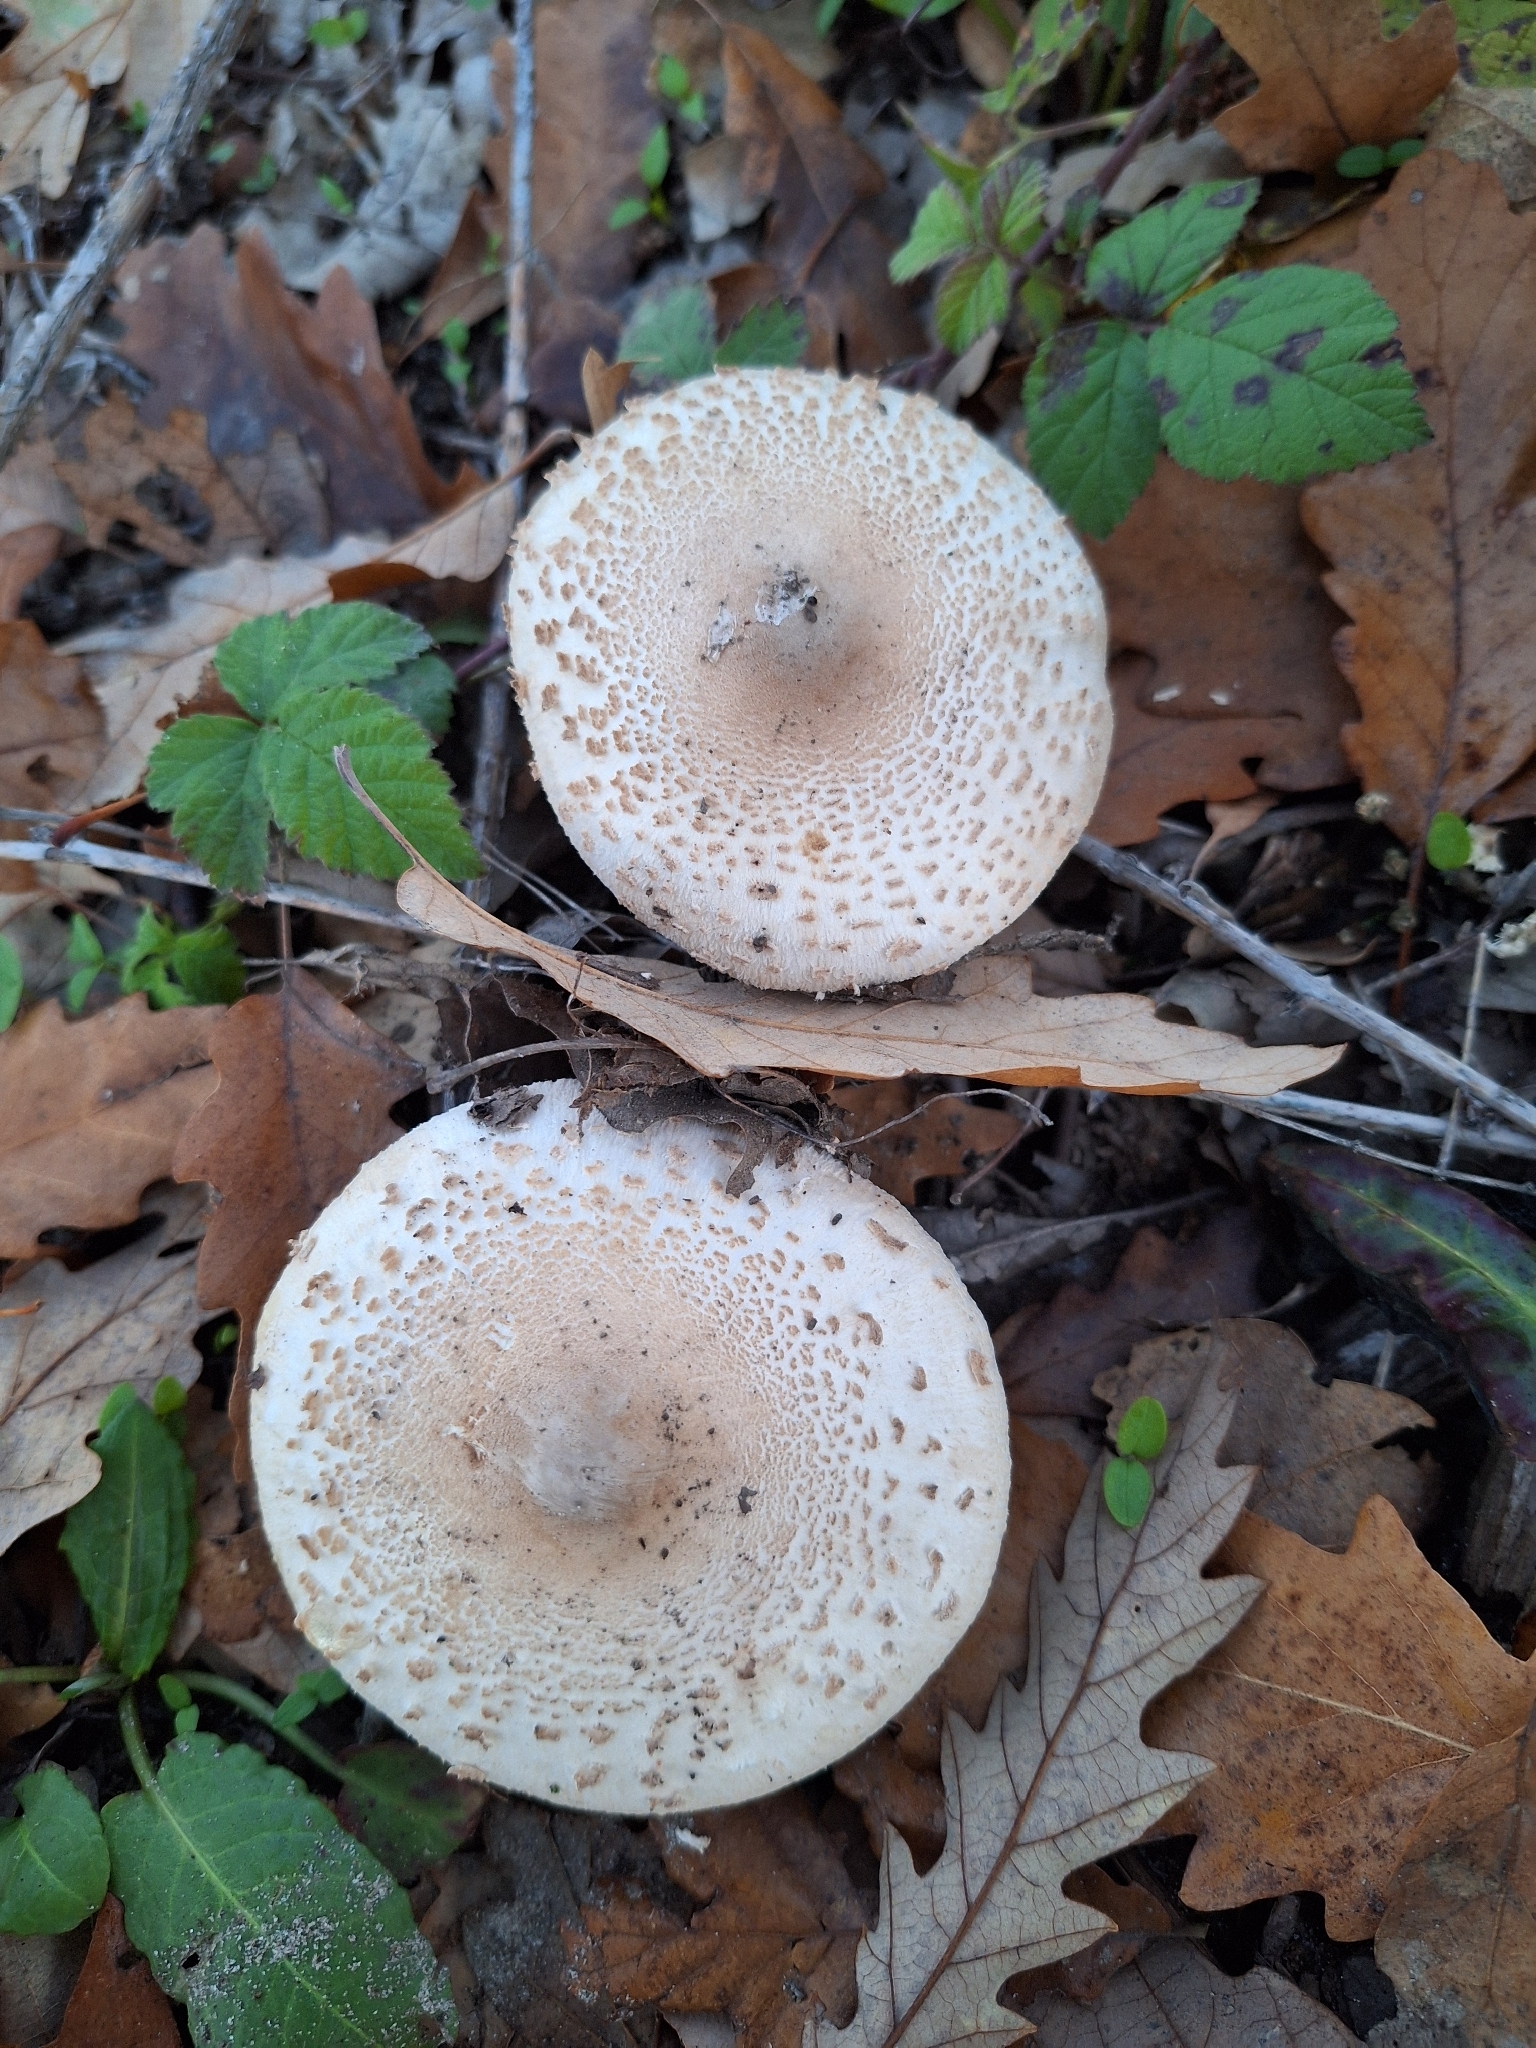
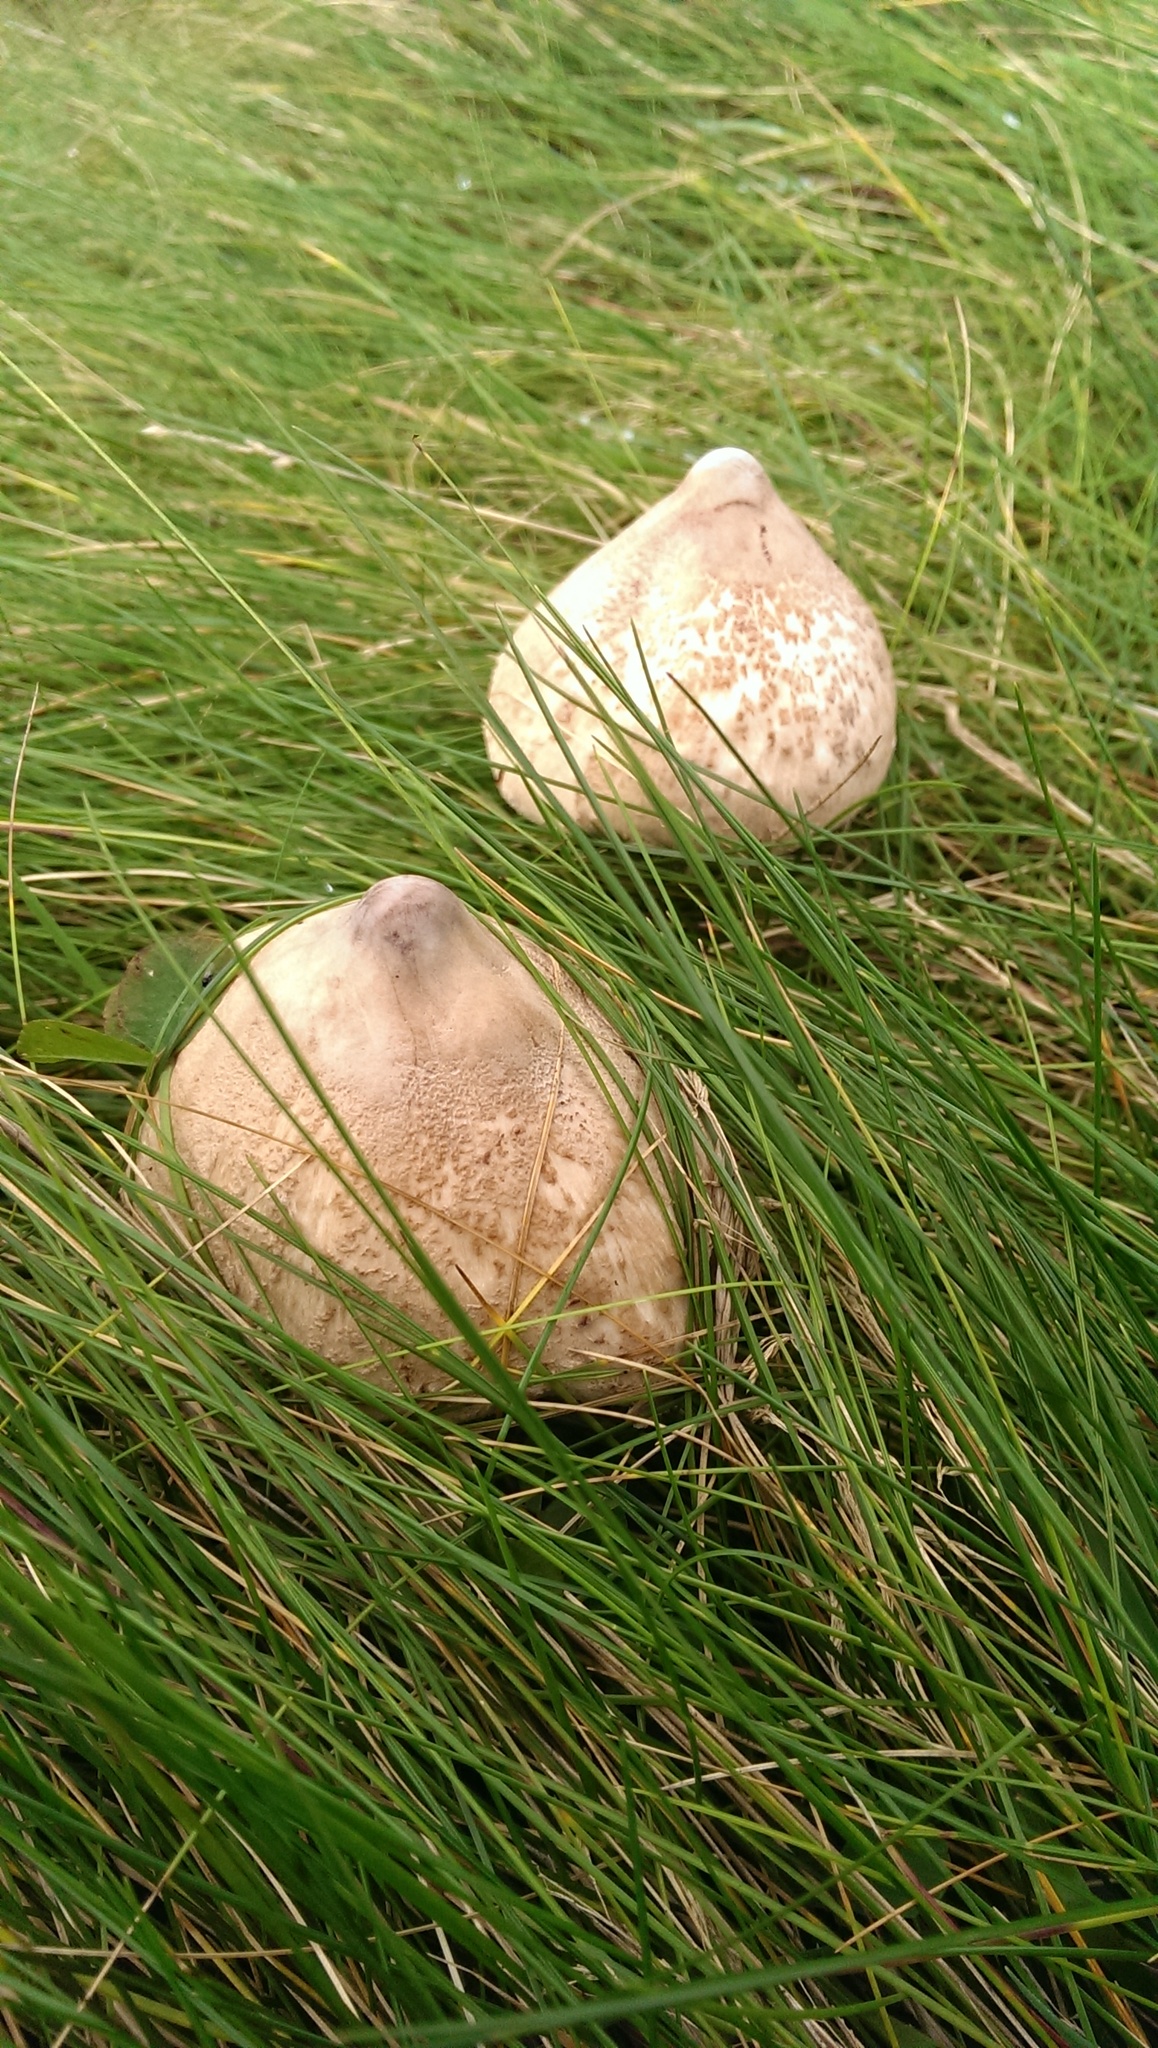
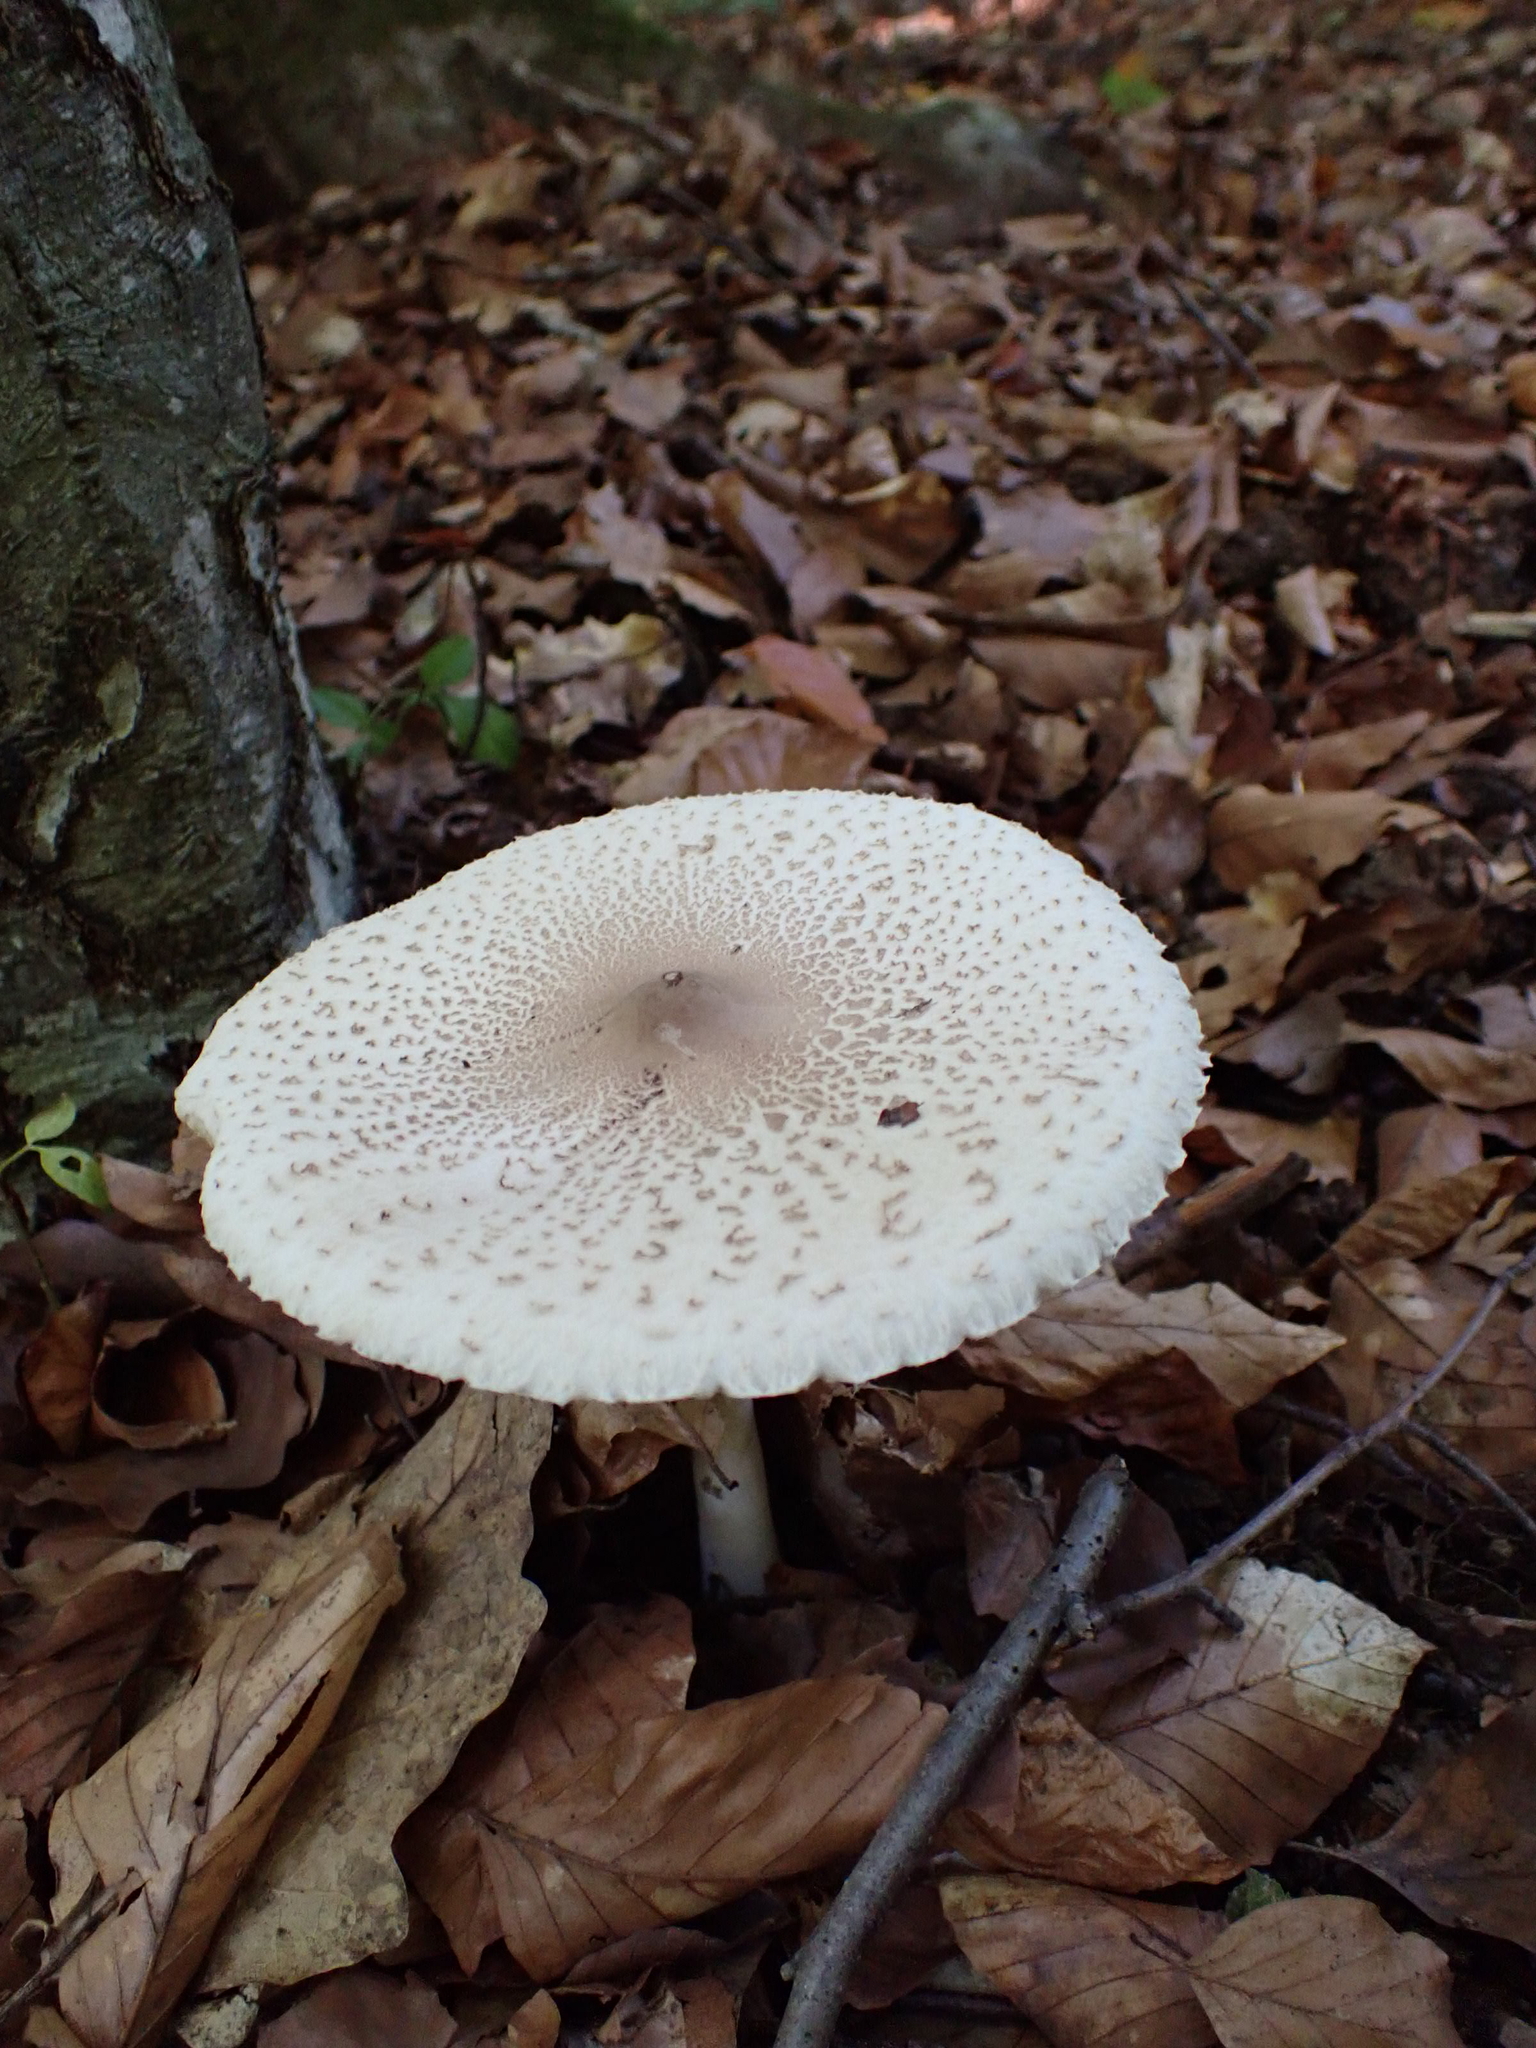
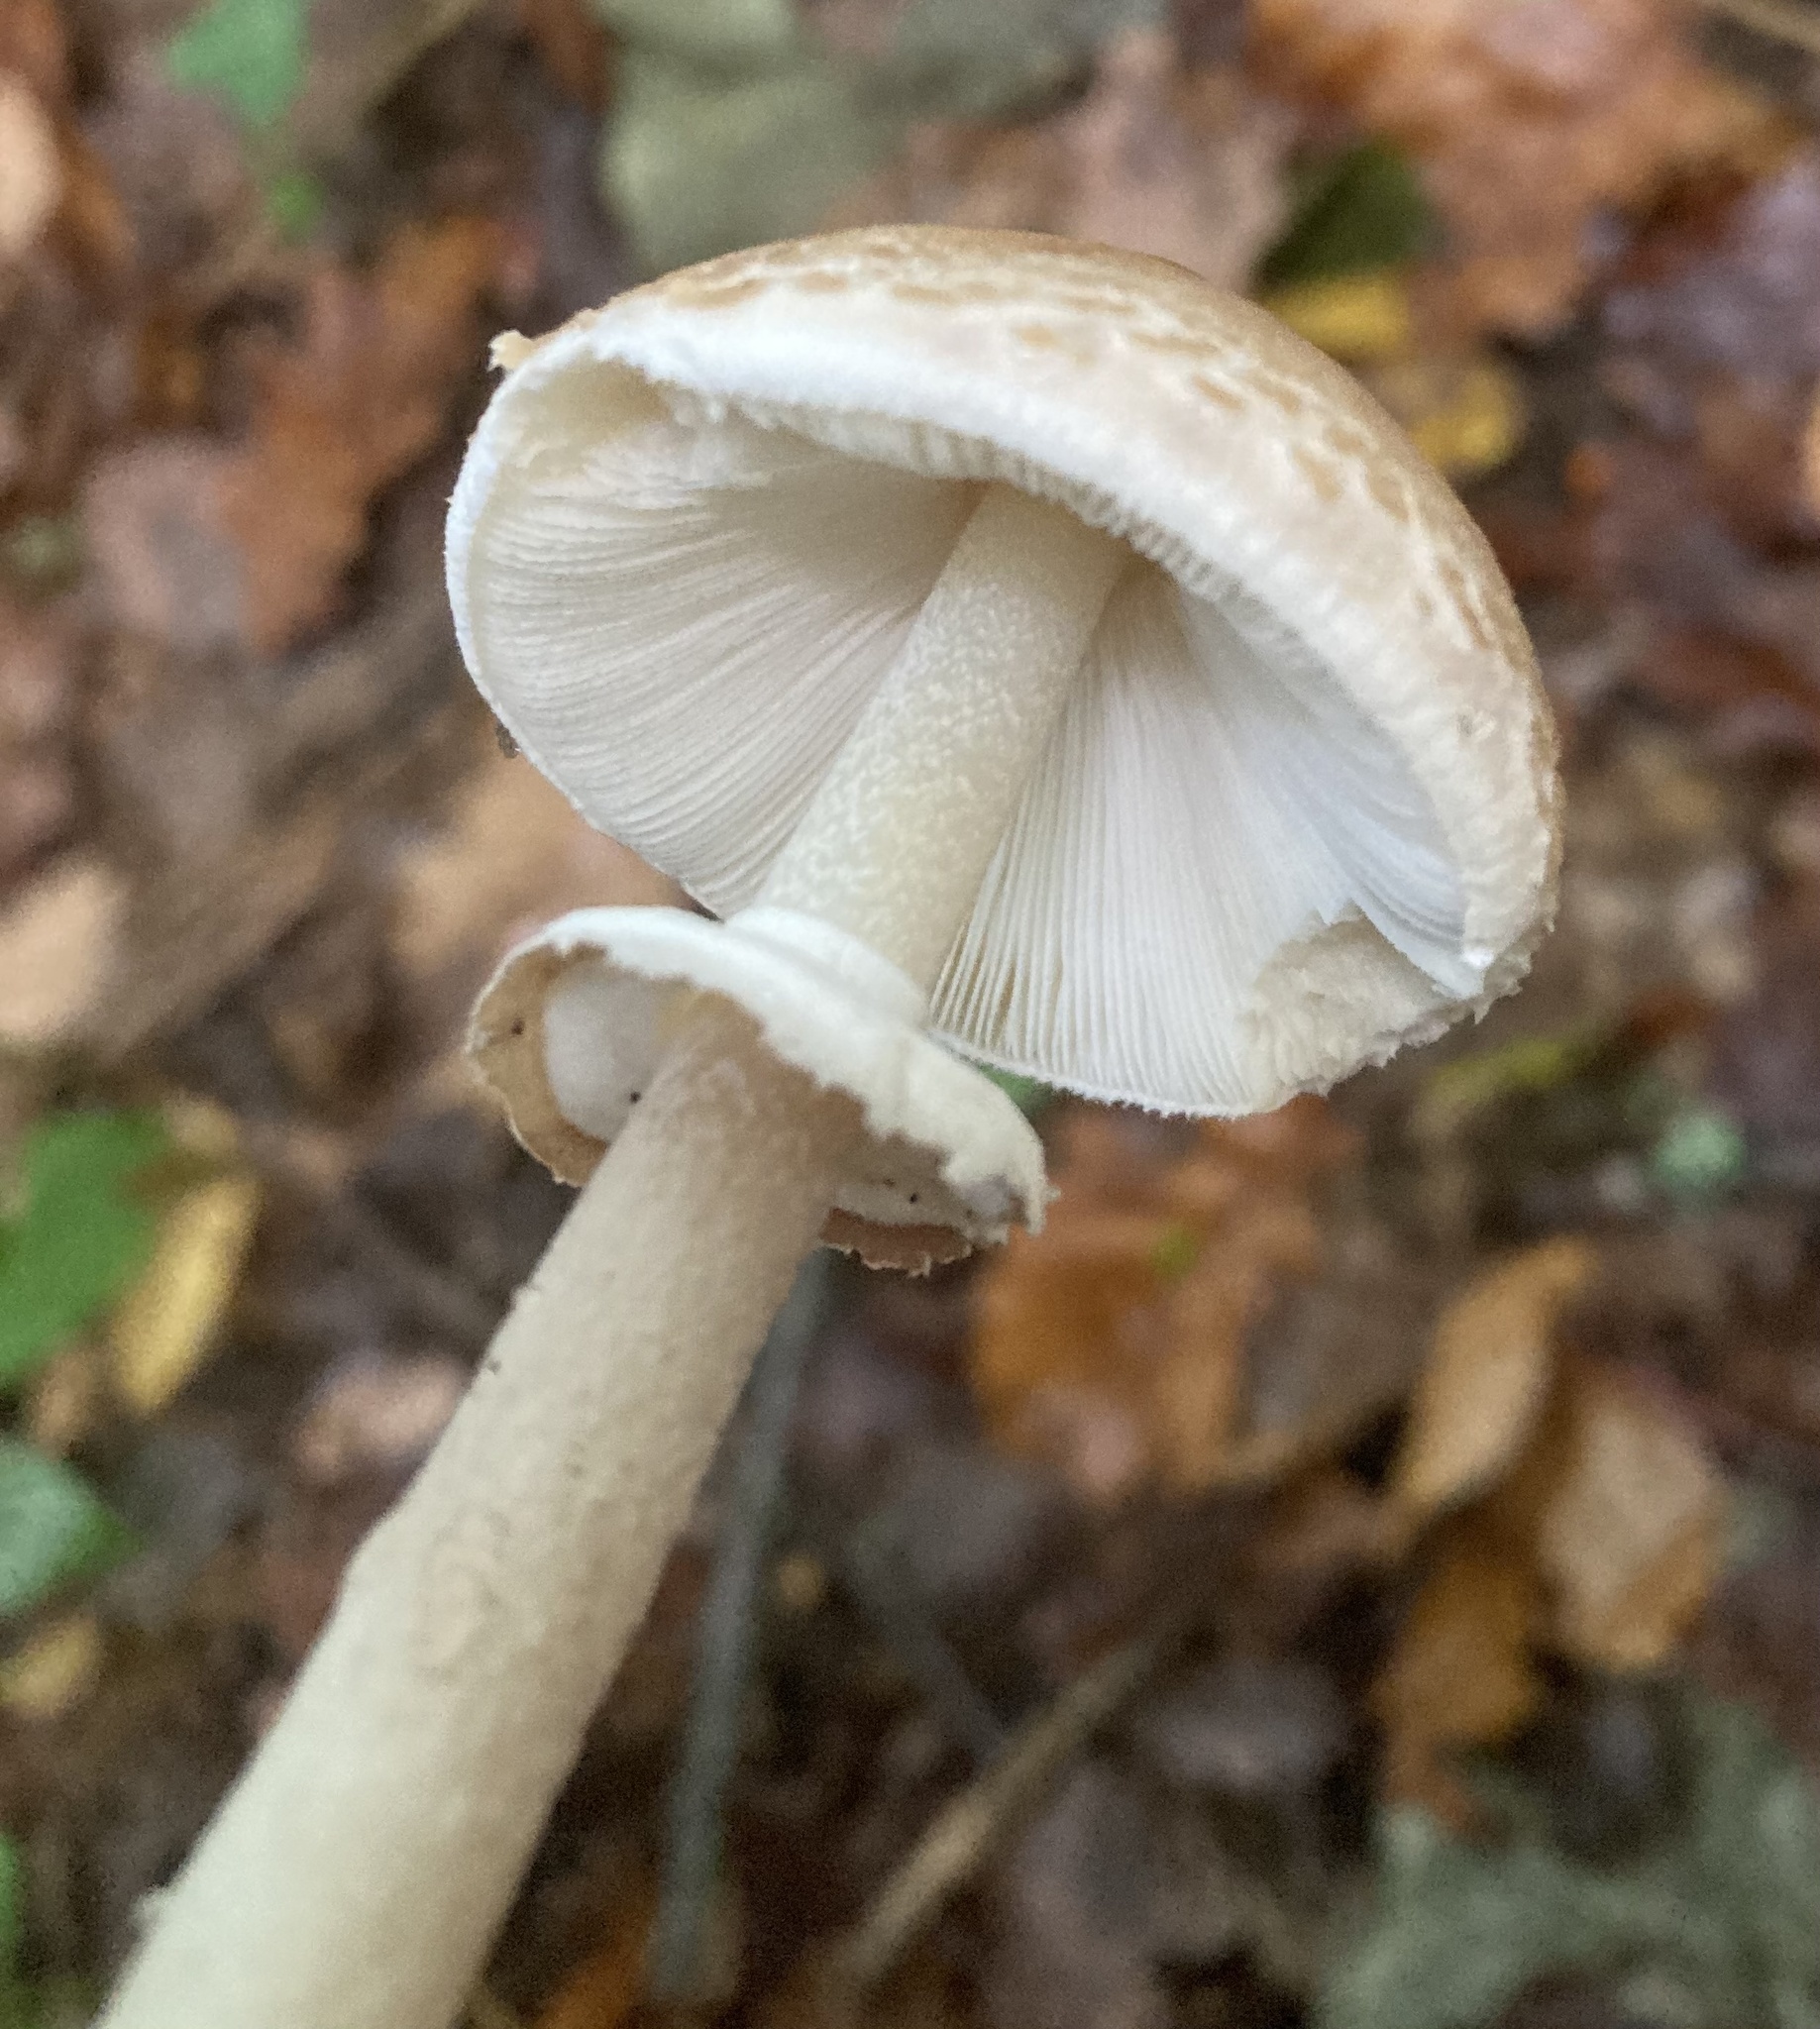
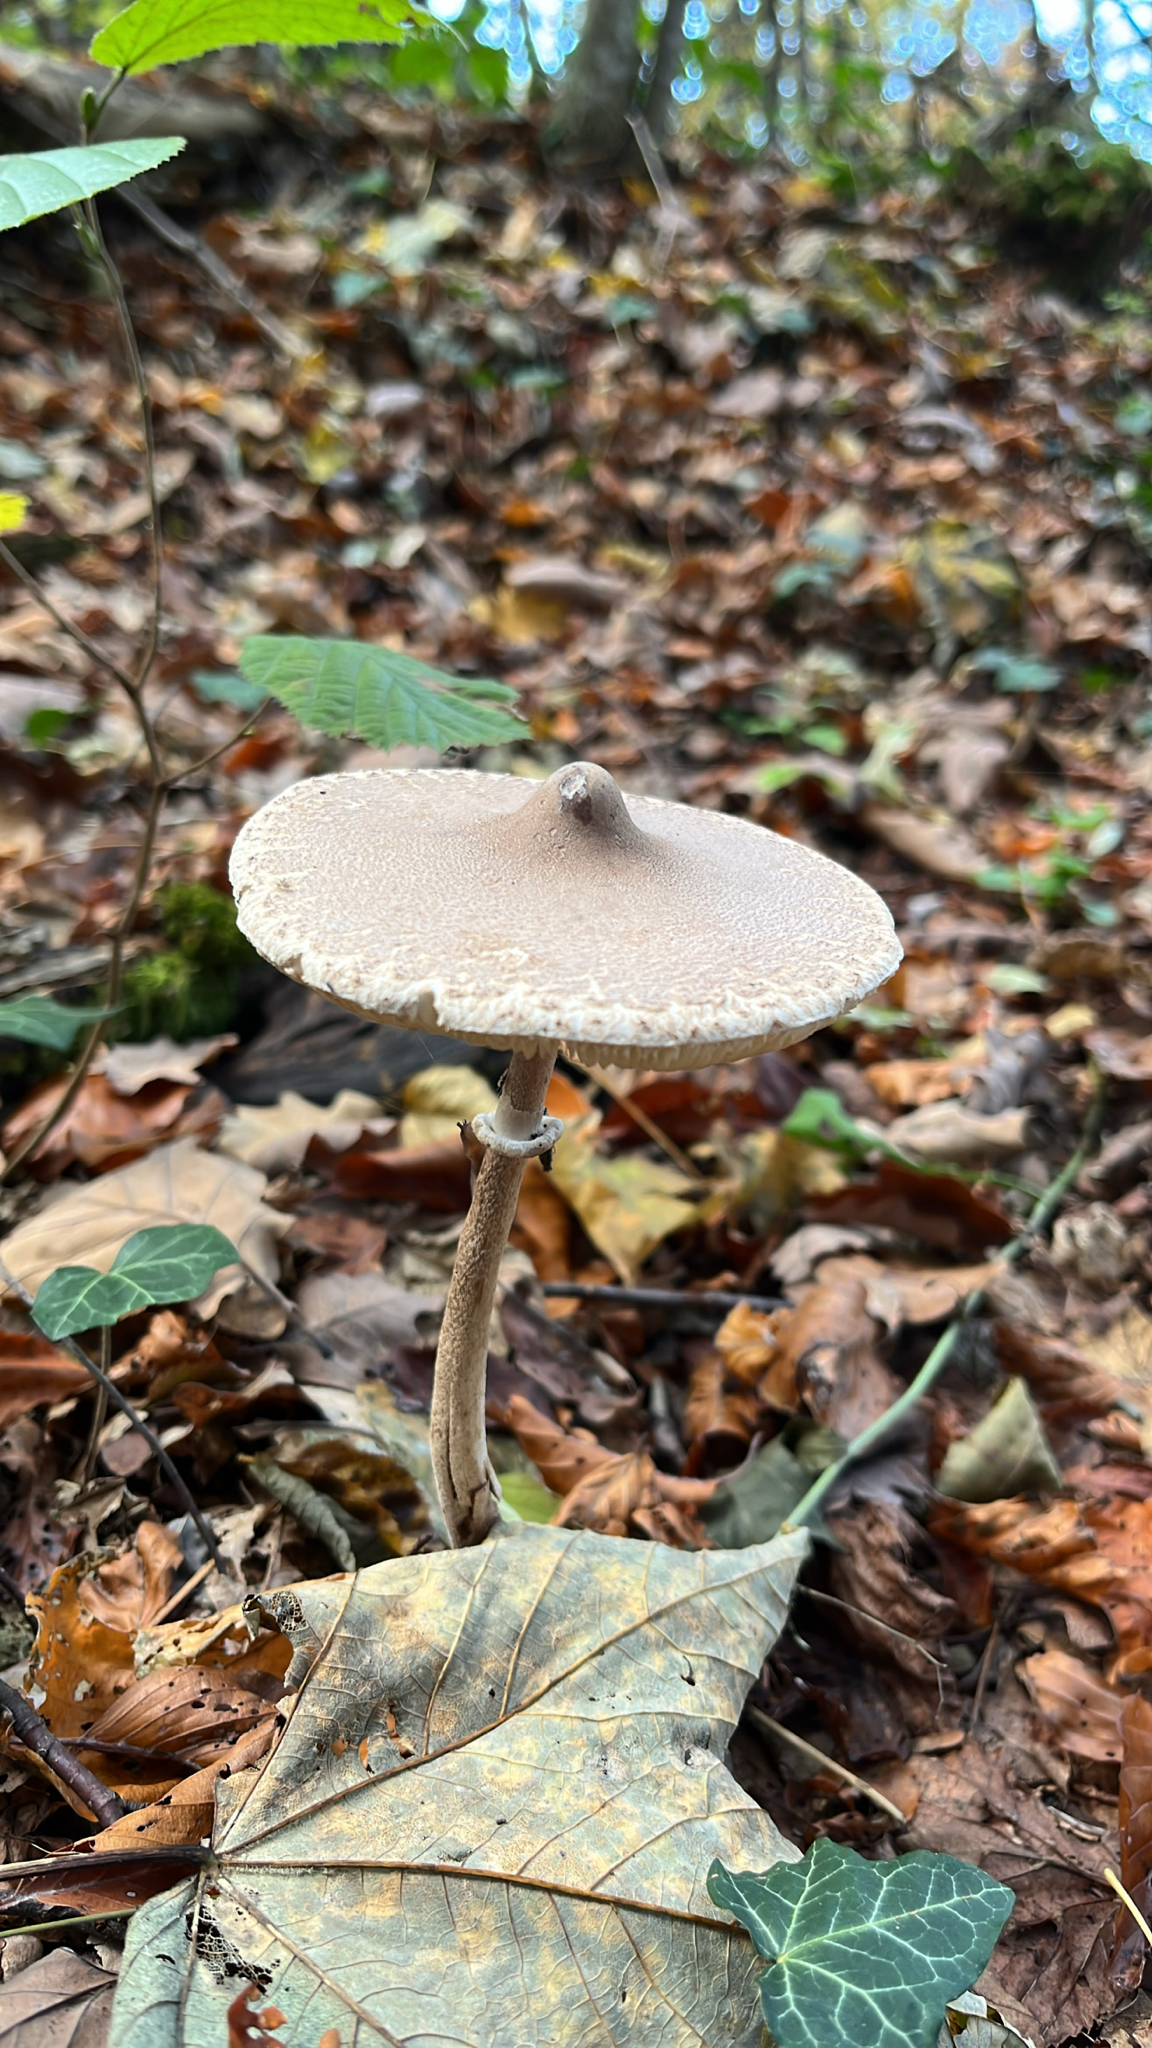
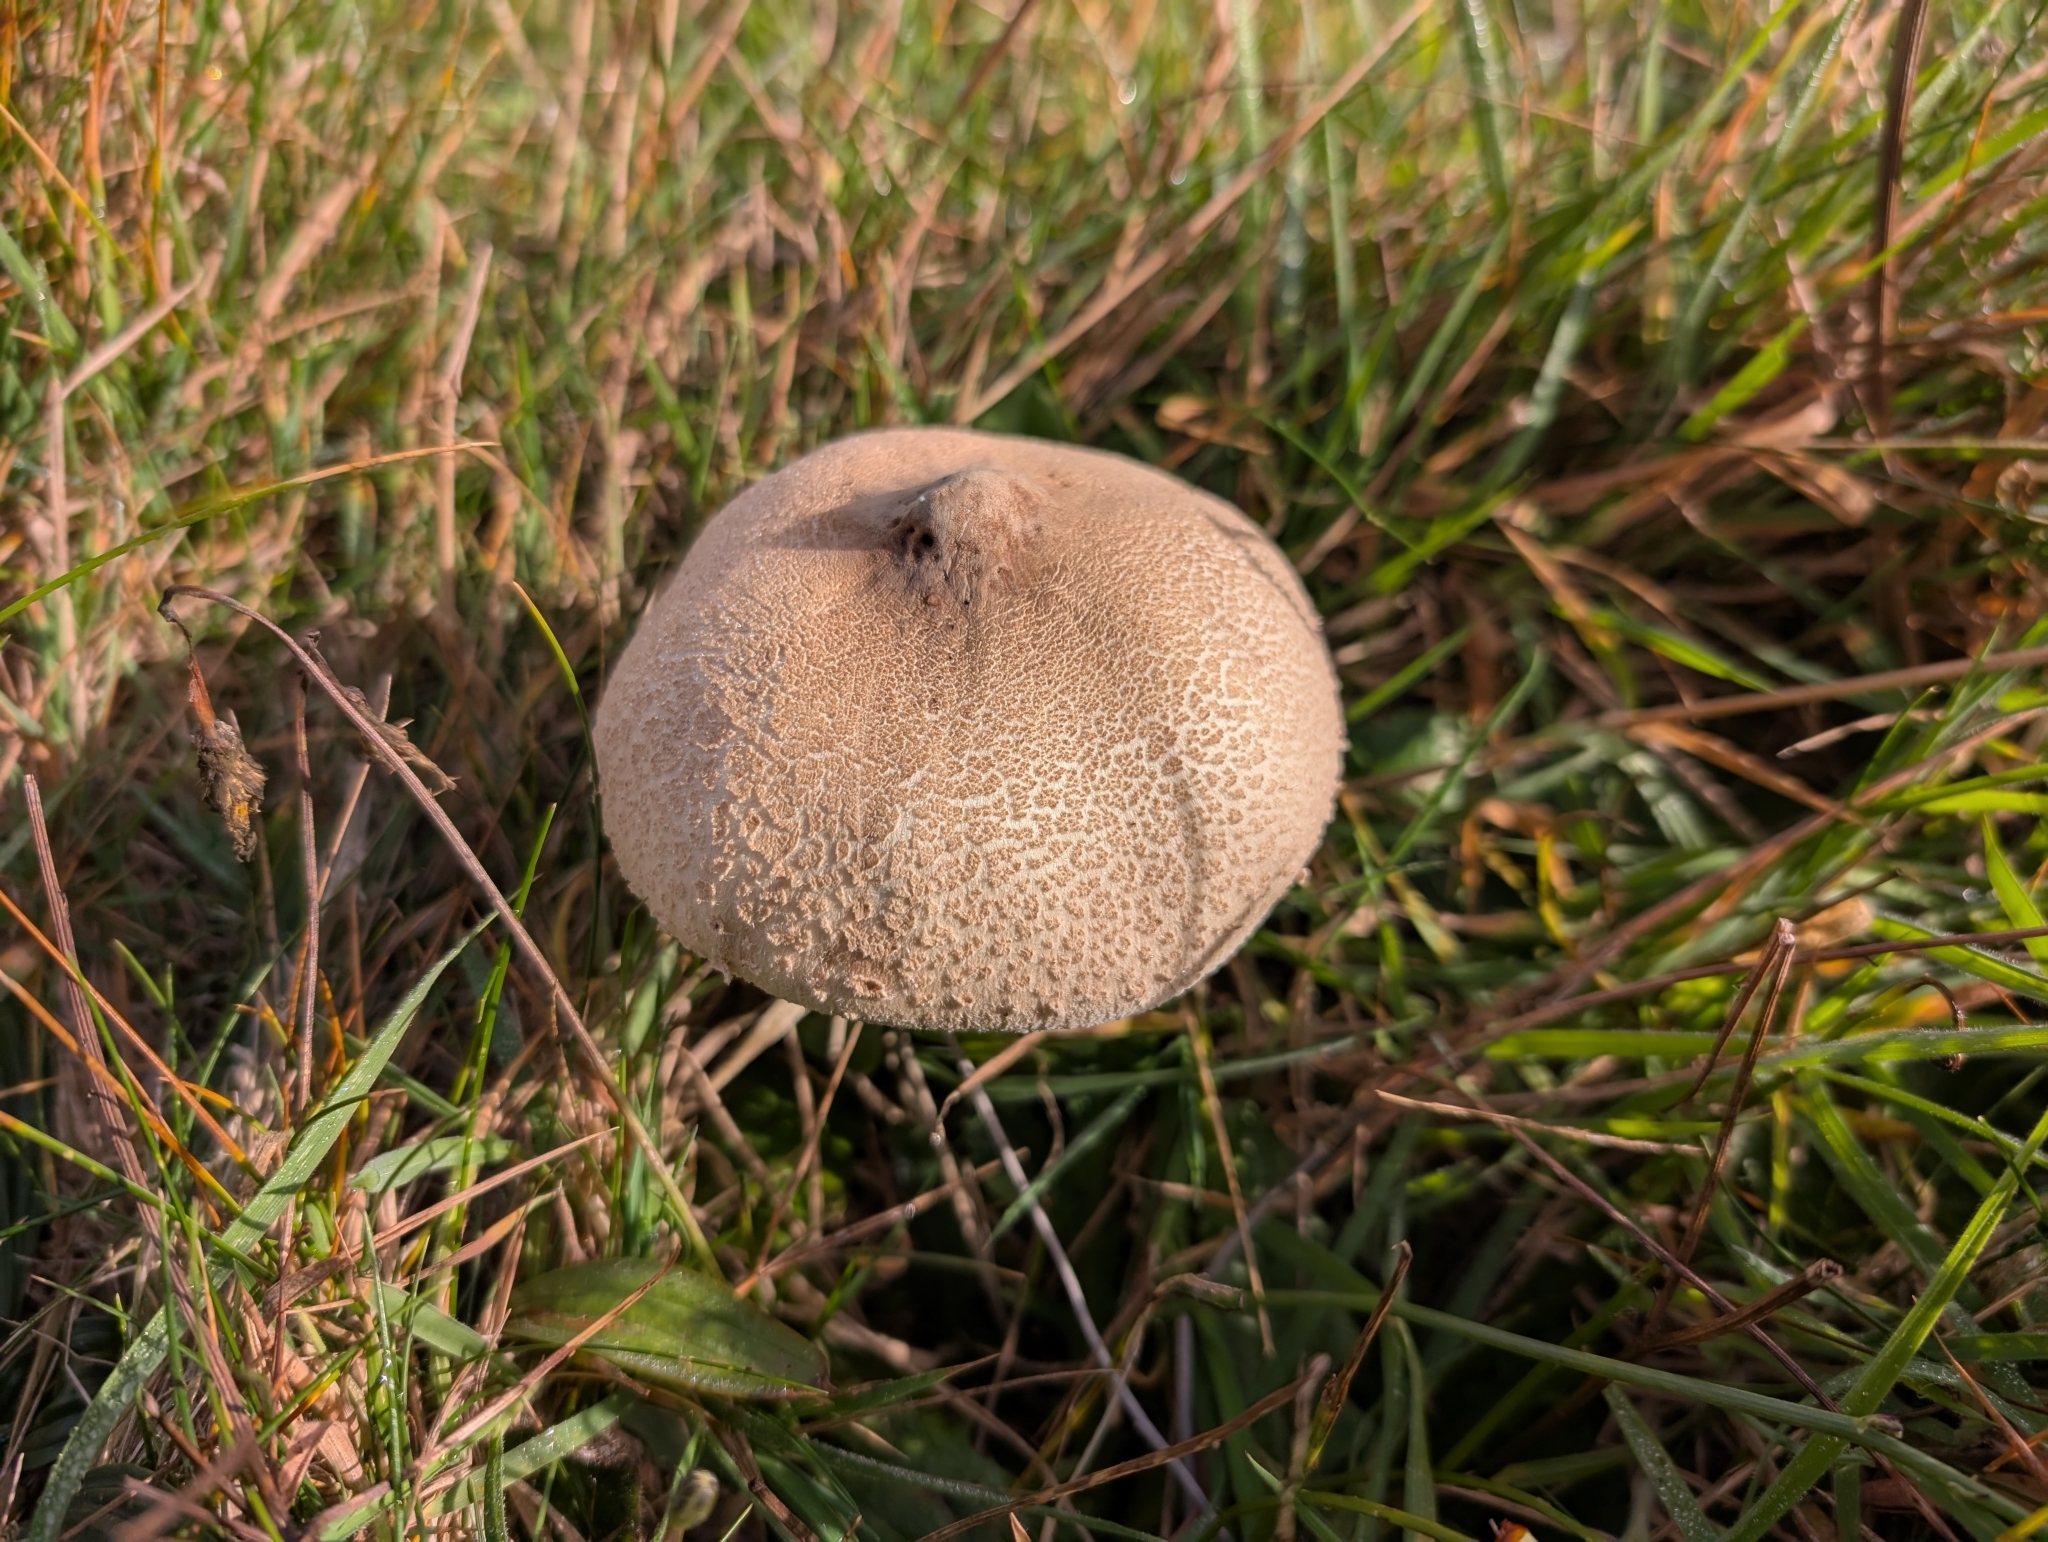
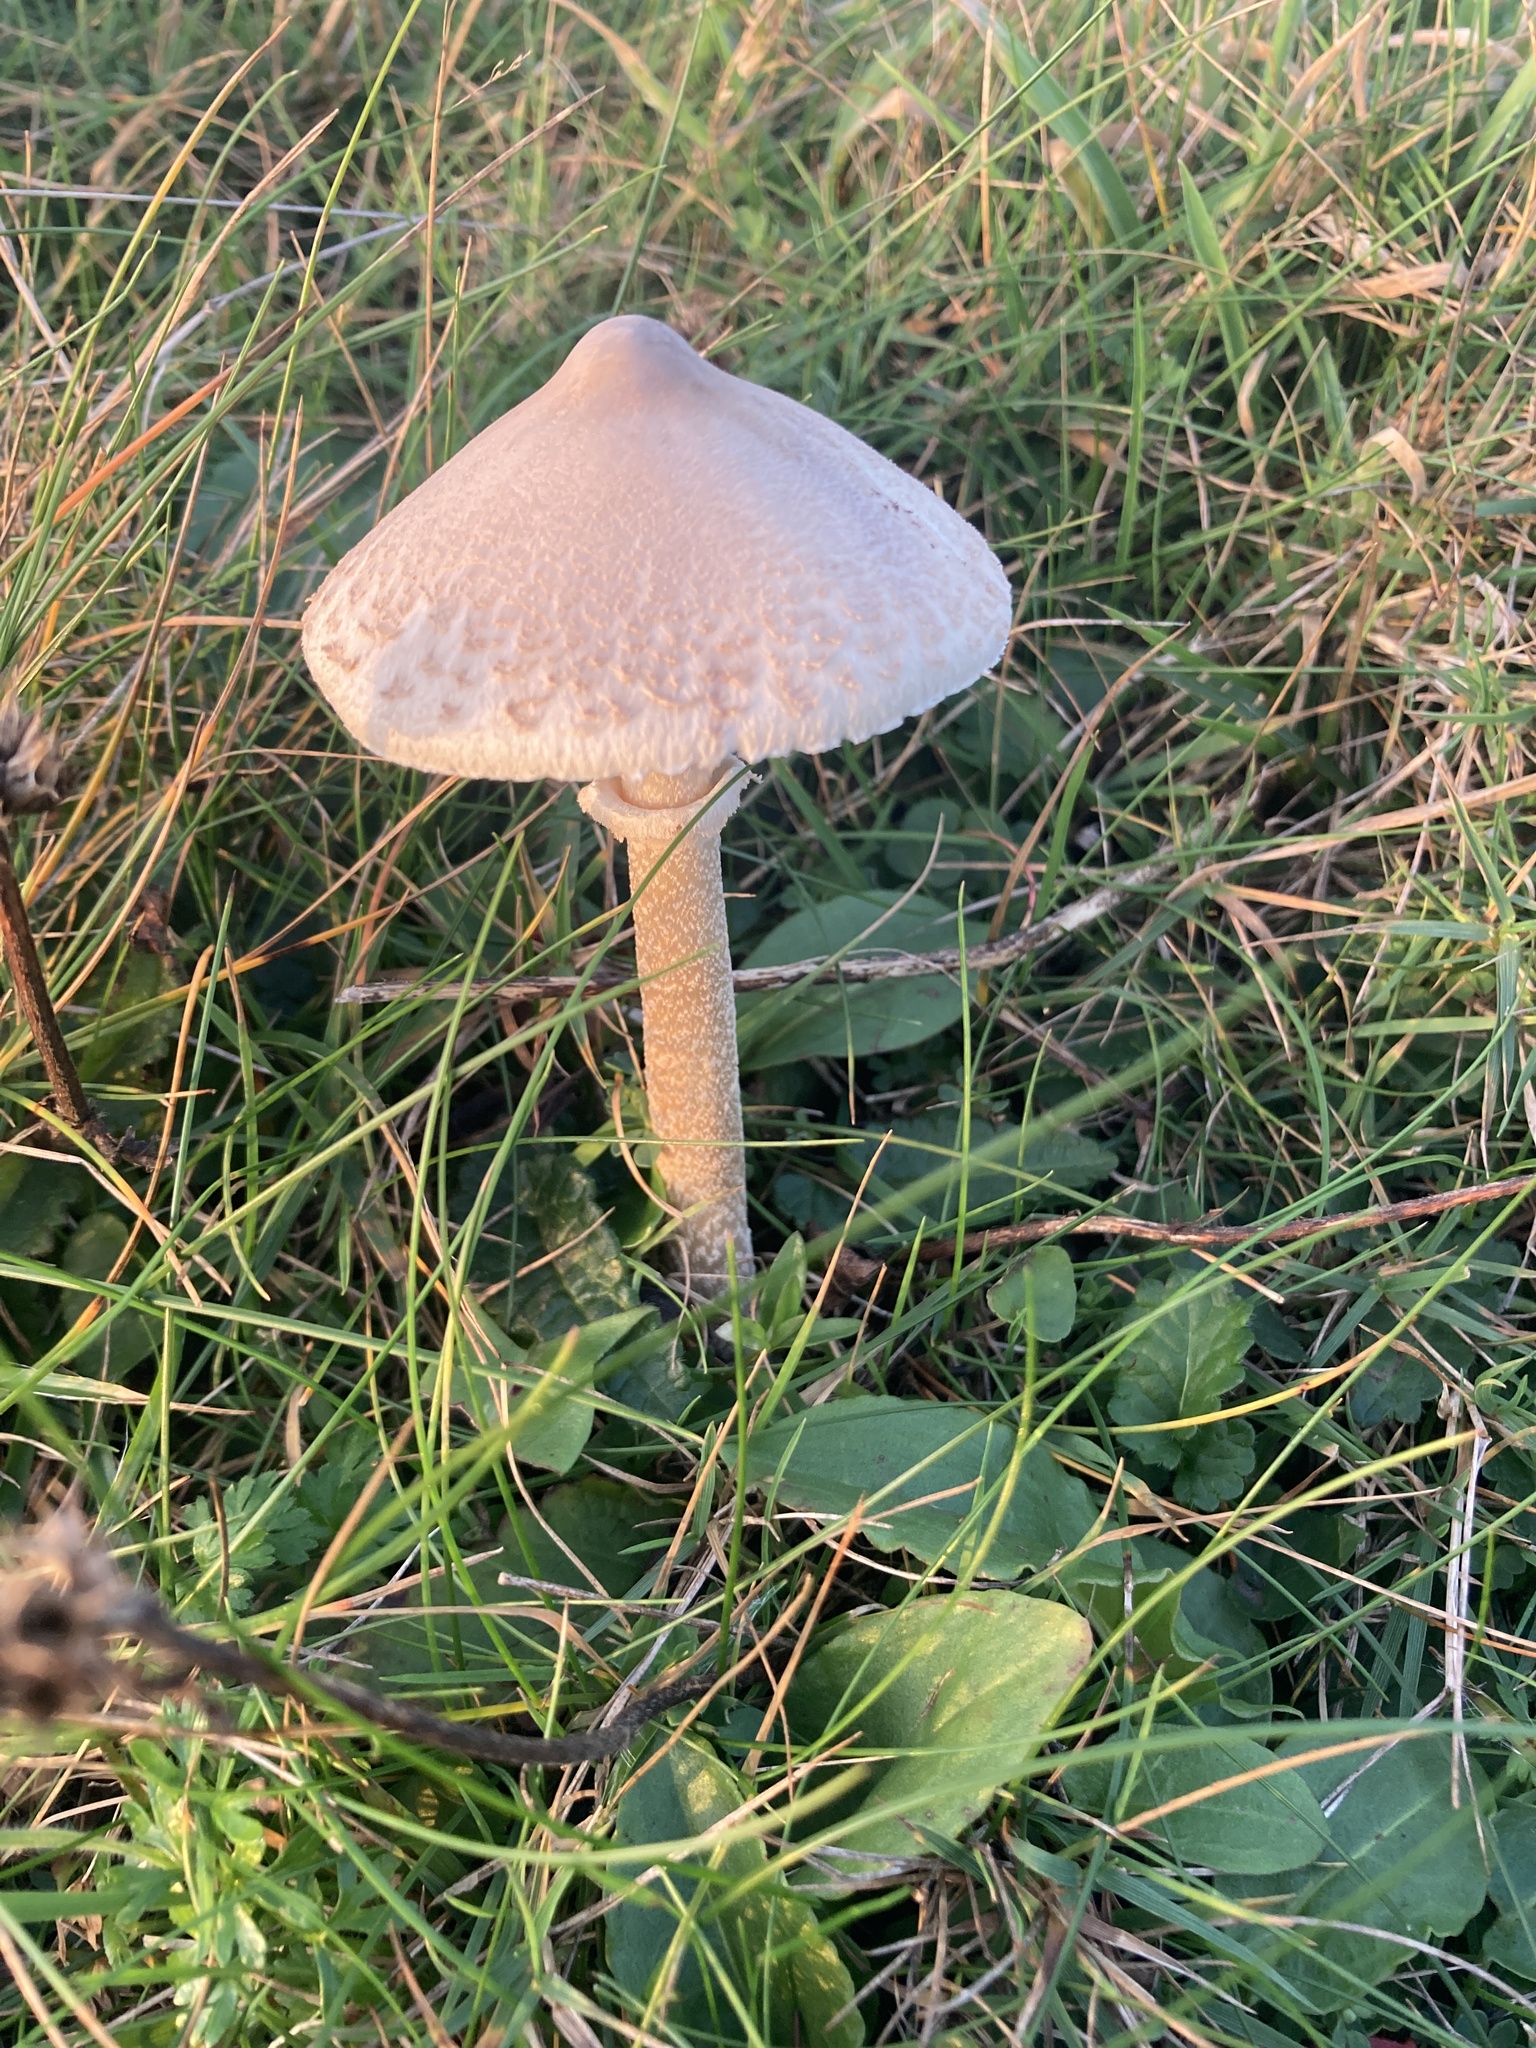
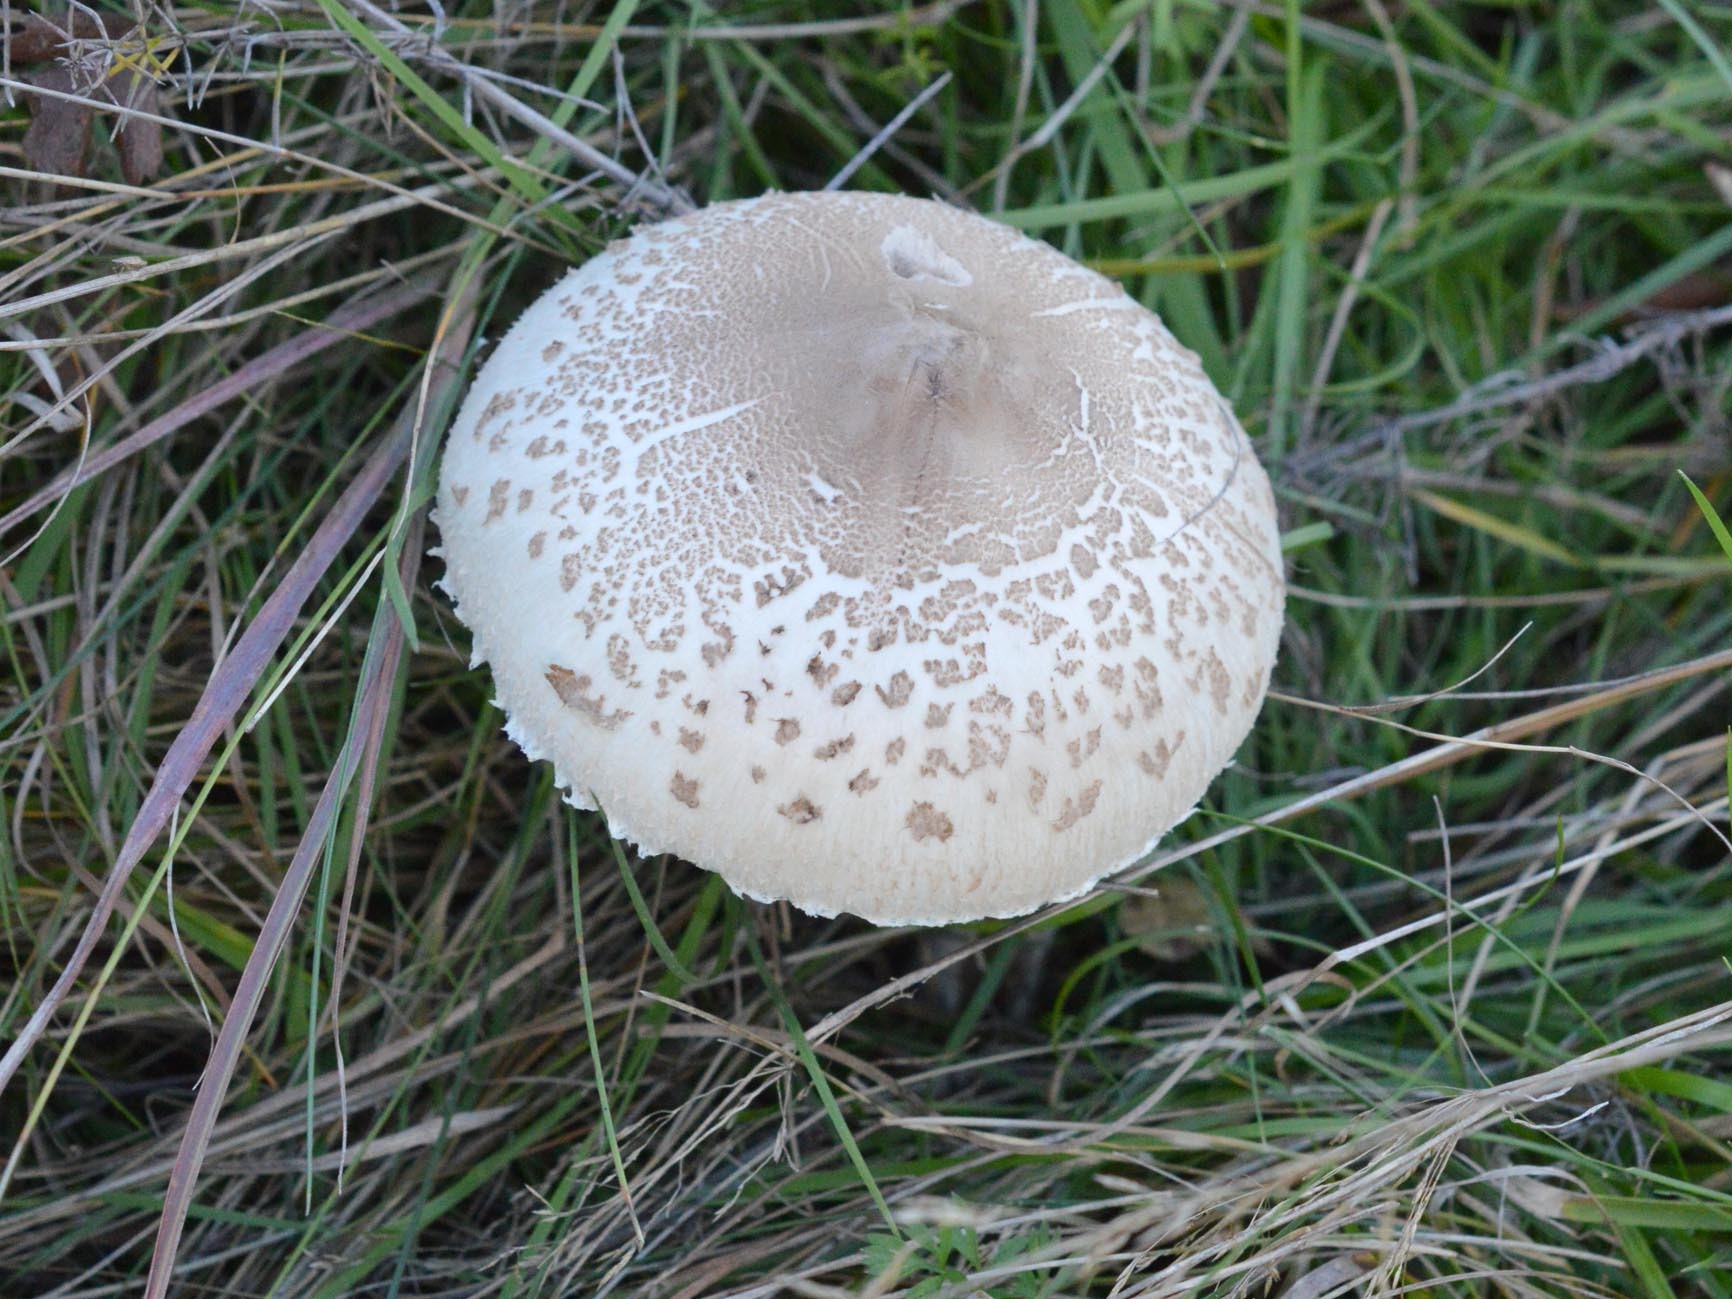
Bedľa štíhla očarí elegantnou siluetou. Jej svetlý, krémovobéžový klobúk zdobia drobné, hnedasté šupinky a výrazný, špicatý hrboľ v strede, pripomínajúci bradavku. Na spodnej strane sa ukrývajú husté, belavé a voľné lupene, ktoré sa nedotýkajú hlúbika. Samotný hlúbik je vysoký, štíhly, na báze mierne hľuznatý a opatrený posuvným prsteňom. Celok pôsobí na pozadí lesného podrastu neobyčajne ľahko a jemne.
Rozpoznávanie, biotop a najdôležitejšie rozdiely.
Hubár
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobúk, hlúbik.
Klobúk
- Tvar klobúka
- pri zrelých plodniciach: Tvar klobúka: vypuklý.
pri zrelých plodniciach: Tvar klobúka: vypuklý (sploštený profil).
pri zrelých plodniciach: Tvar klobúka: plochý.
pri mladých plodniciach: Tvar klobúka: vajcovitý.
pri mladých plodniciach: Tvar klobúka: zvonkovitý.
pri mladých plodniciach: Tvar klobúka: valcovitý a vajcovitý.
pri zrelých plodniciach: Tvar klobúka: kužeľovitý a zvonkovitý.
pri starých plodniciach: Tvar klobúka: plochý. - Pokryv klobúka
- Pokryv klobúka: šupinatá (sivohnedastý).
Pokryv klobúka: šupinatá.
pri zrelých plodniciach: Pokryv klobúka: šupinatá.
Pokryv klobúka: šupinatá (súvislé, hladký povrch pokryvu).
Pokryv klobúka: šupinatá (v podobe útržkov, nepravidelný obrys).
Pokryv klobúka: šupinatá (na okraji klobúka, jemné šupiny, riedky povlak, smerom k okraju).
Pokryv klobúka: šupinatá (otrubovité, sivohnedastý).
Pokryv klobúka: šupinatá (sivá, červenkastý nádych).
Pokryv klobúka: šupinatá (svetlohnedý povlak). - Usporiadanie prasklín povrchu
- pri zrelých plodniciach: Usporiadanie prasklín povrchu: popraskaná, vzor neuvedený.
- Farba klobúka
- Farba klobúka: biely.
Farba klobúka: červenohnedý (stred klobúka).
Farba klobúka: belavá.
Farba klobúka: svetlo okrový.
Farba klobúka: biely (sivastý nádych).
Farba klobúka: krémový (farba podkladu).
Farba klobúka: belavá (farba podkladu).
Farba klobúka: hnedý (svetlý odtieň, orieškovohnedý). - Profil okraja klobúka
- Profil okraja klobúka: ostrý.
- Zvyšky plachtičky na okraji
- Zvyšky plachtičky na okraji: s visiacimi zvyškami vela (mierne).
pri mladých plodniciach: Zvyšky plachtičky na okraji: s visiacimi zvyškami vela (vláknité). - Priemer klobúka
- Priemer klobúka je 50–150 mm.
- Stred klobúka
- Stred klobúka: s výrazným hrboľom.
Stred klobúka: s výrazným hrboľom.
Stred klobúka: s výrazným hrboľom.
Stred klobúka: s výrazným hrboľom (ostrý hrbolček).
Spodná strana klobúka
- Typ hymenoforu
- Typ hymenoforu: lupene.
Lupene pri hlúbiku
- Pripojenie hymenoforu k hlúbiku
- Pripojenie hymenoforu k hlúbiku: voľný od hlúbika (lupene).
Pripojenie hymenoforu k hlúbiku: voľný od hlúbika (lupene).
Pripojenie hymenoforu k hlúbiku: voľný od hlúbika (lupene).
Pripojenie hymenoforu k hlúbiku: voľný od hlúbika (lupene).
- Farba hymenoforu
- Farba hymenoforu: biely.
Farba hymenoforu: biely.
Farba hymenoforu: belavá.
Farba hymenoforu: krémový.
Farba hymenoforu: sivohnedý.
Farba hymenoforu: biely (sivastý nádych). - Prirodzená farba ostria lupene
- Prirodzená farba ostria lupene: hnedkastý (niekedy).
- Rozostup lupeňov
- Rozostup lupeňov: husto usporiadané.
Rozostup lupeňov: husto usporiadané. - Šírková trieda lupeňov
- Šírková trieda lupeňov: vysoké.
- Prítomnosť krátkych lupeňov
- Prítomnosť krátkych lupeňov: prítomný.
Prítomnosť krátkych lupeňov: prítomný. - Počet dĺžkových radov lupienkov
- Počet dĺžkových radov lupienkov: 2–3.
Hlúbik a báza
- Tvar hlúbika
- Tvar hlúbika: valcovitý.
Tvar hlúbika: zužujúci sa nahor.
Tvar hlúbika: valcovitý (takmer). - Báza hlúbika
- Báza hlúbika: hľuzovitý (mierne).
Báza hlúbika: zhrubnutá (mierne).
Báza hlúbika: hľuzovitý.
Báza hlúbika: hľuzovitý (výrazná, často). - Farba hlúbika
- Farba hlúbika: belavá.
Farba hlúbika: krémový.
Farba hlúbika: svetlo okrový.
pod prsteňom: Farba hlúbika: krémový (farba podkladu). - Pokryv povrchu hlúbika
- Pokryv povrchu hlúbika: šupinatá (hnedastý povlak).
Pokryv povrchu hlúbika: šupinatá.
pod prsteňom: Pokryv povrchu hlúbika: šupinatá (okrový povlak).
nad prsteňom: Pokryv povrchu hlúbika: vločkatá (jemné šupiny).
nad prsteňom: Pokryv povrchu hlúbika: šupinatá (jemné šupiny, otrubovité, hnedastý povlak, najmä).
Pokryv povrchu hlúbika: šupinatá (jemné šupiny, otrubovité, krémový).
Pokryv povrchu hlúbika: šupinatá (jemné šupiny, otrubovité, bledo hnedý).
pod prsteňom: Pokryv povrchu hlúbika: šupinatá (jemné šupiny, okrový povlak, tmavšie než podklad, usporiadané do prstencov, nevýrazné usporiadanie).
Pokryv povrchu hlúbika: vločkatá (biely povlak).
Pokryv povrchu hlúbika: šupinatá (jemné šupiny, mäsovo sfarbená). - Vnútro hlúbika
- pri zrelých plodniciach: Vnútro hlúbika: dutý.
pri mladých plodniciach: Vnútro hlúbika: plný. - Konzistencia hlúbika
- Konzistencia hlúbika: vláknitý a odolný proti roztrhnutiu a vláknitý.
- Dĺžka hlúbika
- Dĺžka hlúbika: do 250 mm.
- Priemer hlúbika
- Priemer hlúbika: 5–20 mm.
Prsteň
- Prítomnosť prsteňa
- Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný (jednoduchej stavby).
Prítomnosť prsteňa: prítomný (jednoduchej stavby).
Prítomnosť prsteňa: prítomný (počet prsteňov: 1). - Tvar prsteňa
- Tvar prsteňa: vystupujúci.
Tvar prsteňa: vystupujúci. - Stavba materiálu prsteňa
- Stavba materiálu prsteňa: blanitý.
Stavba materiálu prsteňa: blanitý.
Stavba materiálu prsteňa: blanitý. - Poloha prsteňa
- Poloha prsteňa: v hornej časti hlúbika.
- Farba prsteňa
- Farba prsteňa: belavá.
Farba prsteňa: belavá.
Farba prsteňa: belavá (spodná strana prsteňa).
Farba prsteňa: hnedkastý (horný povrch prsteňa, bodkovaný). - Obrúbenie prsteňa
- Obrúbenie prsteňa: s dvojitým okrajom (niekedy).
- Pohyblivosť prsteňa
- Pohyblivosť prsteňa: posuvný.
Pohyblivosť prsteňa: posuvný (mierne).
Hľuza
- Šírka hľuzy pri báze hlúbika
- Šírka hľuzy pri báze hlúbika: do 22 mm.
Dužina
- Farba dužiny
- Farba dužiny: belavá.
Farba dužiny: biely. - Pevnosť dužiny
- Pevnosť dužiny: mäkký (dužina klobúka).
- Chuť dužiny
- Chuť dužiny: slabý.
Chuť dužiny: príjemný, slabý. - Štruktúra dužiny
- Štruktúra dužiny: vatovitý (dužina klobúka).
- Farba dužiny po poranení
- Farba dužiny po poranení: bez zmeny farby.
Farba dužiny po poranení: bez zmeny farby. - Vôňa dužiny
- Vôňa dužiny: nevýrazný.
Kde a kedy rastie
- Spôsob rastu plodníc
- Spôsob rastu plodníc: jednotlivo alebo v skupinách.
- Frekvencia výskytu
- Frekvencia výskytu: vzácny.
- Obdobie rastu
- Plodnice sa objavujú od septembra do októbra.
- Oblasť výskytu
- Oblasť výskytu: potvrdený.
Jedlosť a kuchyňa
- Jedlosť
- Jedlý
Právo
- Ochrana
- V Poľsku nepodlieha druhovej ochrane.
- Predaj
- V Poľsku nie je povolený na predaj ani na výrobu hubových výrobkov.
Možnosť zámeny
Macrolepiota procera
Hlavné rozdiely
Bedľa vysoká (Macrolepiota procera) dosahuje zvyčajne väčšie rozmery a má tmavšie sfarbenie, s veľkými, výraznými, doštičkovitými šupinami na klobúku a výraznejším, kľukatým, hnedým vzorom na hlúbiku. Bedľa štíhla má podstatne drobnejšie šupinky a jemnejší vzor hlúbika. Pod mikroskopom sa bedľa vysoká líši väčšími výtrusmi a inou štruktúrou hýf tvoriacich šupiny klobúka (usporiadanie trichodermy, kým u bedle štíhlej sa vyskytuje palisáda).
Macrolepiota excoriata
Hlavné rozdiely
Bedľa lúpavá (Macrolepiota excoriata) sa vyznačuje hladkým hlúbikom, zatiaľ čo u bedle štíhlej je povrch hlúbika pokrytý drobnými šupinkami. Pri mikroskopickom skúmaní sa u Macrolepiota excoriata navyše zisťuje častejšia prítomnosť praciek na priehradkách bazídií.
Macrolepiota konradii
Hlavné rozdiely
Bedľa štíhla (Macrolepiota mastoidea) vytvára drobnejšie a hustejšie rozmiestnené šupinky na klobúku a častejšie rastie na otvorených, trávnatých stanovištiach. V medzinárodnom registri Species Fungorum sa názov M. konradii považuje za synonymum M. mastoidea, zatiaľ čo v mnohých regionálnych atlasoch sú oba taxóny opisované oddelene.
Bedľa Konrádova (Macrolepiota konradii) sa vyznačuje väčšími, redšie rozmiestnenými šupinami na klobúku, ktoré pukajú do charakteristického hviezdicovitého vzoru, odlišného od jemného šupinkovania bedle štíhlej. Hoci ju niektorí autori zaraďujú do širokého komplexu Macrolepiota mastoidea, v terénnom poňatí predstavuje samostatný taxón.
FAQ
Je bedľa štíhla jedlá huba?
Áno, je to chutná jedlá huba. V kuchyni sa využívajú najmä jemné klobúky po primeranej tepelnej úprave.
Čím sa líši od bedle vysokej?
Je zvyčajne štíhlejšia a menšia a jej klobúk sa vyznačuje ostrým, výrazným hrboľom a drobnými šupinkami.
Kde ju možno najčastejšie nájsť?
Vyskytuje sa na zemi na okrajoch listnatých a zmiešaných lesov, na čistinách, lúkach a v oslnenom kroví.
Kedy v Poľsku pripadá sezóna na tento druh?
Hlavné obdobie rodenia v poľských lesoch pripadá na skorú jeseň – predovšetkým na september a október.
Žije bedľa štíhla v mykoríze so stromami?
Nie, je saprotrof, ktorý čerpá živiny z rozkladajúceho sa pôdneho opadu, a nie mykorízny partner stromov.
Ako ju najlepšie pripraviť na konzumáciu?
Klobúky chutia výborne opekané na masle, vysmážané v trojobale alebo dusené; tvrdé hlúbiky sa oplatí usušiť a pomlieť.
S akými nebezpečnými hubami si ju možno pomýliť?
Môže sa pomýliť so smrteľne jedovatými svetlými muchotrávkami alebo jedovatými, malými druhmi bedličiek.
Podľa čoho rozpoznať jej klobúk?
Podľa svetlého podkladu s drobnými hnedastými šupinkami a výrazného, špicatého hrboľa umiestneného v strede.
Je prsteň na hlúbiku posuvný?
Áno, zrelé plodnice majú výrazný prsteň, ktorý možno voľne posúvať pozdĺž hladkého, štíhleho hlúbika.
Smie sa tento druh konzumovať za surova?
Nie, bedľa štíhla si pred konzumáciou bezpodmienečne vyžaduje dôkladnú tepelnú úpravu.
Nadšenec
Názvy a história
- Obowiązująca nazwa taksonomiczna
- Macrolepiota mastoidea
- Pozostałe nazwy
- Czubajka sutkowata
Pozorovania doma
Výtrusný prach
- Potrebný materiál
- čerstvý, zrelý klobúk, list papiera, pohár alebo miska, voda
- Čas
- 2–24 h
- Postup
- Položte klobúk spodnou stranou na papier.
- Pridajte kvapku vody na vrch a prikryte.
- Po 2–24 hodinách klobúk zdvihnite a prezrite si odtlačok.
Čo hľadať
- Farba výtrusného prachu
- Farba výtrusného prachu: biely.
Pod mikroskopom
- Potrebný materiál
- svetelný mikroskop, podložné a krycie sklíčko, ihla, voda, výtrusy z výtrusného prachu
- Postup
- Ihlicou preneste malé množstvo výtrusného prachu na sklíčko.
- Pridajte kvapku vody, prikryte krycím sklíčkom a pozorujte výtrusy.
Čo hľadať
- Tvar výtrusu
- Tvar výtrusu: elipsoidný. Tvar výtrusu: vajcovitý. Tvar výtrusu: elipsoidný. Tvar výtrusu: elipsoidný. Tvar výtrusu: vajcovitý. Tvar výtrusu: elipsoidný. Tvar výtrusu: kvapkovitý. Tvar výtrusu: elipsoidný. Tvar výtrusu: vajcovitý.
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký. Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozmery výtrusu
- Dĺžka 11–18 µm, šírka 7–10,4 µm.
- Rozmery výtrusu
- Dĺžka 12,95 µm, šírka 8,69 µm.
Rozmery porovnávajte až po kalibrácii mierky mikroskopu.
Ekológia a rozšírenie
- Vápnitosť pôdy
- Vápnitosť pôdy: vápenatý (niekedy).
- Ihličnaté stromy v okolí
- Ihličnaté stromy v okolí: Picea abies.
Ihličnaté stromy v okolí: Pinus sylvestris.
Ihličnaté stromy v okolí: Abies alba. - Spôsob výživy
- Spôsob výživy: saprotrofný.
Nekulinárske využitie
V kuchyni sa využívajú predovšetkým jemné klobúky, ktoré chutia vynikajúco vyprážané na masle, obalené v trojobale alebo pridané do aromatických omáčok. Tvrdé hlúbiky sa zvyčajne sušia a melú na hubové korenie. V tradičnom hospodárstve bola táto huba cenená pre príjemnú vôňu a chuťové vlastnosti, ktoré obohacovali jesenný jedálny lístok hubárov.
História a kultúra
Druhový prívlastok „mastoidea“ pochádza z gréčtiny a odkazuje na bradavkovité vyvýšenie na klobúku. V poľskom názvosloví sa zvykla označovať ako czubajka sutkowa alebo drobnejšia príbuzná bedle vysokej. Hoci bývala v minulosti zamieňaná s príbuznými taxónmi, v mykologických atlasoch si získala trvalé miesto ako pôvabný a hubármi cenený prvok domácej prírody.
Jedlosť a bezpečnosť
Považuje sa za chutnú jedlú hubu, vyžaduje si však bezvýhradnú opatrnosť. Nikdy sa nespoliehaj na jediný znak – vždy hodnoť súčasne prsteň, hlúbik, voľné lupene a hrboľ. Začiatočníci si ju môžu pomýliť so smrteľne jedovatými muchotrávkami alebo jedovatými drobnými bedličkami. Zbieraj výhradne plne vyvinuté, bezpečne rozpoznané exempláre.
Biotop a výskyt
Rastie na zemi ako saprotrof a rozkladá lesnú opadanku, preto prítomnosť stromov v blízkosti neznamená mykorízu. Stretneš sa s ňou na okrajoch listnatých a zmiešaných lesov, na čistinách, v kroví a na oslnených trávnatých pahorkoch. V Poľsku sa plodnice objavujú zvyčajne v septembri a októbri, hoci v teplejších oblastiach Európy býva sezóna dlhšia.
Zdroje
- Karel Tejkal, Česká mykologická společnost: Macrolepiota mastoidea
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota (Agaricaceae, Basidiomycota) in China. Fungal Diversity45:81–98. DOI 10.1007/s13225-010-0062-0.
- Wojewoda W. 2003. Checklist of Polish larger Basidiomycetes. Biodiversity of Poland 7; focal entry printed423/PDF425.
Bádateľ
Dužina
- Vôňa dužiny
- Vôňa dužiny: vôňa šupín pokožky klobúka môže pripomínať vôňu Macrolepiota procera. [6]
Jedlosť a kuchyňa
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlosť
- Jedlý
Źródło oznaczenia.
Tejkal K. Česká mykologická společnost: Macrolepiota mastoidea. · Kuchyňské využití: Je jedlá a chutná podobně jako bedla vysoká; source author assessment. No preparation requirement inferred.
Snowarski M., Gierczyk B. Atlas grzybów Polski / GRej: Macrolepiota mastoidea; public page generated2026-09-01; taxon comment2025-12-30. · jadalne czy trujące?: Jadalna / Edible; source author assessment. No raw-edibility or preparation requirement inferred.
Vedecké názvy a taxonómia
- Platný vedecký názov
Macrolepiota mastoidea
Czubajka sutkowata, Macrolepiota mastoidea (Fr.) Singer, należy do rodziny pieczarkowatych (Agaricaceae). Nazwa ta obejmuje grupę bardzo zbliżonych morfologicznie form, których granice bywają różnie ujmowane w atlasach i opracowaniach taksonomicznych. W chińskiej rewizji z 2010 roku wykazano niewielkie różnice w sekwencjach regionu ITS pomiędzy próbkami zaliczanymi do tego kompleksu. W szerszych ujęciach systematycznych pojawiają się europejskie nazwy Macrolepiota affinis, Macrolepiota gracilenta oraz Macrolepiota rickenii, jednak ranga i odrębność tych drobnych taksonów pozostają przedmiotem dyskusji.
[40] [43] [39]- Zakres ujęcia taksonomicznego
Macrolepiota mastoidea (Fr.) Singer jako zaakceptowany gatunek GBIF2536707, z zachowaniem preferowanego celu rekordu44: Czubajka sutkowata. Materiały i dawne synonimiczne lub szersze ujęcia zachowują własny zakres źródłowy. PTMyk2025 rekomenduje czubajka wątła dla nazwy z kolumny3 Macrolepiota affinis(Velen.)Bon; kolumna2 przywołuje M.mastoidea(Wojewoda2003),a kolumna4 wcześniejszą czubajka sutkowata. Komisja nie rozstrzyga taksonomii. To pozostaje jawną różnicą ujęcia,nierozstrzygniętą tutaj jako pełna tożsamość M.affinis i wszystkich materiałów M.mastoidea. Nie scala się osobnego rekordu45 M.konradii.
[34] [35]
Poznámky k poňatiu taxónu
Ge, Yang i Vellinga (2010): Autorzy omawiają zmienność kompleksu M. mastoidea i małe różnice ITS. Nie utożsamia się historycznych nazw z nowym oznaczeniem każdego okazu. Materiał HMAS28232 rozpoznano ponownie jako Lepiota clypeolaria; nie potwierdza on tego gatunku.
Cho i współautorzy (2019): Opis M. mastoidea jest odrębny od poprzedzającego go opisu M. detersa. Nazwa M. umbonata w tej pracy oznacza inny opisany gatunek; samo określenie garbka nie uzasadnia synonimizacji. Różnic sekwencji europejskich i azjatyckich nie rozstrzyga się tu jako nowej globalnej synonimii.
Česká mykologická společnost: Atlas rozróżnia M. konradii dla własnego ujęcia. Przywołane szersze traktowanie z innej publikacji jest wtórnym odsyłaczem, nie samodzielnym rozstrzygnięciem pozwalającym połączyć dwa rekordy.
Snowarski i rejestr GRej: Strona obejmuje kompleks M. mastoidea z odrębnymi adnotacjami rickenii i prominens, a M. konradii wyłącza. Jawne s.str. i formalny status zgłoszenia to różne informacje; komentarz o s.str. nie zastępuje oznaczenia wpisu jako zweryfikowanego przez kustosza.
de Kok i Vellinga (1998): Źródło ujmuje M. gracilenta i M. rickenii w synonimii M. mastoidea. Historyczne M. mastoidea sensu Konrad i Maublanc wyłącza jako M. konradii. Zachowano ujęcie danej publikacji, bez automatycznego przenoszenia każdej nazwy lub starego oznaczenia do jednego współczesnego taksonu.
Heberle i współautorzy (2022): Oznaczenie dotyczy materiału przedstawionego jako M. mastoidea w pracy z Brazylii. Nie uznano go za nową rewizję wszystkich europejskich ujęć gatunku.
Lebeuf i współautorzy (2024): Publikacja opisuje M. macilenta i M. pallida z Ameryki Północnej. Ich wymiarów i opisów nie przeniesiono do europejskiego M. mastoidea; nazwa tego ostatniego pełni także rolę taksonu porównawczego.
Polskie Towarzystwo Mykologiczne (2025): W rekomendacji nazw kolumna 2 podaje M. mastoidea w ujęciu Wojewody, kolumna 3 M. affinis, nazwa zalecana brzmi czubajka wątła, a wcześniejsza czubajka sutkowata. Komisja nie rozstrzyga przez tę tabelę taksonomii; zachowano niepewny zakres i dotychczasową tożsamość rekordu.
Species Fungorum, rekord 134693: Rekord nazwy 134693 wiąże M. rickenii z aktualną nazwą M. mastoidea (Fr.) Singer. Źródłowe daty i zapis bibliograficzny zachowano; nie utożsamiono tego pojedynczego rekordu nomenklatorycznego z pełnym przeglądem wszystkich synonimów.
Wojewoda (2003): Wpis obejmuje źródłowe szersze ujęcie M. mastoidea z rickenii i umbonata oraz odsyłaczem do gracilenta. M. konradii ma obok odrębny wpis.
Ślusarczyk (2025): Wpis z Nadleśnictwa Świebodzin, oddziału 185 d, podano pod nazwą Macrolepiota mastoidea. Nie przedstawiono go jako jawnego oznaczenia s.str. ani potwierdzenia molekularnego.
Ślusarczyk (2022): Wpis z Doliny Starej Słupi z IX 2021 podano pod nazwą Macrolepiota mastoidea. Nie przedstawiono go jako jawnego oznaczenia s.str. ani potwierdzenia molekularnego.
Atlas Lasów Państwowych — inny takson: Sprawdzany materiał Lasów Państwowych ma nagłówek M. konradii. Jego opisów, zakresu VII–X ani informacji o częstości nie włączono jako dowodu dla rekordu M. mastoidea.
[8] [5] [6] [13] [7] [25] [26] [36] [37] [15] [12] [11] [9]Ekológia a rozšírenie
- Stanovište
- Stanovište: ihličnatý les, listnatý les, kroviny, okraj lesa alebo okraj cesty (označenie druhu v zdroji: Macrolepiota mastoidea sensu Wojewoda2003 (rickenii/umbonata included; gracilenta crossref; konradii separate)). [15]
Stanovište: listnatý les, park alebo kroviny (označenie druhu v zdroji: Macrolepiota mastoidea sensu Snowarski/Gierczyk atlas complex, excluding separate konradii). [13]
Stanovište: zmiešaný les (označenie druhu v zdroji: Macrolepiota mastoidea sensu Ślusarczyk2025; source morphology, no explicit s.str.). [12]
Stanovište: listnatý les (označenie druhu v zdroji: Macrolepiota mastoidea sensu Ślusarczyk2022; source morphology, no explicit s.str.). [11] - Substrát
- Substrát: pôda (označenie druhu v zdroji: Macrolepiota mastoidea sensu Wojewoda2003). [15]
Substrát: pôda (označenie druhu v zdroji: Macrolepiota mastoidea sensu Ślusarczyk2022). [11]
Substrát: pôda (označenie druhu v zdroji: Macrolepiota mastoidea sensu Ślusarczyk2025). [12]
Substrát: opad (označenie druhu v zdroji: Macrolepiota mastoidea sensu Myko.cz; konradii separate). [6] - Frekvencia výskytu
- Poľsko: Frekvencia výskytu: vzácny. [13]
Laboratórna diagnostika
Dane ustrukturyzowane
Bazídiá
- Optický vzhľad bazídie
- Optický vzhľad bazídie: hyalínny. [8]
Optický vzhľad bazídie: hyalínny. [5]
Optický vzhľad bazídie: hyalínny. [25] - Počet výtrusov na bazídii
- Počet výtrusov na bazídii je 4. [5]
Počet výtrusov na bazídii je 4. [8]
Počet výtrusov na bazídii je 4. [25] - Prítomnosť obsahu bazídia
- Prítomnosť obsahu bazídia: prítomný (zriedka, drobné zrnká a bublinkovité útvary). [5]
- Dĺžka bazídie
- Dĺžka bazídie: 33–39,7 µm. [5]
Dĺžka bazídie: 32–44 µm. [25]
Dĺžka bazídie: 32–44 µm. [8] - Tvar bazídia
- Tvar bazídia: kyjakovitý. [8]
Tvar bazídia: kyjakovitý. [5]
Tvar bazídia: kyjakovitý. [25]
Kôrová vrstva klobúka
Bunky šupín klobúka
- Tvar vrcholu mikroskopickej bunky
- Tvar vrcholu mikroskopickej bunky: zužujúci sa k vrcholu (mierne). [8]
Tvar vrcholu mikroskopickej bunky: zužujúci sa k vrcholu (mierne). [5] - Vetvenie
- Vetvenie: rozvetvený (zriedka). [8]
- Dĺžka
- Dĺžka: 36,9–71,9 µm. [5]
- Farba pigmentu
- Farba pigmentu: žltý (Žltkastá, vo vakuolách). [8]
Farba pigmentu: hnedý (hnedkastý, vo vakuolách). [8]
Farba pigmentu: žltý (Žltkastá, vo vakuolách). [5]
Farba pigmentu: hnedý (hnedkastý, vo vakuolách). [5] - Tvar
- Tvar: valcovitý (takmer). [8]
Hymeniálne cystidy
- Usporiadanie cheilocystíd
- Usporiadanie cheilocystíd: vo zväzkoch. [8]
Usporiadanie cheilocystíd: vo zväzkoch. [5] - Dĺžka hymeniálnej cystidy
- Dĺžka hymeniálnej cystidy: 15–20 µm. [25]
Dĺžka hymeniálnej cystidy: 10–20 µm. [8]
Dĺžka hymeniálnej cystidy: 15,6–25 µm. [5] - Optický vzhľad hymeniálnej cystidy
- Optický vzhľad hymeniálnej cystidy: hyalínny. [8]
Optický vzhľad hymeniálnej cystidy: hyalínny. [5]
Optický vzhľad hymeniálnej cystidy: hyalínny. [25] - Tvar hymeniálnej cystidy
- Tvar hymeniálnej cystidy: kyjakovitý. [8]
Tvar hymeniálnej cystidy: kyjakovitý. [5]
Tvar hymeniálnej cystidy: kyjakovitý. [25] - Hrúbka steny uvedenej hymeniálnej cystidy
- Hrúbka steny uvedenej hymeniálnej cystidy: tenkostenný. [8]
Hrúbka steny uvedenej hymeniálnej cystidy: tenkostenný. [5]
Hrúbka steny uvedenej hymeniálnej cystidy: tenkostenný. [25]
Ostatné laboratórne znaky
Výtrusy
- Priemerný pomer dĺžky a šírky výtrusu
- Priemerný pomer dĺžky a šírky výtrusu: 1,49 (smerodajná odchýlka: 0,09, priemer). [8] [24]
- Dĺžka hilárneho výbežku bazídiospóry
- Dĺžka hilárneho výbežku bazídiospóry: 1,2–1,4 µm. [5]
Dĺžka hilárneho výbežku bazídiospóry: 1–1,5 µm. [8] - Tvar vrcholu výtrusu
- Tvar vrcholu výtrusu: zaoblený. [8]
- Farba výtrusov pod mikroskopom
- Farba výtrusov pod mikroskopom: hyalínny. [8]
Farba výtrusov pod mikroskopom: hyalínny. [5]
Farba výtrusov pod mikroskopom: hyalínny. [25] - Prítomnosť klíčneho póru
- Prítomnosť klíčneho póru: prítomný. [8]
Prítomnosť klíčneho póru: prítomný. [5]
Prítomnosť klíčneho póru: prítomný. [25]
Prítomnosť klíčneho póru: prítomný (prekrytý hyalínnym viečkom, prerušenie episporia). [8] - Dĺžka výtrusu
- Dĺžka výtrusu: 12–18 µm. [6]
Dĺžka výtrusu: 11,2–14,4 µm. [5]
Dĺžka výtrusu: 12,95 µm (bližšie neurčená miera variability zapísaná ako ±, uvedená hodnota za znamienkom ±: 0,84, priemer). [8]
Dĺžka výtrusu: 12–14 µm. [25]
Dĺžka výtrusu: 11–15 µm. [8] - Pomer dĺžky a šírky výtrusu
- Pomer dĺžky a šírky výtrusu: 1,33–1,65. [8]
Pomer dĺžky a šírky výtrusu: 1,31–1,67. [5] - Dextrinoidná reakcia výtrusov
- Dextrinoidná reakcia výtrusov: dextrinoidná. [8]
Dextrinoidná reakcia výtrusov: dextrinoidná. [5]
Dextrinoidná reakcia výtrusov: dextrinoidná. [6] - Tvar výtrusu
- Tvar výtrusu: elipsoidný. [8]
Tvar výtrusu: vajcovitý. [8]
Tvar výtrusu: elipsoidný. [8]
Tvar výtrusu: elipsoidný. [5]
Tvar výtrusu: vajcovitý. [5]
Tvar výtrusu: elipsoidný. [6]
Tvar výtrusu: kvapkovitý. [6]
Tvar výtrusu: elipsoidný. [25]
Tvar výtrusu: vajcovitý. [25] - Povrch výtrusu
- Povrch výtrusu: hladký. [8]
Povrch výtrusu: hladký. [5]
Povrch výtrusu: hladký. [6]
Povrch výtrusu: hladký. [25]
Materiál a metódy výskumu
Mikroskopické údaje — zdroj a obmedzenia
Materiał: M. mastoidea China; 41 basidiospores from 2 basidiocarps of 2 collections. Source meanQ, not ratio of meanaxes.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
[8]- Výsledky zaznamenané v zdrojoch — Dĺžka hilárneho výbežku bazídiospóry
- Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 1–1,5 µm [8]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 1,2–1,4 µm [5] - Výsledky zaznamenané v zdrojoch — Počet výtrusov na bazídii
- Liczba zarodników na jednej podstawce wynosi 4. [8] [25] [5]
- Výsledky zaznamenané v zdrojoch — Dĺžka bazídie
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 33–39,7 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 32–44 µm [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 32–44 µm [25] - Výsledky zaznamenané v zdrojoch — Šírka bazídie
- Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 12–14 µm [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 12–14 µm [25]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 11,6–13,8 µm [5] - Výsledky zaznamenané v zdrojoch — Dĺžka hymeniálnej cystidy
- Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. na ostrzu blaszki: 15–20 µm [25]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. na ostrzu blaszki: 15,6–25 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. na ostrzu blaszki: 15–20 µm (skrajnie od 10 µm) [8] - Výsledky zaznamenané v zdrojoch — Šírka hymeniálnej cystidy
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. na ostrzu blaszki: 6,1–11,3 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. na ostrzu blaszki: 7–10 µm [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. na ostrzu blaszki: 7–10 µm [25] - Výsledky zaznamenané v zdrojoch — Šírka
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. Komórki łuski kapelusza: Szerokość badanej komórki może wynosić od 8,2 do 10,9 mikrometra. [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. Komórki łuski kapelusza: Szerokość badanej komórki może wynosić od 6 do 12 mikrometrów. [8] - Výsledky zaznamenané v zdrojoch — Dĺžka výtrusu
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 11,2–14,4 µm [5]
Materiał badania: Author atlas description; bibliography is not independent direct remeasurement. The atlas has an unresolved internal clamp statement conflict. 12–18 µm [6]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. Średnia długość zarodnika w badanym materiale wynosi 12,95 mikrometra (w źródle ±0,84 mikrometra; rodzaj niepewności nie został podany). [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 12–14 µm [25]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 12–14 µm (skrajnie 11–15 µm) [8] - Výsledky zaznamenané v zdrojoch — Pomer dĺžky a šírky výtrusu
- Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 1,38–1,63 (skrajnie 1,33–1,65) [8]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 1,31–1,67 [5] - Výsledky zaznamenané v zdrojoch — Šírka výtrusu
- Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 9–10 µm [25]
Materiał badania: Author atlas description; bibliography is not independent direct remeasurement. The atlas has an unresolved internal clamp statement conflict. 7–10 µm [6]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 8–9,5 µm (skrajnie do 10 µm) [8]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 8–10,4 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. Średnia szerokość zarodnika w badanym materiale wynosi 8,69 mikrometra (w źródle ±0,6 mikrometra; rodzaj niepewności nie został podany). [8]
Metody i zapisy źródłowe — Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors.
Pochodzenie materiału: China: Heilongjiang,Jilin,Sichuan.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Methods printed82: spores5–10%KOH; at least20/collection; [n/m/p]=spores/fruitbodies/collections; inner range contains>=90%; parentheses extrema; Q=L/W in side view; avQ mean±sample SD. Other structures5–10%KOH and Congo red; Melzer for amyloidy.
Wygląd optyczny podstawki — zapis źródłowy: „basidia hyaline” [8]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „apiculus1–1.5µm” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored/tetrasporic” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „(32, 44)×(12, 14)µm” [8]
Kształt podstawki — zapis źródłowy: „clavate” [8]
Organizacja cheilocystyd; Płodność ostrza blaszek — zapis źródłowy: „in bunches forming a sterile edge” [8]
Długość cystydy hymenialnej — zapis źródłowy: „(10)15–20×7–10µm” [8]
Wygląd optyczny cystydy hymenialnej — zapis źródłowy: „cheilocystidia hyaline” [8]
Kształt cystydy hymenialnej — zapis źródłowy: „cheilocystidia clavate” [8]
Grubość ściany dokładnie określonej cystydy hymenialnej — zapis źródłowy: „cheilocystidia thin-walled” [8]
Szerokość cystydy hymenialnej — zapis źródłowy: „(15, 20)×(7, 10)µm” [8]
Kształt szczytu — zapis źródłowy: „terminal cells slightly tapering to apex” [8]
Układ — zapis źródłowy: „Squamules on pileus: a palisade of hyphae” [8]
Rozgałęzienie — zapis źródłowy: „hyphae of squamules rarely branched” [8]
Barwa pigmentu — zapis źródłowy: „yellowish to brownish vacuolar pigment” [8]
Kształt — zapis źródłowy: „Squamules on pileus: a palisade of subcylindric, clampless hyphae” [8]
Grubość ściany — ocena jakościowa — zapis źródłowy: „basidia thin-walled” [8]
Grubość ściany — ocena jakościowa — zapis źródłowy: „slightly thick-walled hyphae forming squamules” [8]
Szerokość — zapis źródłowy: „hyphae forming pileal squamules; diameter(6, 12)µm” [8]
Obecność pleurocystyd — zapis źródłowy: „Pleurocystidia absent; source material scope only” [8]
Kształt szczytu zarodnika — zapis źródłowy: „germ pore caused by an interruption in the episporium on the rounded apex” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyaline” [8]
Kongofilia zarodników — zapis źródłowy: „congophilous” [8]
Obecność pory rostkowej — zapis źródłowy: „with germ pore” [8]
Obecność pory rostkowej — zapis źródłowy: „germ pore caused by an interruption in the episporium on the rounded apex; covered by a hyaline cap” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „[41/2/2] (11.0)12.0–14.0(15.0)×8.0–9.5(10.0)µm” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „x̄=12.95±0.84×8.69±0.60µm” [8]
Metachromazja zarodników — zapis źródłowy: „metachromatic in cresyl blue” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q=(1.33)1.38–1.63(1.65)” [8]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „dextrinoid; Melzer named in methods” [8]
Kształt zarodnika — zapis źródłowy: „ellipsoid to ovoid in side view; ellipsoid in front view” [8]
Kształt zarodnika — zapis źródłowy: „ellipsoid in front view” [8]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [8]
Grubość ściany zarodnika — zapis źródłowy: „thick-walled” [8]
Metody i zapisy źródłowe — Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected.
Pochodzenie materiału: South Korea: Gangwon-do and Jeollanam-do.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Section2.2 Nikon Eclipse80i400×/1000×; Melzer for amyloidity; other structures3%aqueousKOH,Congo red,cresyl blue. >=20spores,10basidia,10cheilocystidia/specimen. [a/b/c]=number observed/basidiocarps/collection sites; dimensions minimum–maximum.
Wygląd optyczny podstawki — zapis źródłowy: „basidia hyaline” [5]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „apiculus1.2–1.4µm” [5]
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored/tetrasporic” [5]
Obecność zawartości podstawki — zapis źródłowy: „[28/2/2] rarely containing small granules and bubble-like contents” [5]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „(33, 39.7)×(11.6, 13.8)µm” [5]
Kształt podstawki — zapis źródłowy: „clavate” [5]
Organizacja cheilocystyd; Płodność ostrza blaszek — zapis źródłowy: „in bunches forming a sterile edge” [5]
Długość cystydy hymenialnej; Szerokość cystydy hymenialnej — zapis źródłowy: „(15.6, 25)×(6.1, 11.3)µm” [5]
Wygląd optyczny cystydy hymenialnej — zapis źródłowy: „cheilocystidia hyaline” [5]
Kształt cystydy hymenialnej — zapis źródłowy: „cheilocystidia clavate” [5]
Grubość ściany dokładnie określonej cystydy hymenialnej — zapis źródłowy: „cheilocystidia thin-walled” [5]
Kształt szczytu — zapis źródłowy: „terminal cells slightly tapering to apex” [5]
Układ — zapis źródłowy: „Squamules on pileus: a palisade of hyphae” [5]
Długość — zapis źródłowy: „hyphae forming pileal squamules36.9–71.9µm long” [5]
Barwa pigmentu — zapis źródłowy: „yellowish to brownish vacuolar pigment” [5]
Grubość ściany — ocena jakościowa — zapis źródłowy: „basidia thin-walled” [5]
Grubość ściany — ocena jakościowa — zapis źródłowy: „slightly thick-walled hyphae forming squamules” [5]
Szerokość — zapis źródłowy: „hyphae forming pileal squamules; diameter(8.2, 10.9)µm” [5]
Obecność pleurocystyd — zapis źródłowy: „Pleurocystidia absent; source material scope only” [5]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyaline” [5]
Kongofilia zarodników — zapis źródłowy: „congophilous” [5]
Obecność pory rostkowej — zapis źródłowy: „with germ pore” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „[40/2/2]11.2–14.4×8.0–10.4µm” [5]
Metachromazja zarodników — zapis źródłowy: „metachromatic in cresyl blue” [5]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q=1.31–1.67” [5]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „dextrinoid; Melzer named in methods” [5]
Kształt zarodnika — zapis źródłowy: „ellipsoid to ovoid” [5]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [5]
Grubość ściany zarodnika — zapis źródłowy: „thick-walled” [5]
Metody i zapisy źródłowe — HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material.
Pochodzenie materiału: Brazil: Rio Grande do Sul,São Gabriel,Morro do Sabiá.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Methods PDF2–3: macro/micromorphological identification atLATAF; specimens individually in plastic pots; dried after analysis at average40°C; microscopic medium,N and magnification not supplied.
Wygląd optyczny podstawki — zapis źródłowy: „basidia hyaline” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored/tetrasporic” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „(32, 44)×(12, 14)µm” [25]
Kształt podstawki — zapis źródłowy: „clavate” [25]
Długość cystydy hymenialnej; Szerokość cystydy hymenialnej — zapis źródłowy: „(15, 20)×(7, 10)µm” [25]
Wygląd optyczny cystydy hymenialnej — zapis źródłowy: „cheilocystidia hyaline” [25]
Kształt cystydy hymenialnej — zapis źródłowy: „cheilocystidia clavate” [25]
Grubość ściany dokładnie określonej cystydy hymenialnej — zapis źródłowy: „cheilocystidia thin-walled” [25]
Układ — zapis źródłowy: „The cortical layer of the pileus is formed by a palisade of subcylindrical hyphae” [25]
Kształt — zapis źródłowy: „subcylindrical hyphae of the cortical layer of the pileus” [25]
Grubość ściany — ocena jakościowa — zapis źródłowy: „basidia thin-walled” [25]
Obecność pleurocystyd — zapis źródłowy: „Pleurocystidia absent; source material scope only” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyaline” [25]
Obecność pory rostkowej — zapis źródłowy: „with germ pore” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „12–14×9–10µm” [25]
Kształt zarodnika — zapis źródłowy: „ellipsoid to ovoid” [25]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [25]
Grubość ściany zarodnika — zapis źródłowy: „thick-walled” [25]
Metody i zapisy źródłowe — Author atlas description; bibliography is not independent direct remeasurement. The atlas has an unresolved internal clamp statement conflict.
Pochodzenie materiału: Czech atlas; measured material locality not specified.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: No microscope,measurement medium or sample count given; Melzer explicitly named for dextrinoid reaction.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „12–18×7–10µm” [6]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „dextrinoid; Melzer named in methods” [6]
Kształt zarodnika — zapis źródłowy: „eliptické nebo kapkovité” [6]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [6]
Materiál a rozsah štúdie
Ge, Yang i Vellinga (2010): Zachowano sześć chińskich kolekcji z ich własnymi numerami, datami i zbieraczami. Próba pomiaru zarodników [41/2/2] obejmuje węższy materiał; nie przypisuje się jej wszystkim sześciu okazom. Przedziały obejmujące co najmniej 90% pomiarów, skrajności i średnie mają odrębne znaczenie statystyczne. Porównanie z M. excoriata dotyczy m.in. trzonu i częstości sprzążek, z zachowaniem wtórnych cytowań autorów.
Cho i współautorzy (2019): Materiał porównawczy obejmuje SFC20150718-01/MK453227, SFC20160927-52/MK453228 i SFC20171012-09/MK453229. Próby zarodników [40/2/2], podstawek [28/2/2] i cheilocystyd [20/2/2] pozostają oddzielne; ostatnia liczba oznacza liczbę stanowisk. Nieliczne sprzążki przy podstawkach i brak zaobserwowanych sprzążek u podstaw cheilocystyd dotyczą różnych struktur.
Česká mykologická společnost: W haśle występuje wewnętrzna rozbieżność o sprzążkach: opis podaje ich obecność co najmniej przy podstawkach, a porównanie wskazuje ich brak. Nie utworzono z tego bezwarunkowych, wymiennych stanów cechy. Zachowano także uwagi o czasem podwójnym brzegu pierścienia i czasem brązowawym ostrzu blaszek wraz z ich kwalifikatorami.
Snowarski i rejestr GRej: Zachowano osiemnaście wpisów GRej: dwanaście z żółtym identyfikatorem i sześć formalnie przyjętych, oczekujących na weryfikację. Numerów okazów nie zastępują deklaracje wysłania materiału ani sama informacja, kto go badał. Wpis 359534 podaje s.str. i BGF0009874; 350908 ma komentarz s.str., lecz pozostaje formalnie oczekujący.
de Kok i Vellinga (1998): Praca podaje osiemnaście kolekcji z siedmiu krajów. Nie dopowiedziano krajów niewymienionych w odczytanym fragmencie ani brakujących identyfikatorów okazów. Później importowane sekwencje porównawcze nie są nowymi niezależnymi zbiorami.
Heberle i współautorzy (2022): Kolekcja HCB18100 zachowuje źródłowy zapis daty 12/05/2021 oraz miejsce São Gabriel, Morro do Sabiá, Rio Grande do Sul. Nie rozstrzygnięto kolejności dnia i miesiąca przez zgadywanie. Zakres danych o łuskach i ich strzępkach pozostaje przypisany opisanej strukturze, nie całej skórce kapelusza.
Lebeuf i współautorzy (2024): W tabeli wykorzystano wcześniej opublikowane sekwencje porównawcze: Vellinga 2294 (L), AY243604 z Holandii, oraz SFC20171012-09, MK453229 z Korei Południowej. Koreański numer jest tą samą kolekcją co w pracy Cho, nie drugim nowym okazem. Nie przypisano tym importom nowej liczebności próby pomiarowej.
Species Fungorum, rekord 134693: Źródło służy sprawdzeniu relacji nomenklatorycznej. Nie jest nową analizą mikroskopową ani dowodem biologicznej odrębności wszystkich historycznych ujęć.
Wojewoda (2003): Źródło wspomina materiał KRAM z 1972 r. z okolic Lubina i Rynarcic, bez indywidualnego numeru akcesji. Nie utworzono brakującego numeru. Historyczne oceny czerwonych list NL4 i SF VU oraz brak oceny PL nie są aktualnym statusem prawnym.
Ślusarczyk (2025): Źródło wskazuje prywatne fungarium, lecz nie podaje indywidualnego numeru okazu. Zachowano to ograniczenie bez dopisywania akcesji.
Ślusarczyk (2022): Źródło wskazuje prywatne fungarium TSH bez indywidualnego numeru akcesji i bez dnia zbioru. Nie uzupełniono tych braków domysłem.
[8] [5] [6] [13] [7] [25] [26] [37] [15] [12] [11]Overenie výskytu — rozsah a obmedzenia
Materiał: Historical Polish synthesis; M. rickenii and M. umbonata included; M. gracilenta cross-reference to M. mastoidea.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: No new identification or DNA verification; source occurrence does not mean whole-region occupancy or current presence. Dates of individual collections are not an ordinary season.
[15]Materiał: Przemyśl-Lipowica, woj.podkarpackie; GRej 359534, M. mastoidea s.str., curator-verified yellow ID; 20 Oct 2021.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Przemyśl-Lipowica, pow. przemyski, woj. podkarpackie; zbiór 20 paź 2021; voucher: BGF0009874.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: No new identification or DNA verification; source occurrence does not mean whole-region occupancy or current presence. Dates of individual collections are not an ordinary season.
[13]Materiał: Łagowsko-Sulęciński PK in woj.lubuskie; M. mastoidea, Nadl.Świebodzin 185 d; source observation monthIX.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Łagowsko-Sulęciński Park Krajobrazowy, województwo lubuskie; Nadleśnictwo Świebodzin, oddział 185 d; zbiór IX; study 2010–2022, exact observation year not supplied.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Existing geographic identity reused for explicitly named woj.lubuskie; GBIF is not this biological evidence. Morphological source identification; taxon not explicitly s.str.; exact year of the September collection is not given.
[12]Materiał: Park Krajobrazowy Dolina Słupi in woj.pomorskim; M. mastoidea in Dolina Starej Słupi; IX 2021, grąd, ground.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Dolina Starej Słupi, Park Krajobrazowy Dolina Słupi, województwo pomorskie; zbiór IX 2021; exact day not supplied.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Existing geographic identity reused for explicitly named woj.pomorskie; GBIF is not this biological evidence. Morphological source identification; taxon not explicitly s.str.; no individual accession number or collection day.
[11]Materiał: GRej 335549, Puszcza Bukowa, woj.zachodniopomorskie; M. mastoidea under page complex concept, curator-verified; BGF0005880.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Puszcza Bukowa (rez. Trawiasta Buczyna), 1,5 km SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; zbiór 14 paź 2018; voucher: BGF0005880.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Page covers a broad complex; no s.str. assignment for this collection. Do not conflate with nearby prominens morphotype records, or claim DNA confirmation.
[13]Materiał: GRej 335549 explicitly in Puszcza Bukowa, rezerwat Trawiasta Buczyna; 14 Oct 2018, soil, several fruit bodies.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Puszcza Bukowa (rez. Trawiasta Buczyna), 1,5 km SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; zbiór 14 paź 2018; voucher: BGF0005880.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Source mastoidea complex concept; no molecular/s.str. claim.
[13]Materiał: Wojewoda 2003 explicitly lists Warszawa and vicinity, citing Berdau 1876 and Chełchowski 1898.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Historical broad taxon concept; cited 19 th-century originals not personally read. The registered Warszawa identity is used for explicitly named city, without new geometry or claiming current occupancy.
[15]Materiał: Myko.cz Nálezy explicitly lists Středočeský kraj 9 Oct 2024 and Zlínský kraj 15 Sep 2017 for M. mastoidea.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Occurrence-list rows read; child pages unavailable; no voucher or curator grade inferred. General Výskyt seasonVII–X is preserved independently with its source-account scope; this evidence does not define the season of Poland.
[6]Materiał: Myko.cz Nálezy 0196-2024-0003 explicitly Středočeský kraj, 9 Oct 2024.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Only the atlas occurrence-list row was read; child page unavailable. One date is not a regional regular season.
[6]Spoločné obmedzenia interpretácie zdroja
Ograniczenia: Broad mastoidea concept includes gracilenta and rickenii; source keeps konradii separate. No dates or ordinary national season supplied for these focal materials. No broader distribution inferred from the unnamed seven-country sample.
[7]Overenie výskytu — rozsah a obmedzenia
Materiał: de Kok & Vellinga 1998, p 75–76: focal Romanian material of Pázmány 1985 discussed and combined in their analysis.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Broad mastoidea concept includes gracilenta and rickenii; source keeps konradii separate. No dates or ordinary national season supplied for these focal materials. Romanian evidence is citation-chain/Pázmány material discussed by authors; Pázmány 1985 original not personally read.
[7]Materiał: Ge et al. 2010, focal species account: descriptive distribution statement and Materials examined; six Chinese collections are retained separately in the species document.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: One source statement and its examined material, not four independent studies. Administrative scopes record named source localities; no inferred complete range, geometry or collection date.
[8]Rozsah spracovania
Pred dokončením treba záznam doplniť alebo preveriť.
- Nové zdroje si vyžadujú preverenie informácií zistených pri kontrole.
Právny základ a rozsah hodnotenia
Predpisy pre lokalitu: Poľsko
Najdôležitejšie látky a ich účinok
W serbskiej analizie biochemicznej próbki Mm-151-2015 oznaczono profil składników odżywczych metodami AOAC. Cukry analizowano techniką HPLC-RI z detekcją refraktometryczną, kwasy organiczne za pomocą UFLC-PDA przy 215 nm, a fenole przy 280 nm. Profil kwasów tłuszczowych określono metodą GC-FID po konwersji do estrów metylowych (dozowanie split 1:40 w 250 °C), a tokoferole za pomocą HPLC z detekcją fluorescencyjną (wzbudzenie 290 nm, emisja 330 nm) z tokolem jako wzorcem wewnętrznym.
[38]Analizy próbki serbskiej wykonano w trzech powtórzeniach, z których każde mierzono trzykrotnie. Dane analityczne zestawiono w przeliczeniu na suchą masę grzyba. W opisie metod jednostki tokoferoli podano w mg/100 g, natomiast w tabeli źródłowej w µg/100 g suchej masy.
[38]Składniki odżywcze i związki biologicznie czynne w suchej masie (próbka serbska):
| Składnik | Zawartość (średnia ± SD) | Jednostka |
|---|---|---|
| Tłuszcz | 3,62 ± 0,03 | g/100 g suchej masy |
| Białko | 32,36 ± 0,05 | g/100 g suchej masy |
| Popiół | 12,44 ± 0,03 | g/100 g suchej masy |
| Węglowodany ogółem | 51,58 ± 0,01 | g/100 g suchej masy |
| Wartość energetyczna | 368,37 ± 0,01 | kcal/100 g suchej masy |
| Mannitol | 4,91 ± 0,08 | g/100 g suchej masy |
| Trehaloza | 2,93 ± 0,06 | g/100 g suchej masy |
| Cukry ogółem | 7,8 ± 0,2 | g/100 g suchej masy |
| Kwas szczawiowy | 0,045 ± 0,005 | g/100 g suchej masy |
| Kwas jabłkowy | 0,32 ± 0,01 | g/100 g suchej masy |
| Kwas cytrynowy | nie wykryto | g/100 g suchej masy |
| Kwas fumarowy | śladowe ilości | g/100 g suchej masy |
| Kwasy organiczne ogółem | 0,37 ± 0,01 | g/100 g suchej masy |
| Kwas p-hydroksybenzoesowy | 0,109 ± 0,002 | mg/100 g suchej masy |
| Kwas p-kumarowy | 0,040 ± 0,002 | mg/100 g suchej masy |
| Związki fenolowe ogółem | 0,150 ± 0,001 | mg/100 g suchej masy |
| Kwas cynamonowy | 0,036 ± 0,001 | mg/100 g suchej masy |
Profil kwasów tłuszczowych w puli lipidowej:
| Kwas tłuszczowy | Udział procentowy we frakcji kwasów tłuszczowych (średnia ± SD) |
|---|---|
| C6:0 (kwas kapronowy) | 0,044 ± 0,004% |
| C8:0 (kwas kaprylowy) | 0,027 ± 0,002% |
| C10:0 (kwas kaprynowy) | 0,028 ± 0,001% |
| C12:0 (kwas laurynowy) | 0,074 ± 0,001% |
| C14:0 (kwas mirystynowy) | 0,29 ± 0,01% |
| C14:1 (kwas mirystooleinowy) | 0,008 ± 0,001% |
| C15:0 (kwas pentadekanowy) | 0,28 ± 0,01% |
| C16:0 (kwas palmitynowy) | 15,84 ± 0,05% |
| C16:1 (kwas palmitooleinowy) | 1,55 ± 0,01% |
| C17:0 (kwas margarynowy) | 0,150 ± 0,002% |
| C18:0 (kwas stearynowy) | 0,88 ± 0,01% |
| C18:1n9 (kwas oleinowy) | 11,10 ± 0,01% |
| C18:2n6 (kwas linolowy) | 66,59 ± 0,03% |
| C18:3n3 (kwas linolenowy) | 0,120 ± 0,001% |
| C20:0 (kwas arachidowy) | 0,170 ± 0,001% |
| C20:1 (kwas gadoleinowy) | 0,080 ± 0,004% |
| C20:2 (kwas eikozadienowy) | 0,094 ± 0,001% |
| C20:3n3 + C21:0 | 0,80 ± 0,04% |
| C20:5n3 (kwas eikozapentaenowy) | 0,32 ± 0,01% |
| C22:0 (kwas behenowy) | 0,67 ± 0,01% |
| C23:0 (kwas trikosanowy) | 0,055 ± 0,001% |
| C24:0 (kwas lignocerynowy) | 0,65 ± 0,01% |
| C24:1 (kwas nerwonowy) | 0,17 ± 0,01% |
| Nasycone kwasy tłuszczowe (SFA) | 19,16 ± 0,06% |
| Jednonienasycone kwasy tłuszczowe (MUFA) | 12,91 ± 0,01% |
| Wielonienasycone kwasy tłuszczowe (PUFA) | 67,92 ± 0,06% |
Aktywność przeciwutleniającą ekstraktu metanolowego oceniano in vitro za pomocą testu wychwytywania rodnika DPPH, testu bielenia β-karotenu w emulsji kwasu linolowego, testu hamowania peroksydacji lipidów TBARS oraz zdolności redukcji żelaza (tworzenia błękitu pruskiego), wyrażając wyniki wartościami EC50. Całkowitą zawartość fenoli oznaczono metodą Folina–Ciocalteu w odniesieniu do kwasu galusowego.
[38]Właściwości przeciwutleniające ekstraktu metanolowego in vitro:
| Oznaczenie | Wynik (średnia ± SD) | Jednostka |
|---|---|---|
| Zawartość związków fenolowych (Folin–Ciocalteu) | 17,35 ± 0,05 | mg GAE/g ekstraktu |
| Zdolność redukcyjna żelazicyjanku, EC50 | 2,10 ± 0,01 | mg/mL ekstraktu |
| Wychwytywanie rodników DPPH, EC50 | 5,4 ± 0,2 | mg/mL ekstraktu |
| Hamowanie bielenia β-karotenu/linolanu, EC50 | 1,85 ± 0,09 | mg/mL ekstraktu |
| Hamowanie peroksydacji lipidów (TBARS), EC50 | 0,47 ± 0,02 | mg/mL ekstraktu |
Aktywność przeciwbakteryjną i przeciwgrzybiczą ekstraktu metanolowego wyznaczano metodą mikrorozcieńczeń, określając minimalne stężenie hamujące (MIC) oraz minimalne stężenie bójcze (bakteriobójcze MBC lub grzybobójcze MFC). W badaniach na Pseudomonas aeruginosa stwierdzono ponadto obniżenie produkcji piocyjaniny w stężeniach poniżej minimalnego stężenia hamującego wzrost (MIC).
[38]Działanie przeciwbakteryjne ekstraktu metanolowego in vitro:
| Szczep bakteryjny | MIC (mg/mL) | MBC (mg/mL) |
|---|---|---|
| Bacillus cereus (izolat kliniczny) | 0,20 | 0,25 |
| Staphylococcus aureus ATCC 6538 | 0,75 | 1 |
| Staphylococcus aureus MRSA (szczep oporny) | 2 | 4 |
| Escherichia coli ATCC 35210 | 1 | 2 |
| Escherichia coli H2b (szczep oporny) | 0,75 | 1 |
| Pseudomonas aeruginosa ATCC 27853 | 2 | 4 |
| Pseudomonas aeruginosa IBRS P001 (szczep oporny) | 1 | 2 |
| Enterobacter cloacae ATCC 35030 | 1 | 2 |
Działanie przeciwgrzybicze ekstraktu metanolowego in vitro:
| Szczep grzyba | MIC (mg/mL) | MFC (mg/mL) |
|---|---|---|
| Aspergillus fumigatus ATCC 9197 | 1 | 2 |
| Aspergillus versicolor ATCC 11730 | 2 | 4 |
| Aspergillus ochraceus ATCC 12066 | 0,5 | 1 |
| Aspergillus niger ATCC 6275 | 1 | 2 |
| Trichoderma viride IAM 5061 | 0,25 | 0,5 |
| Penicillium funiculosum ATCC 10509 | 1 | 2 |
| Penicillium ochrochloron ATCC 9112 | 1 | 2 |
| Penicillium verrucosum var. cyclopium (izolat żywnościowy) | 2 | 4 |
Aktywność antyproliferacyjną ekstraktu metanolowego badano w warunkach in vitro na czterech ludzkich liniach nowotworowych oraz nienowotworowej pierwotnej hodowli komórek wątroby PLP2 w zakresie stężeń 6,25–400 µg/mL, wyznaczając stężenie hamujące wzrost komórek o 50% (GI50). Jako substancję referencyjną zastosowano eliptycynę.
[38]Wpływ ekstraktu na linie komórkowe (wartości GI50):
| Linia komórkowa | Ekstrakt M. mastoidea (GI50, µg/mL) | Eliptycyna (GI50, µg/mL) |
|---|---|---|
| MCF-7 (rak piersi) | 237 ± 14 | 0,91 ± 0,04 |
| NCI-H460 (niedrobnokomórkowy rak płuca) | 287 ± 10 | 1,03 ± 0,09 |
| HeLa (rak szyjki macicy) | 250 ± 9 | 1,91 ± 0,06 |
| HepG2 (rak wątrobowokomórkowy) | 181 ± 16 | 1,1 ± 0,2 |
| PLP2 (nienowotworowe komórki wątroby) | >400 | 3,2 ± 0,7 |
W badaniu brazylijskim z 2024 roku owocniki Macrolepiota mastoidea (kolekcja MP03) ekstrahowano 70% etanolem (v/v) przez 5 minut, a następnie macerowano w 4 °C przez 10 dni, sączono, zatężano na wyparce obrotowej i liofilizowano.
[42]Przesiew fitochemiczny ekstraktu hydroetanolowego: W testach probówkowych ekstraktu stwierdzono obecność alkaloidów (+), flawonoidów (+), terpenoidów (+), cukrów redukujących (+) oraz tanin hydrolizujących i galusowych (reakcja niebieska). Wynik negatywny (−) uzyskano w próbach na obecność glikozydów, steroidów oraz saponin.
[42]W próbie wygaszania rodnika DPPH na płytkach 96-dołkowych badano stężenia ekstraktu hydroetanolowego w zakresie 5–7000 ppm wobec roztworu DPPH o stężeniu 0,147 mMol/mL, mierząc absorbancję przy 517 nm po 60 minutach inkubacji w ciemności.
[42]Wpływ ekstraktu na aktywność acetylocholinesterazy (AChE z Electrophorus electricus, typ VI) oceniano kolorymetrycznie metodą opartą na reakcji z DTNB przy długości fali 405 nm, stosując eserynę jako inhibitor referencyjny.
[42]W teście DPPH ekstrakt hydroetanolowy MP03 wykazał wartość IC50 równą 305,16 ± 0,74 µg/mL. W teście enzymatycznym zaobserwowano hamowanie aktywności acetylocholinesterazy na poziomie 72,1 ± 0,49%.
[42]Ekologické štúdie
Rozsah terénnych údajov
Ge, Yang i Vellinga (2010): Źródło podaje Chiny oraz materiał z Heilongjiang, Jilin i Syczuanu. Daty sześciu zbiorów są pojedynczymi zdarzeniami, nie zwykłym sezonem. Wysokości 220, 400 i 740 m dotyczą opisanych stanowisk, nie granic wysokościowych gatunku. Lasy mieszane nie są wskazaniem konkretnego partnera mikoryzowego.
Cho i współautorzy (2019): Wymieniono materiał z Korei Południowej: Pyeongchang-gun, Hongcheon-gun i Wando-gun. Ciągi cyfr w numerach kolekcji pozostają numerami; bez odrębnego potwierdzenia nie są datami zbioru ani sezonem. Opis obejmuje ziemię, otwarte łąki i skraj lasu; nie wskazuje konkretnego gospodarza.
Česká mykologická společnost: Podane znalezienia z Czech są odrębnymi zdarzeniami. Ogólnego zakresu VII–X nie przypisano Polsce ani krajowi wywnioskowanemu z języka strony. Wzmianka o większej obfitości na suchszych stanowiskach z wapiennym podłożem nie określa pH każdego podłoża. Zalecenie oszczędzania rzadkich owocników nie jest przepisem prawa.
Snowarski i rejestr GRej: Daty, miejsca, siedliska i rośliny z poszczególnych zgłoszeń pozostają kontekstem tych zdarzeń. Jasne miejsca nie są automatycznie stanowiskami nasłonecznionymi, a roślinność zielna nie oznacza sama w sobie łąki. Ochrona obszaru Biedrusko nie jest ochroną gatunkową tego grzyba. Numery fotografii i autorstwo nie ustanawiają licencji do ponownego wykorzystania.
de Kok i Vellinga (1998): Materiały z Holandii, Austrii i Belgii zachowują zakres tej publikacji. Wzmianka o Rumunii ma wtórną ścieżkę do Pázmányego (1985); oryginał tego wcześniejszego źródła nie został odczytany. Materiałów nie przekształcono w krajowe okresy regularnego owocowania.
Heberle i współautorzy (2022): Brazylijska kolekcja jest dokumentacją konkretnego materiału. Jej daty i lokalizacji nie użyto jako polskiego sezonu ani dowodu występowania we wszystkich regionach Brazylii.
Lebeuf i współautorzy (2024): Lokalizacje importowanych materiałów są ich proweniencją. Nie stanowią niezależnych nowych obserwacji krajowych ani podstawy do określenia zwykłego sezonu.
Wojewoda (2003): Zwykły polski okres IX–X pochodzi z pełnego wpisu, nie z dat okazów. Picea abies, Pinus sylvestris i Abies alba opisują roślinność otoczenia. Określenie czasem na glebie wapiennej pozostaje kwalifikowanym stwierdzeniem, nie wyłączną preferencją ani pomiarem pH.
Ślusarczyk (2025): Dane dotyczą Łagowsko-Sulęcińskiego Parku Krajobrazowego w województwie lubuskim, Nadleśnictwa Świebodzin, oddziału 185 d: bór mieszany i ziemia. IX oznacza miesiąc znalezienia; dokładnego roku nie podano. Status parku opisuje miejsce, nie ochronę gatunkową ani zwykły regionalny sezon.
Ślusarczyk (2022): Stanowisko pochodzi z Doliny Starej Słupi w województwie pomorskim: IX 2021, grąd, ziemia. To pojedyncze zdarzenie, nie zakres sezonu regionalnego. Nie stwierdzono tu jawnego oznaczenia s.str. ani potwierdzenia molekularnego.
[8] [5] [6] [13] [7] [25] [26] [15] [12] [11]Ekologické zistenia zo zdrojov
Podmienky a porovnania sú uvedené v spoločnom kontexte a s doslovným znením zdroja.
Źródła: [13]
| Druh zistenia | Význam | Kontext zdroja | Doslovné znenie | Miesto v zdroji | Rozsah interpretácie |
|---|---|---|---|---|---|
| Svetelné podmienky stanovišťa | Na svetlých miestach uvedených v tomto opise stanovišťa. | Macrolepiota mastoidea sensu Snowarski/Gierczyk | Rzadka. Owocniki wyrastają pojedynczo i gromadnie w świetlistych miejscach w lasach liściastych, parkach, zaroślach i wśród roślinności zielnej. | Występowanie, HTML line 500 | Platí v kontexte zdroja, bez určenia všeobecnej preferencie či diagnostických bodov. |
| Vegetácia | Medzi bylinnou vegetáciou podľa toho istého opisu stanovišťa. | Macrolepiota mastoidea sensu Snowarski/Gierczyk | Rzadka. Owocniki wyrastają pojedynczo i gromadnie w świetlistych miejscach w lasach liściastych, parkach, zaroślach i wśród roślinności zielnej. | Występowanie, HTML line 500 | Platí v kontexte zdroja, bez určenia všeobecnej preferencie či diagnostických bodov. |
- Svetlé stanovište neznamená priame oslnenie slnkom. Bylinná vegetácia neurčuje taxón ani hostiteľa.
- Suchšie stanovište a vápnitý skalný podklad sú spoločnou podmienkou porovnania, bez záveru o pH.
Ekologické zistenia zo zdrojov
Podmienky a porovnania sú uvedené v spoločnom kontexte a s doslovným znením zdroja.
Źródła: [6]
| Druh zistenia | Význam | Kontext zdroja | Doslovné znenie | Miesto v zdroji | Rozsah interpretácie |
|---|---|---|---|---|---|
| Porovnanie hojnosti | Hojnejšia na suchších stanovištiach s vápnitým skalným podkladom. | Macrolepiota mastoidea — ČMS | Hojnější je na sušších lokalitách s vápencovým podložím. | Výskyt, HTML source line 50 | Platí v kontexte zdroja, bez určenia všeobecnej preferencie či diagnostických bodov. |
- Svetlé stanovište neznamená priame oslnenie slnkom. Bylinná vegetácia neurčuje taxón ani hostiteľa.
- Suchšie stanovište a vápnitý skalný podklad sú spoločnou podmienkou porovnania, bez záveru o pH.
Biotop a výskyt
W Chinach czubajka sutkowata rośnie jako saprotrof naziemny samotnie lub w rozproszeniu na otwartych łąkach oraz w lasach mieszanych, na obszarze od północnego wschodu po południowy zachód kraju. Kolekcje zielnikowe zbierano od końca lipca do końca września m.in. w prowincjach Heilongjiang, Jilin i Syczuan, na wysokościach 220, 400 oraz 740 m n.p.m.
[40]W Ameryce Południowej obecność gatunku stwierdzono m.in. w brazylijskim biomie Pampa, na wzgórzu Morro do Sabiá w stanie Rio Grande do Sul (30°21′20″S, 54°17′42″W, 124 m n.p.m.), na glebie typu Planossolo Hidromórfico Eutrófico Arênico, w sąsiedztwie pól i terenów podmokłych dorzecza rzeki Vacacaí. Pojedynczy owocnik (HCB18100) zebrano tam w maju 2021 roku.
[41]W badaniach laboratoryjnych prowadzonych w Serbii owocniki zebrano jesienią 2015 roku w Babušnicy koło Pirotu, w południowej części kraju (próbka Mm-151-2015).
[38]Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Zdroje |
|---|---|---|---|
| Rakúsko | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Belgicko | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Čína | Chej-lung-ťiang; Ťi-lin; S’-čchuan | Nie ustalono |
|
| Česko | Stredočeský kraj | Nie ustalono |
|
| Holandsko | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Poľsko | Podkarpatské vojvodstvo; Lubuskie / Lubusz (oblasť v metadátach GBIF); Pomeranian (oblasť v metadátach GBIF); Západopomoranské vojvodstvo; Bukový prales (Puszcza Bukowa); Varšava | IX–X |
|
| Rumunsko | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
Materiály
Herbárové položky
- HCB18100
Brazília; SãoGabriel,MorrodoSabiá,RioGrandedoSul; 12/05/2021; M.A.Heberle
[4]- SFC20150718-01
Južná Kórea; Woljeongsa temple,Pyeongchang-gun,Gangwon-do
[4]- SFC20160927-52
Južná Kórea; NatureEnvironmentResearchPark,Hongcheon-gun,Gangwon-do
[4]- SFC20171012-09
Južná Kórea; DadohaehaesangMarine&CoastalNationalParks,Wando-gun,Jeollanam-do
[4]- E.C.Vellinga2294(L)
Holandsko; N.J.Dam
[4]- Bas7381
Rakúsko
[4]- Boekhout1026
Belgicko
[4]- Zber
Poľsko; Tycówka, przysiółek Ciśca w Gminie Węgierska Górka pow. Żywiec woj. śląskie; 2009-10-01; Ryszard Taran
[14]- BGF/BF/BK/121018/0001
Poľsko; ok. 1,6 km na NE od Radojewa, pow. Poznań, woj. wielkopolskie [N 52°30'29,31" E 16°58'05,66"], BC99; 2012-10-18; Barbara Kudławiec
[14]- BGF/BF/JN/131010/0007
Poľsko; 800 m N od wsi Stobiecko Szlacheckie, gm.Ładzice, pow. radomszczański, woj. łódzkie [51st 6' 36,8" N i 19st 23' 45,95" E], DE45; 2013-10-10; Jacek Nowicki
[14]- BGF0005142
Poľsko; Złoty Potok, pow. częstochowski, woj. śląskie, DE95; 2016-10-22; Krzysztof Kołodziejczyk
[14]- Zber
Poľsko; Puszcza Bukowa (rez. Osetno), 1,6 km na NE od Dobropola Gryfińskiego, pow. gryfiński, woj. zachodniopomorskie, AB94; 2019-10-02; Grazyna Domian
[14]- Zber
Poľsko; Puszcza Bukowa (Dolina Ponikwy), 2,5 km na NW od Binowa, pow. gryfiński, woj. zachodniopomorskie, AB93; 2019-10-09; Grazyna Domian
[14]- BGF0005880
Poľsko; Puszcza Bukowa (rez. Trawiasta Buczyna), 1,5 km SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; 2018-10-14; Grazyna Domian
[14]- BGF0016932
Poľsko; prop. rez. Płoty w gm. Płoty, 1,2 km na NW od miejscowości Kocierz, pow. gryficki, woj. zachodniopomorskie, AB38; 2020-10-08; Grazyna Domian
[14]- BGF0008104
Poľsko; 0,7 km NW od wsi Fryszerka; gm. Gomunice, pow. radomszczański, woj. łódzkie [GPS: 51st 8' 44,8" N i 19st 29' 59,5" E], DE46; 2016-09-22; Jacek Nowicki
[14]- BGF0016751
Poľsko; Równina Wełtyńska (prop. rez. Mszar Gajki), 0,8 km na NE od osady leśnej Gajki, pow. gryfiński, woj. zachodniopomorskie, AC03; 2021-10-06; Grazyna Domian
[14]- BGF0009874
Poľsko; Przemyśl-Lipowica, pow. przemyski, woj. podkarpackie; 2021-10-20; piotr pytel
[14]- Zber
Poľsko; 1,5 km NE od wsi Wąglin; gm. Gomunice, pow. radomszczański, woj. łódzkie [GPS: 51,1528 19,5807], DE47; 2022-10-01; Jacek Nowicki
[14]- BGF0017142
Poľsko; Równina Gorzowska (prop. rez. Lilie Wodne w Barlineckim PK), 3,3 km SE od Moczydła, pow. myśliborski, woj. zachodniopomorskie, AC48; 2022-10-26; Grazyna Domian
[14]- BGF0017139
Poľsko; Równina Pyrzycka (Barlinecki PK, prop. rez. Wilcze Jary), 0,4 km E od nowego Cmentarza Komunalnego w Barlinku (pomiędzy ul. Szosową i Fabryczną), pow. myśliborski, woj. zachodniopomorskie, AC37; 2022-09-30; Grazyna Domian
[14]- Zber
Poľsko; 1 km E od wsi Wąglin; gm. Gomunice, pow. radomszczański, woj. łódzkie [GPS: 51,1431 19,5856], DE47; 2022-11-13; Jacek Nowicki
[14]- BGF0010337
Poľsko; 2km na zach od Wapowiec, pow. przemyski, woj. podkarpackie; 2022-09-27; piotr pytel
[14]- BGF0017124
Poľsko; Wzgórza Bukowe (rez. Trawiasta Buczyna), 2 km na SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; 2023-10-17; Grazyna Domian
[14]- BGF0017122
Poľsko; Wzgórza Bukowe (rez. Źródliskowa Buczyna), 1,2 km NW od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; 2023-11-10; Grazyna Domian
[14]- Zber
Poľsko; Łagowsko-Sulęciński Park Krajobrazowy, województwo lubuskie; Nadleśnictwo Świebodzin, oddział185d; IX; study2010–2022, exact observation year not supplied; Tomasz Ślusarczyk
[14]- Zber
Poľsko; Dolina Starej Słupi, Park Krajobrazowy Dolina Słupi, województwo pomorskie; IX2021; exact day not supplied; Tomasz Ślusarczyk
[14]- HKAS37384
Čína; Heilongjiang Province: Yichun City, Beishan; 2000-08-08; M. S. Yuan4646; 400 m n. m.
[14]- HMAS76557
Čína; Heilongjiang Province: Huma County; 2000-07-29; X.L. Mao, H.A. Wen and S.X. Sun120
[14]- HKAS11084
Čína; Jilin Province: Antu County, Baima town; 2004-08-17; L.F. Zhang605; 740 m n. m.
[14]- HKAS11207
Čína; Jilin Province: Antu County, Jinyuetan Park; 2004-09-29; L.F. Zhang628; 220 m n. m.
[14]- HKAS50914
Čína; Jilin Province: Dunhua City, Huangnihe; 2006-09-05; X.H. Wang2016
[14]- HKAS51950
Čína; Sichuan Province: Chengdu City; 2006-09-30; Z.W. Ge938
[14]
Zdroje
- nr44.anatomy.collections.v2
- Cho et al. 2019. Mycobiology47(4): 368–377; DOI 10.1080/12298093.2019.1663122
- Karel Tejkal, Česká mykologická společnost: Macrolepiota mastoidea (także [39])
- de Kok & Vellinga 1998. Persoonia17(1): 69–79
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota (Agaricaceae, Basidiomycota) in China. Fungal Diversity45:81–98. DOI 10.1007/s13225-010-0062-0.
- Grzyby polskich lasów. Lasy Państwowe; printed112–113/PDF110–111.
- Ślusarczyk T. 2022. Materiały do znajomości mykobioty Parku Krajobrazowego Dolina Słupi. Przegląd Przyrodniczy33(3): 3–29.
- Ślusarczyk T. 2025. Materiały do poznania bioty grzybów Łagowsko-Sulęcińskiego Parku Krajobrazowego. Przegląd Przyrodniczy36(2): 27–69.
- Snowarski M., Gierczyk B. Atlas grzybów Polski / GRej: Macrolepiota mastoidea; public page generated 2026-09-01; taxon comment 2025-12-30.
- nr44.ecology.source-results.20261026
- Wojewoda W. 2003. Checklist of Polish larger Basidiomycetes. Biodiversity of Poland 7; focal entry printed423/PDF425.
- nr44.ge 2010.qmean.v2
- Heberle et al. 2022. RSD11(10):e596111033143; DOI 10.33448/rsd-v11i10.33143 (także [41])
- Lebeuf, Russell & Justo 2024. Fungal Syst Evol14:139–152; DOI 10.3114/fuse.2024.14.09
- Rozporządzenie Ministra Środowiska z dnia 9 października 2014 r. w sprawie ochrony gatunkowej grzybów
- ELIaktualnośćochrony 2014/1408
- Własnypełnyprzeglądaktówirejestrówprawnychrekordu44
- ELIaktualnośćaktupodstawowego 2011/672
- Obwieszczenie Ministra Zdrowia z dnia 13 lutego 2026 r. w sprawie ogłoszenia jednolitego tekstu rozporządzenia Ministra Zdrowia w sprawie grzybów dopuszczonych do obrotu lub produkcji przetworów grzybowych, środków spożywczych zawierających grzyby oraz uprawnień klasyfikatora grzybów i grzyboznawcy
- ELIaktualnośćtekstu 2026/258
- ZweryfikowaneźródłowowynikiprawnePLrekord44
- GBIF Backbone Taxonomy:exact accepted match2536707, Macrolepiota mastoidea;familyAgaricaceae
- PTMyk, KPNG, Rekomendacja5/2025,9June 2025
- PTMyk, Rekomendacja5,9.06.2025
- Species Fungorum, name134693, current name for M.rickenii
- Ćirić A., Kruljević I., Stojković D., Fernandes Â., Barros L., Calhelha R.C., Ferreira I.C.F.R., Soković M., Glamočlija J. 2019. Comparative investigation on edible mushrooms Macrolepiota mastoidea, M.rhacodes and M.procera:functional foods with diverse biological activities. Food&Function10:7678–7686. DOI 10.1039/c9fo01900f
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota (Agaricaceae, Basidiomycota) in China. Fungal Diversity45:81–98. DOI 10.1007/s13225-010-0062-0
- Silva H.V.da, Freitas M.A.M.de, Machado T.H.L., Menezes Filho A.C.P.de, Ventura M.V.A., Rocha E.N.da 2024. First report, phytochemical screening, and antioxidant and acetylcholinesterase inhibition activities of Macrolepiota mastoidea(Fr.)Singer mushroom extract in the Southwest region of Brazil. Brazilian Journal of Science3(12): 50–57. DOI 10.14295/bjs.v3i12.706
- Marek Snowarski i Błażej Gierczyk, atlas/GRej: Macrolepiota mastoidea