
Macrolepiota mastoidea
Macrolepiota mastoidea
Odmiana gatunku Macrolepiota mastoidea
Съедобный

Укажите местоположение, чтобы увидеть данные для своего региона.


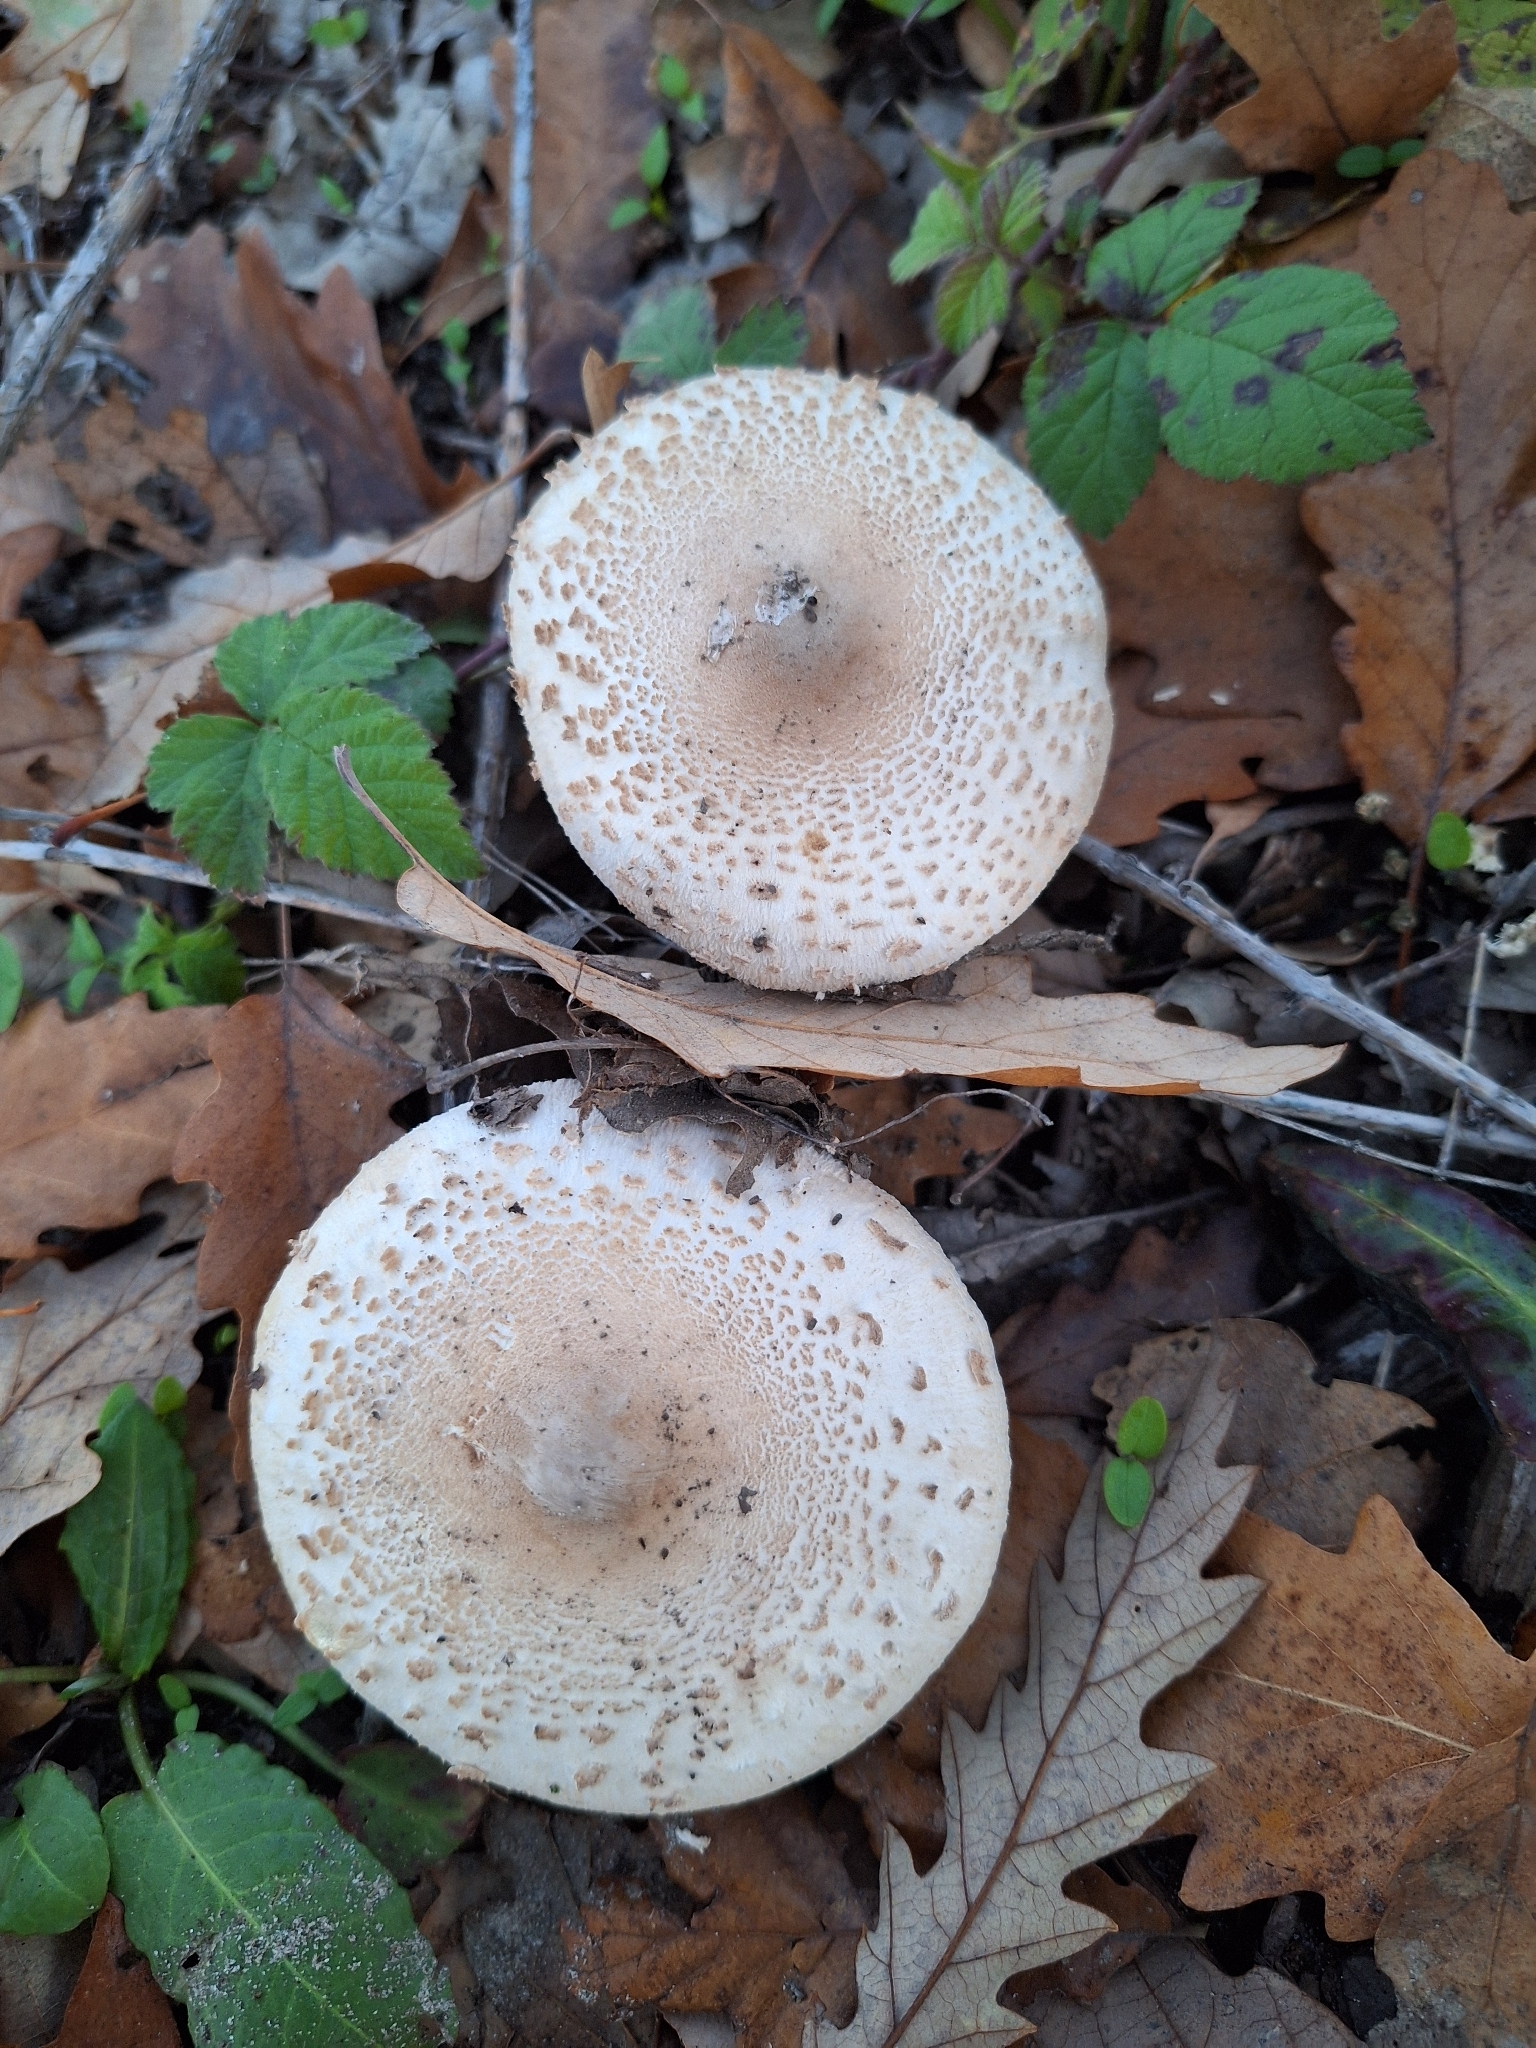
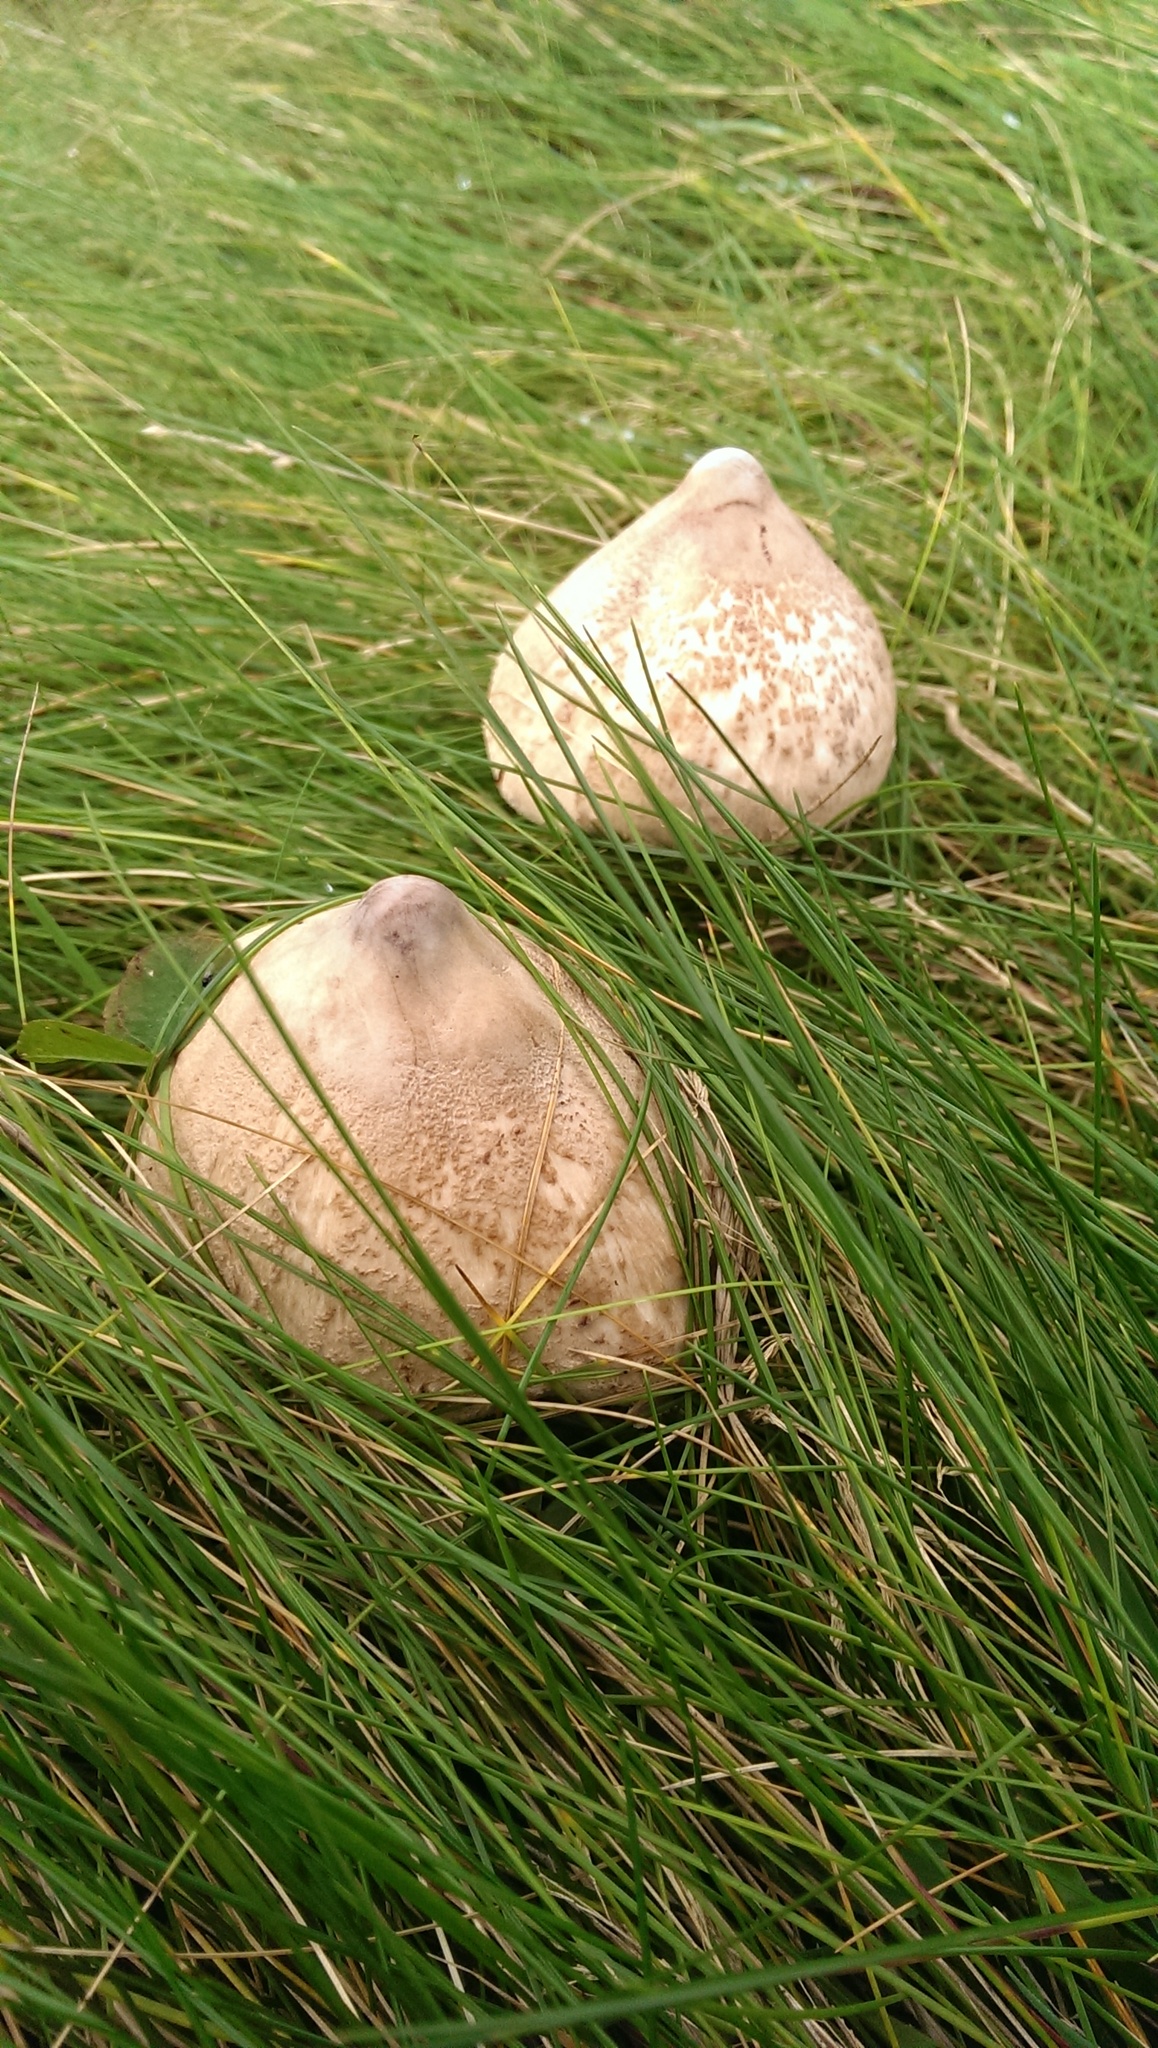
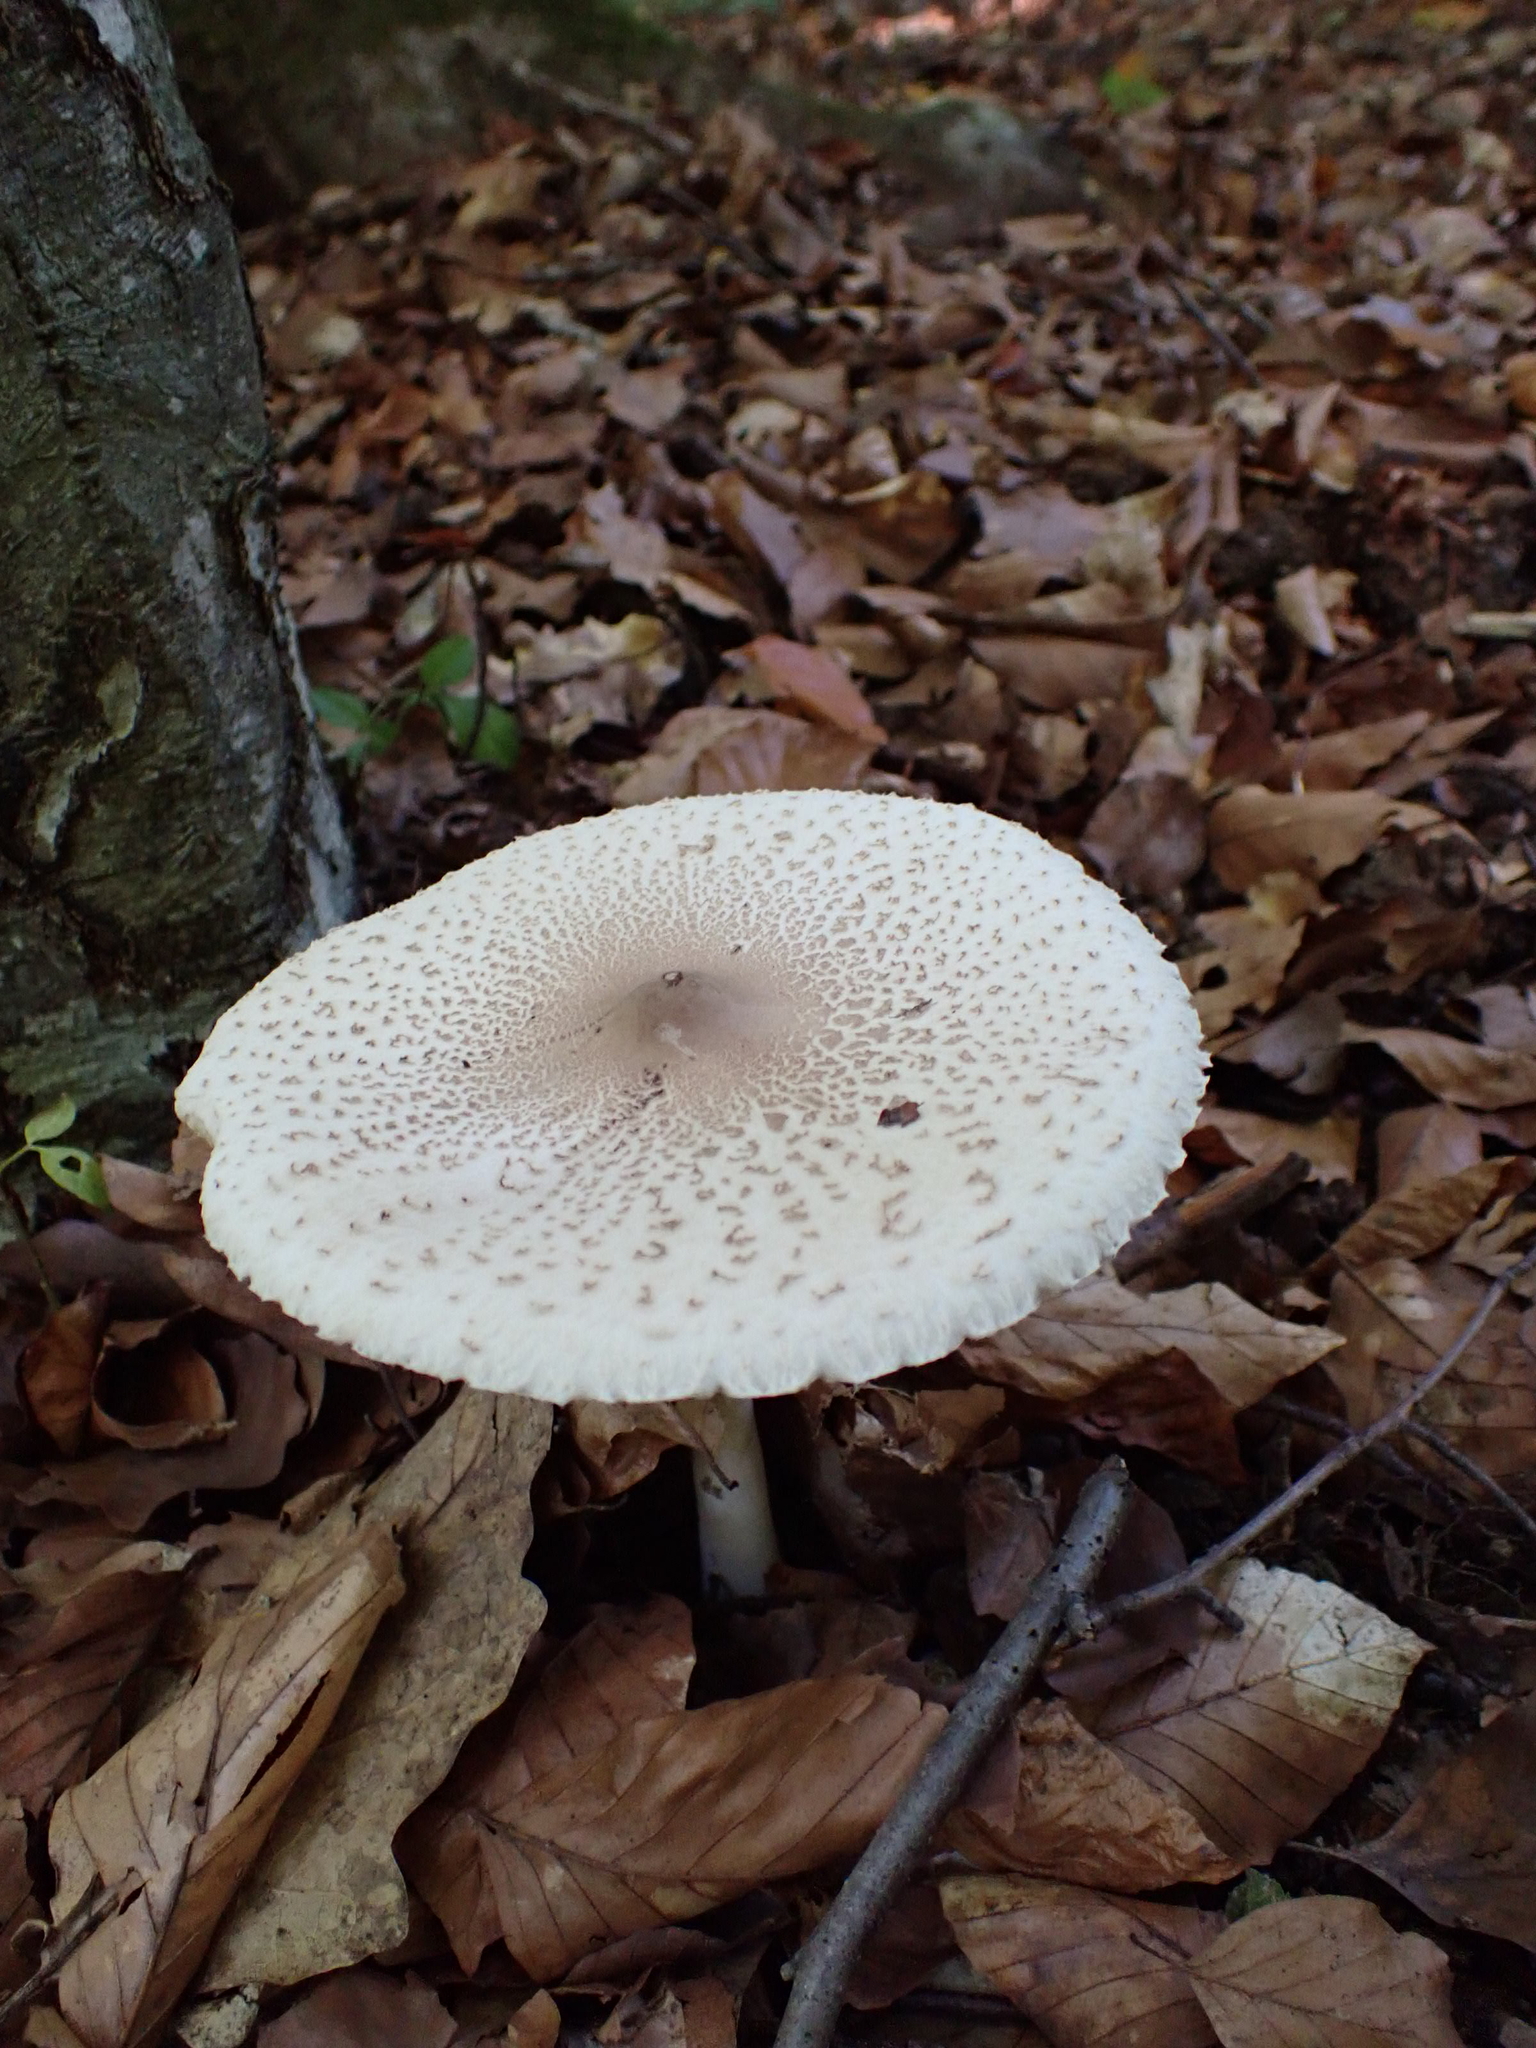
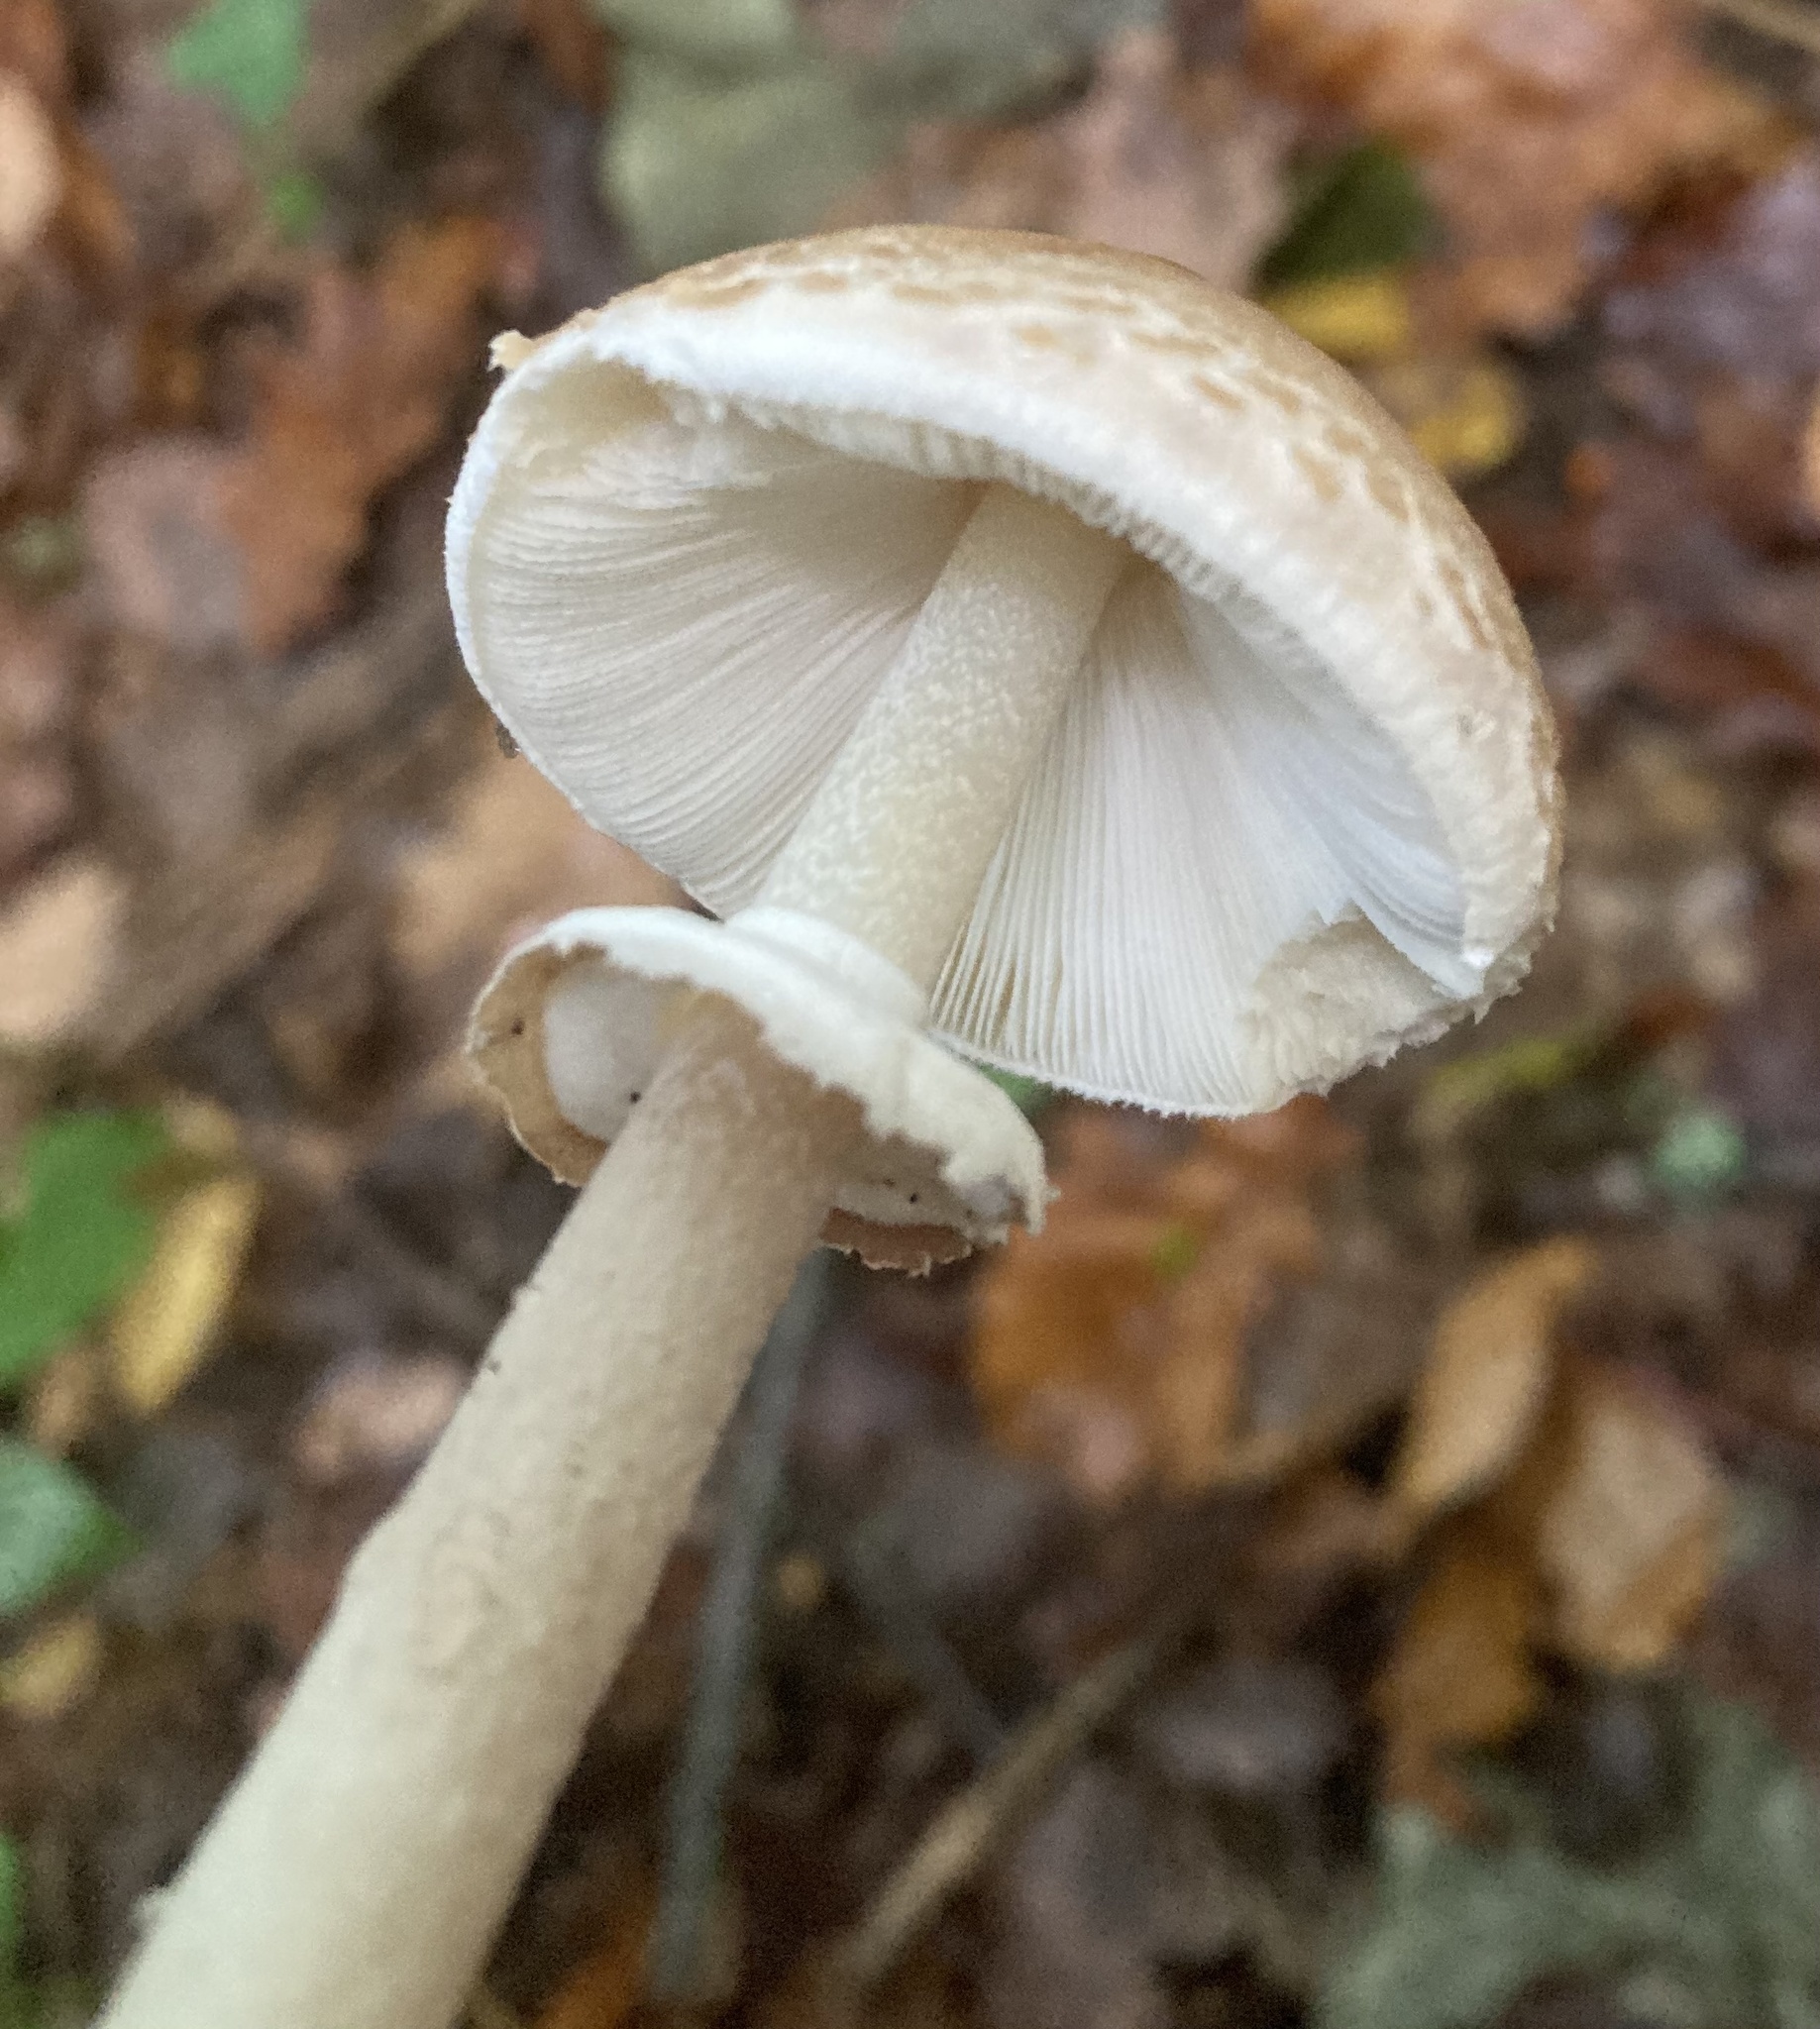
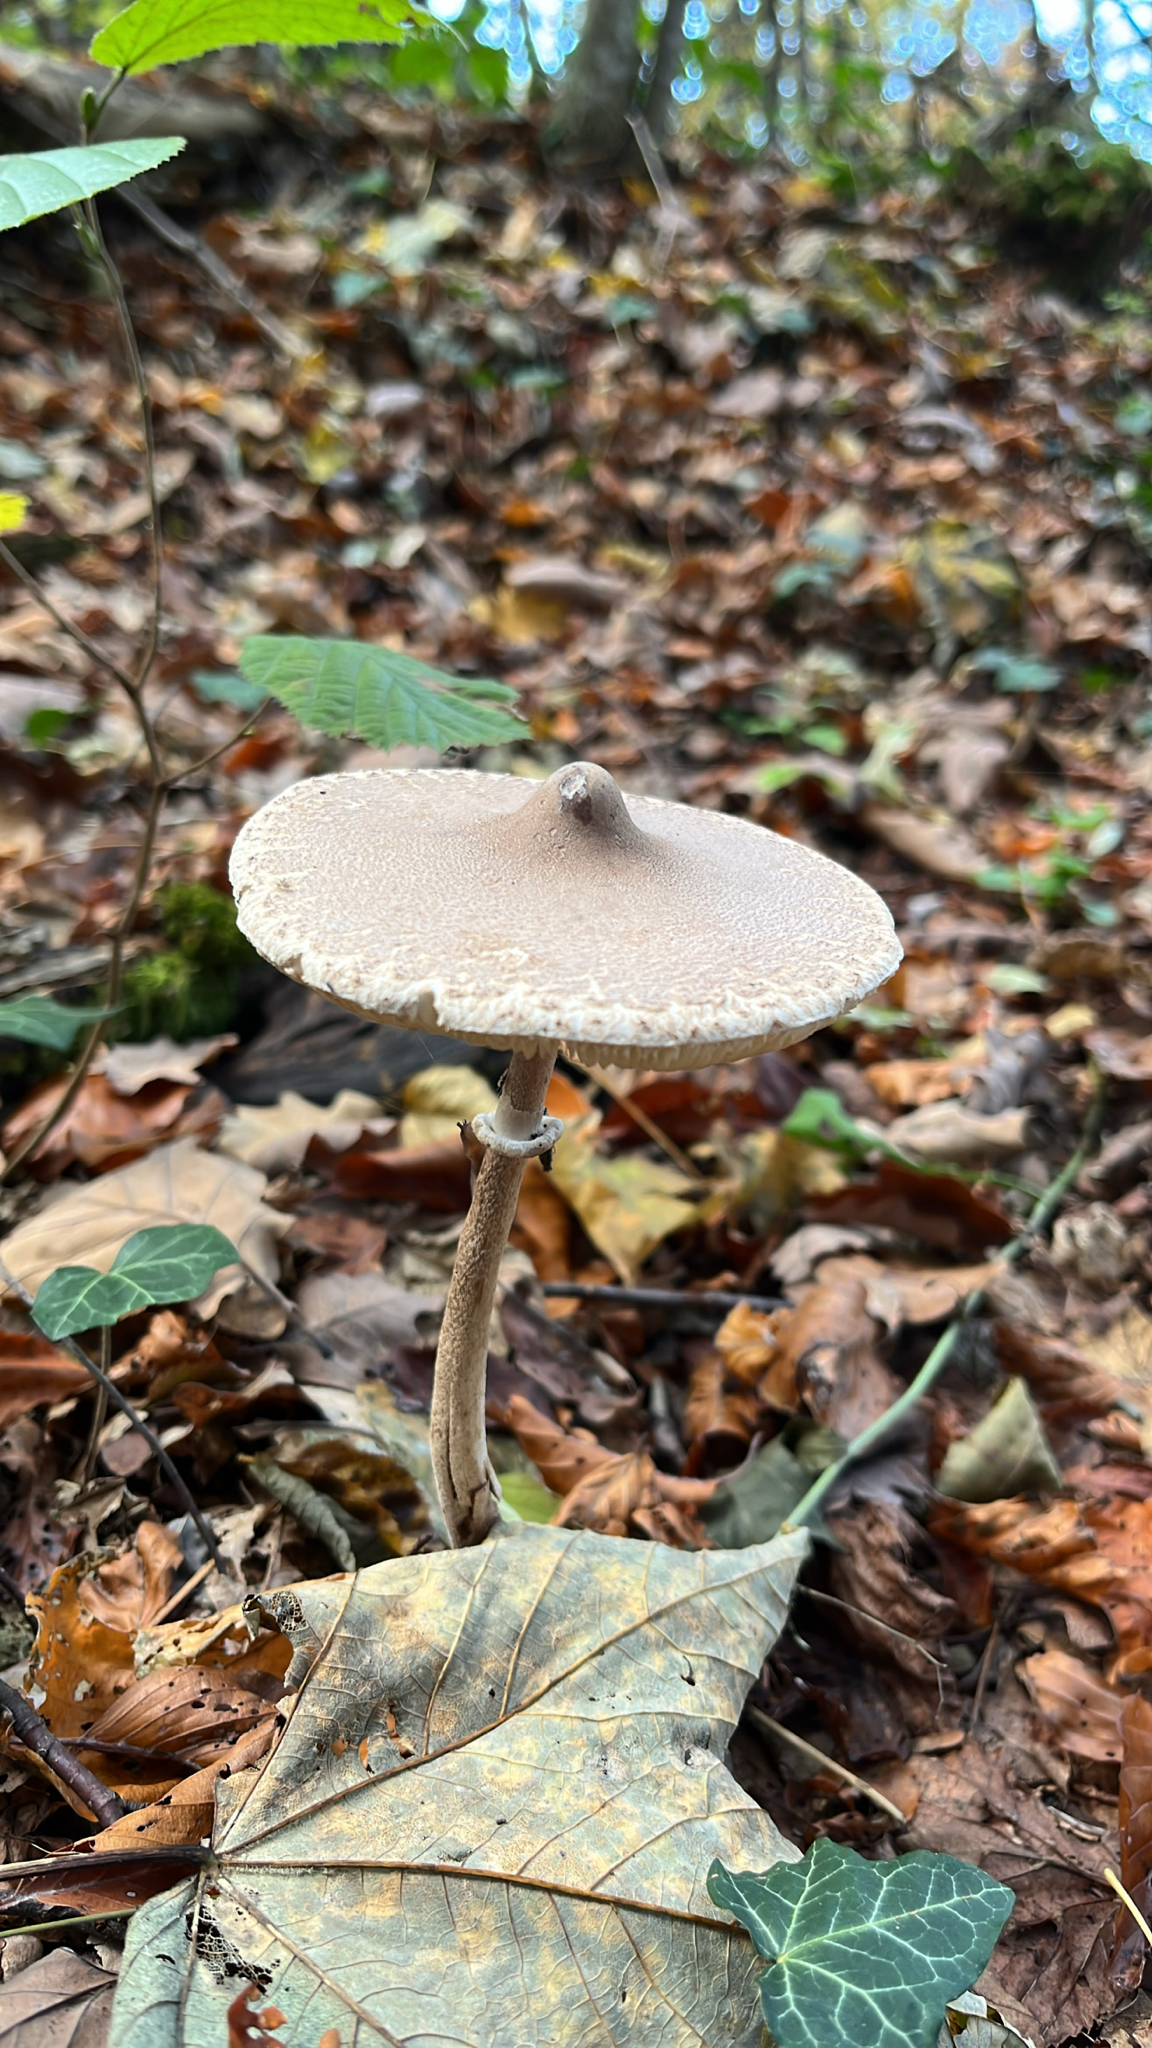
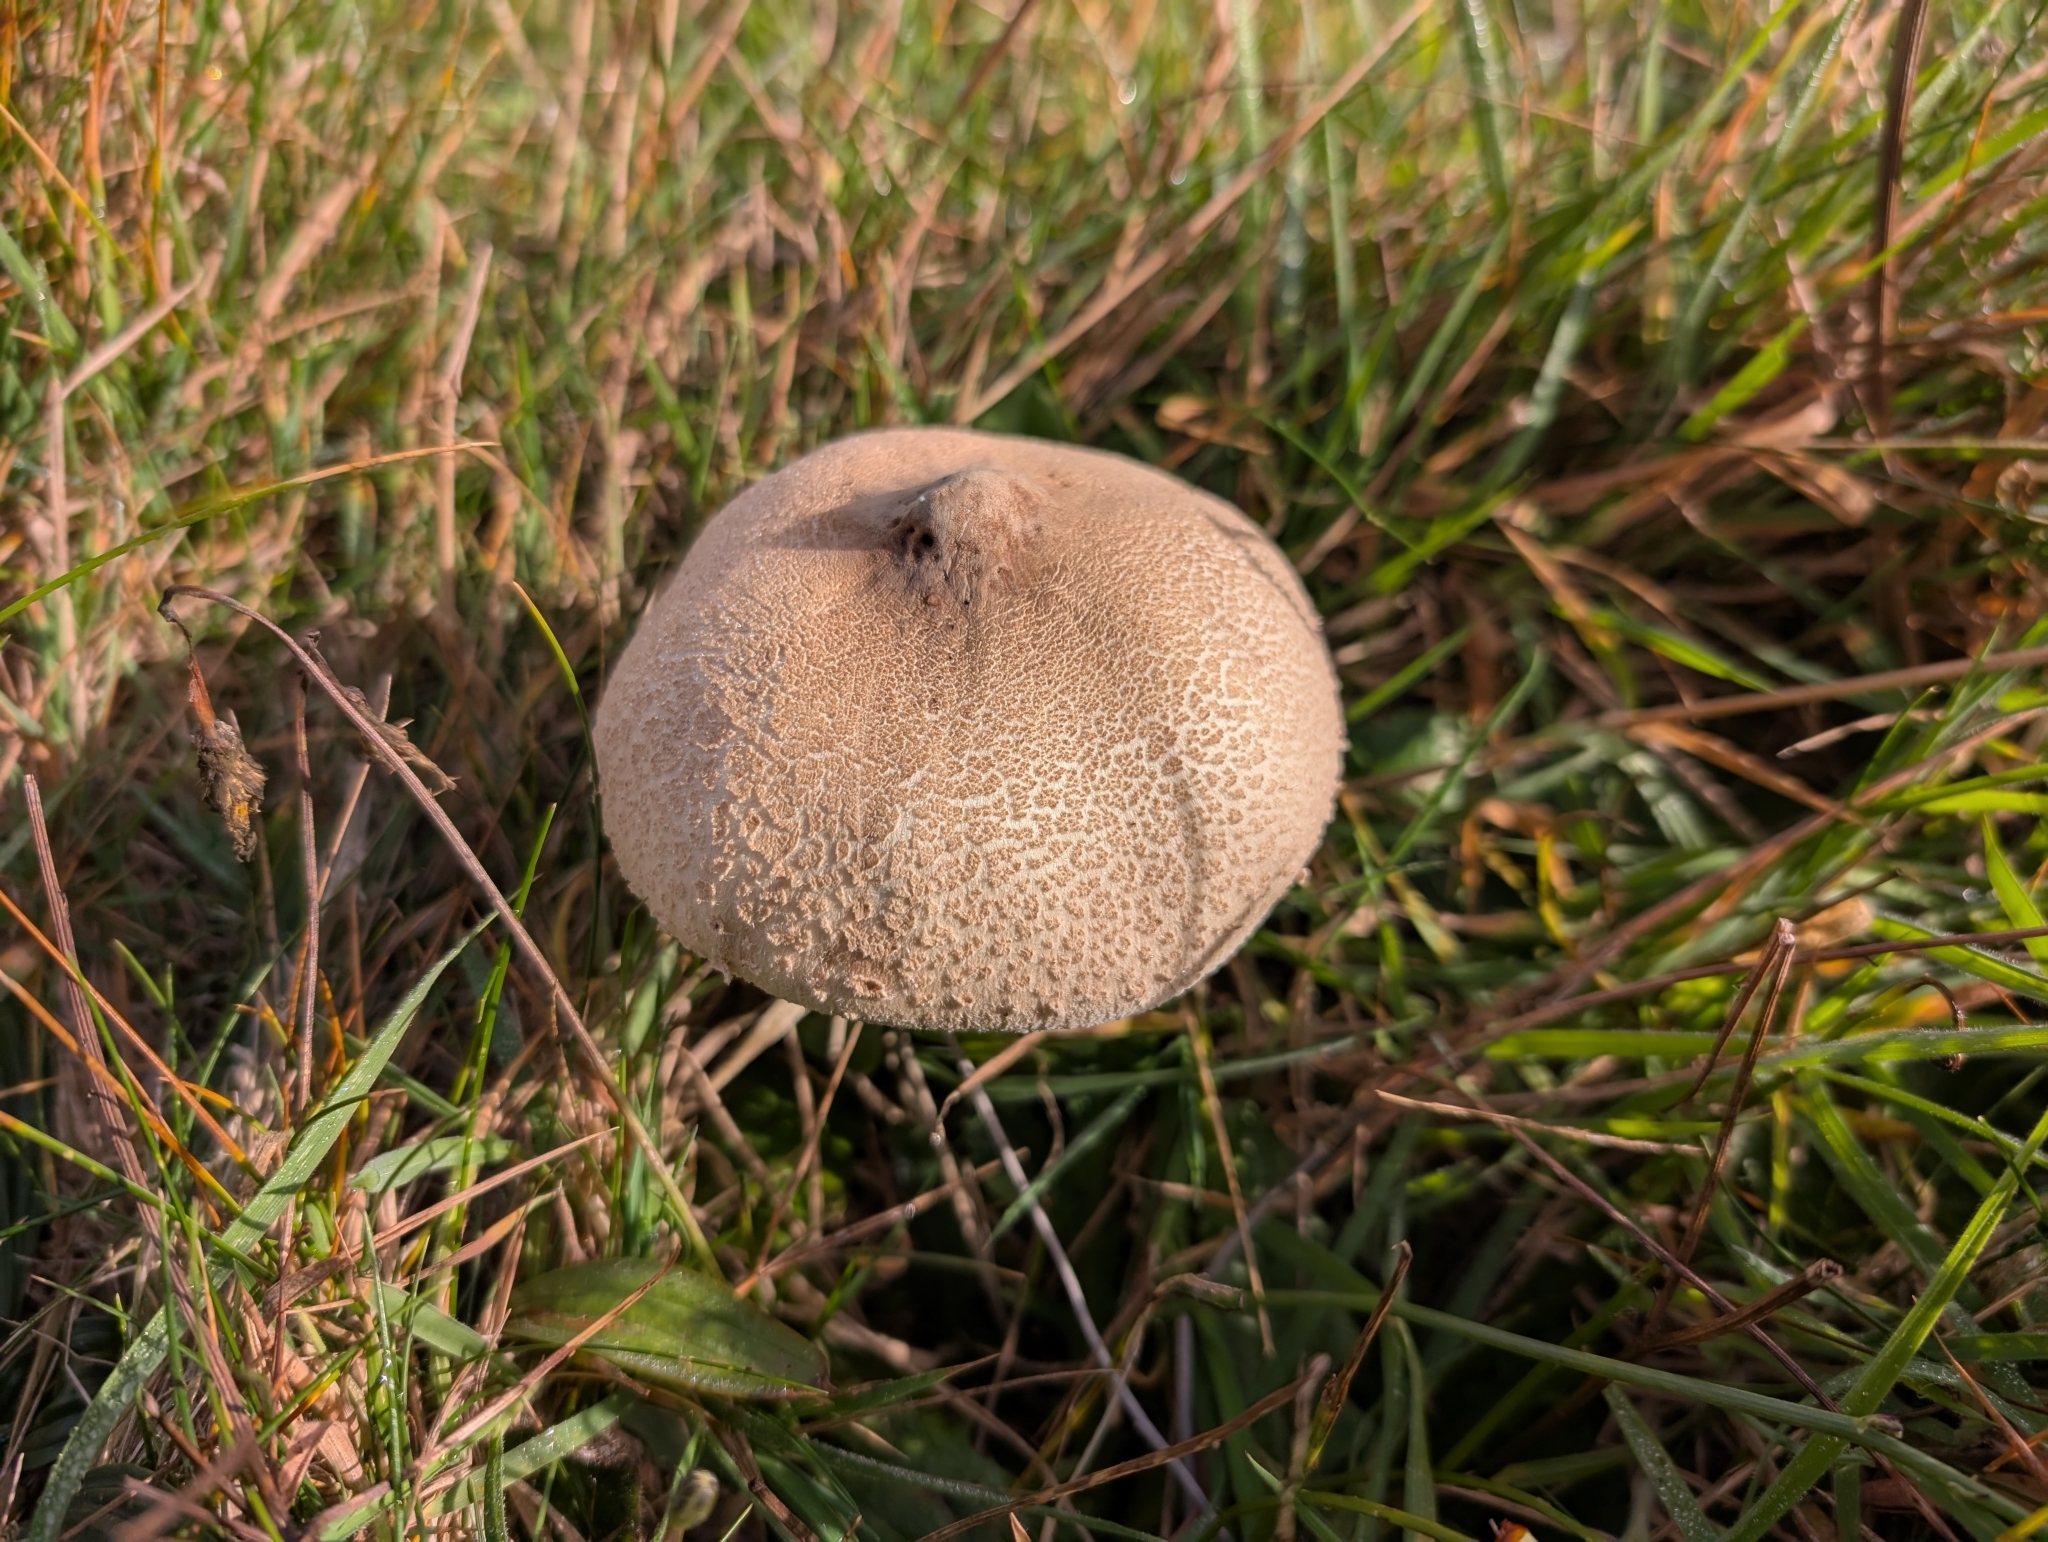
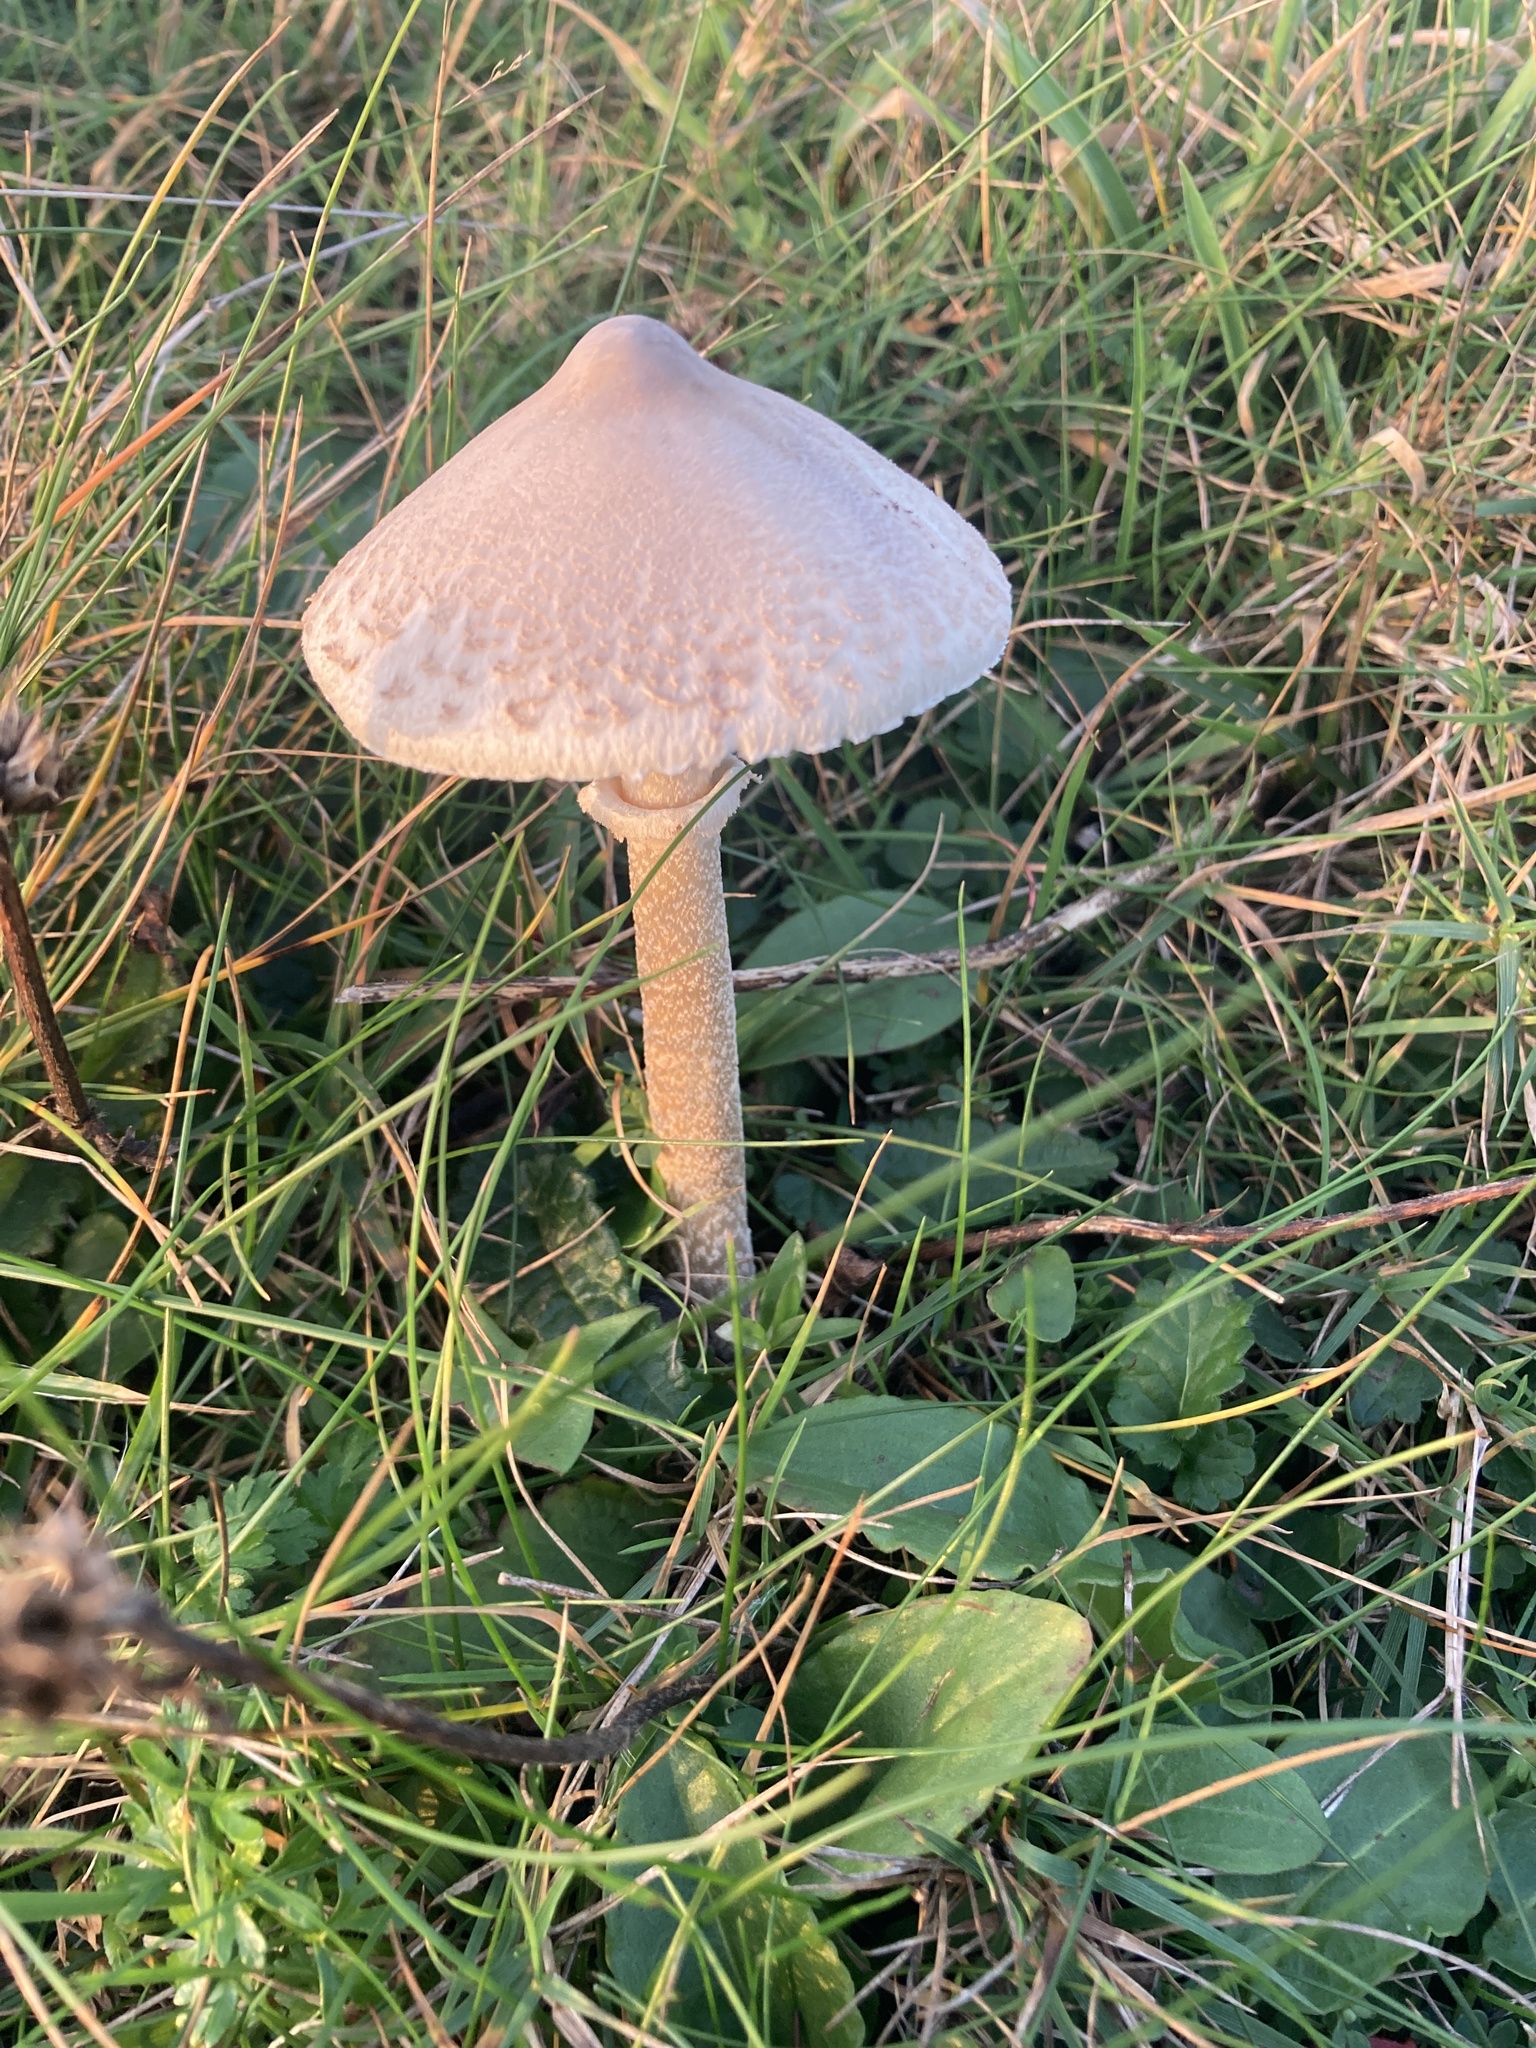
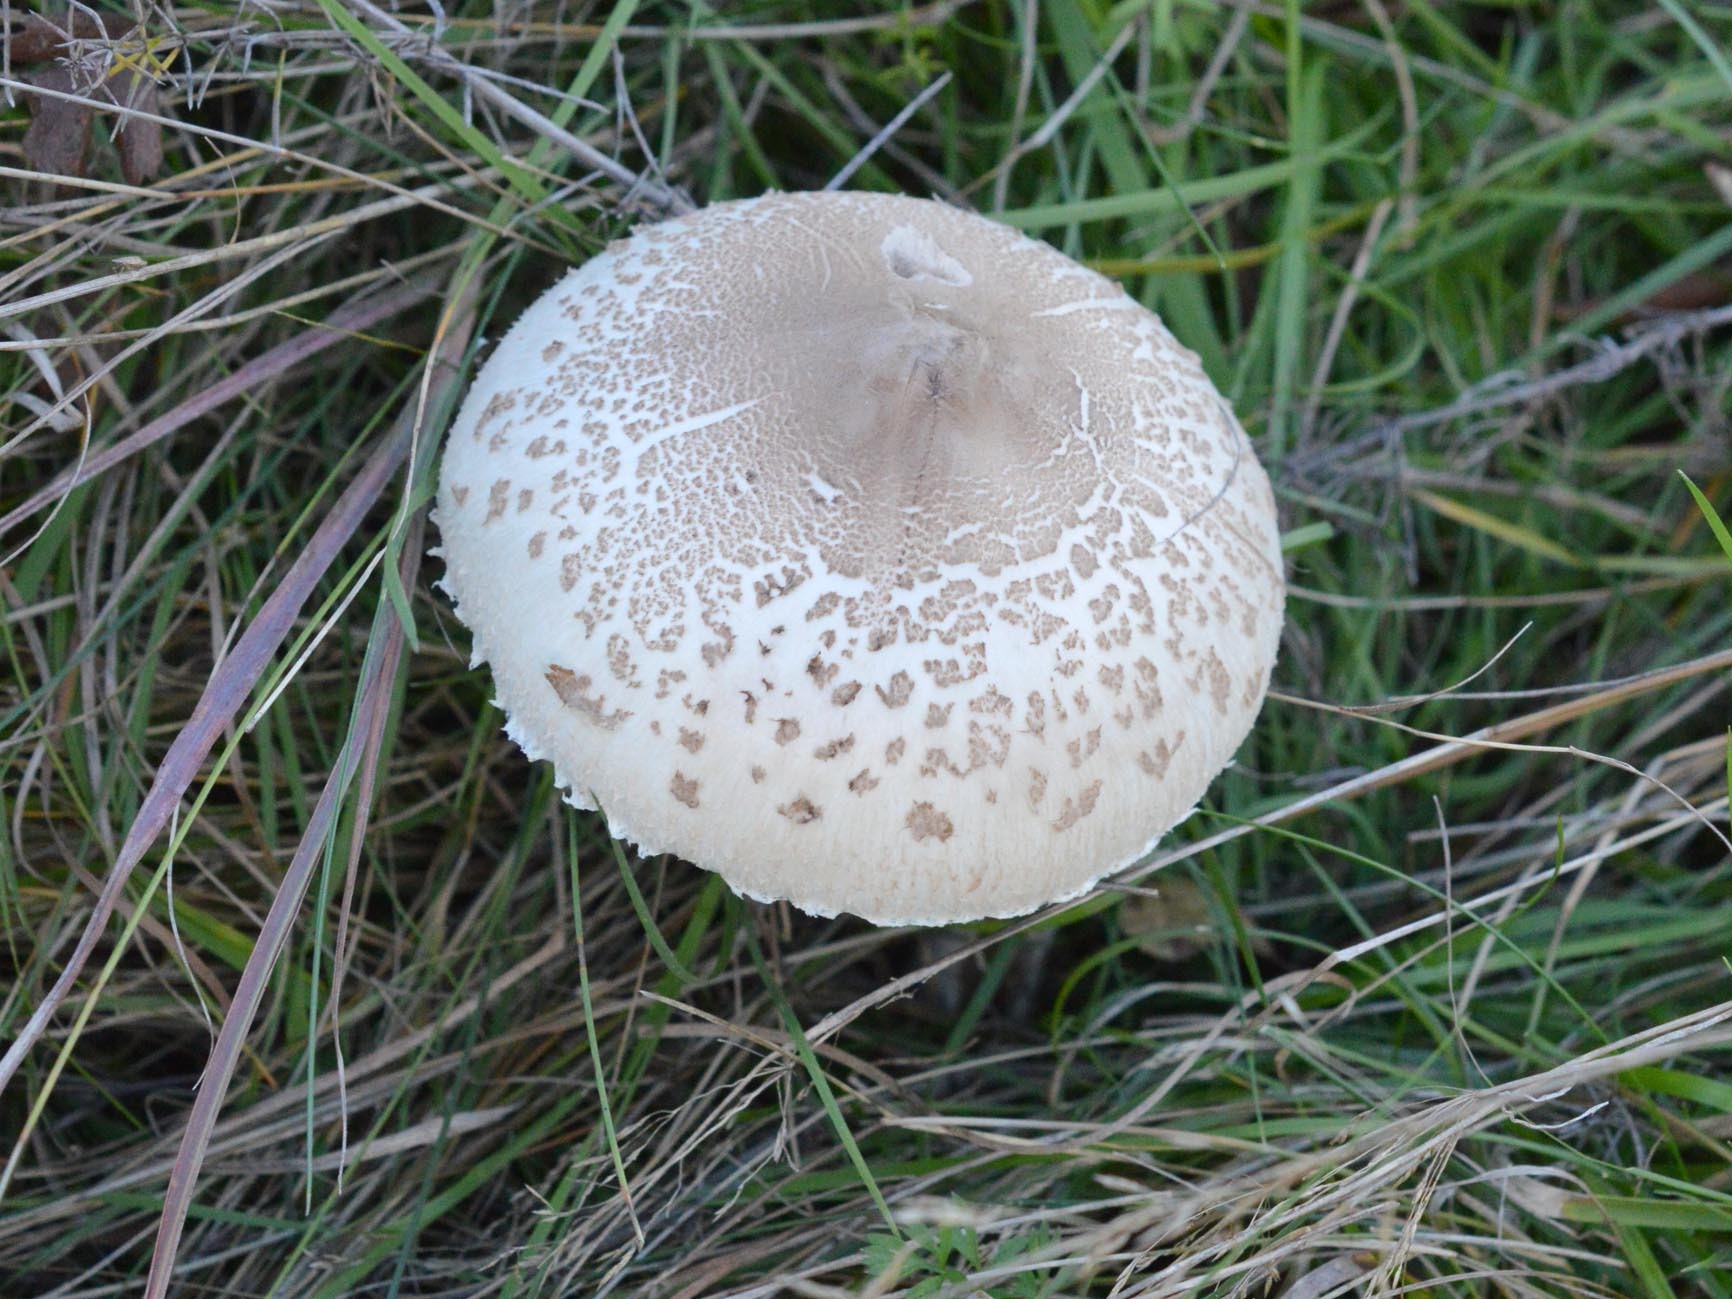
Гриб-зонтик сосцевидный восхищает элегантным силуэтом. Его светлую, кремово-бежевую шляпку украшают мелкие коричневатые чешуйки и отчетливый остроконечный бугорок в центре, напоминающий сосок. Снизу скрываются частые, беловатые свободные пластинки, не доходящие до ножки. Сама ножка высокая, стройная, слегка клубневидная у основания и снабжена подвижным кольцом. В целом гриб смотрится необычайно легко и изящно на фоне лесного покрова.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
Шляпка
- Форма шляпки
- у зрелых плодовых тел: Форма шляпки: выпуклый.
у зрелых плодовых тел: Форма шляпки: выпуклый (уплощённый профиль).
у зрелых плодовых тел: Форма шляпки: плоский.
у молодых плодовых тел: Форма шляпки: яйцевидный.
у молодых плодовых тел: Форма шляпки: колокольчатый.
у молодых плодовых тел: Форма шляпки: цилиндрический и яйцевидный.
у зрелых плодовых тел: Форма шляпки: конический и колокольчатый.
у старых плодовых тел: Форма шляпки: плоский. - Покров шляпки
- Покров шляпки: чешуйчатая (серовато-коричневый).
Покров шляпки: чешуйчатая.
у зрелых плодовых тел: Покров шляпки: чешуйчатая.
Покров шляпки: чешуйчатая (непрерывные, гладкая поверхность покрова).
Покров шляпки: чешуйчатая (в виде лоскутков, неровный контур).
Покров шляпки: чешуйчатая (на краю шляпки, мелкие чешуйки, редкий покров, по направлению к краю).
Покров шляпки: чешуйчатая (отрубевидные, серовато-коричневый).
Покров шляпки: чешуйчатая (серый, красноватый оттенок).
Покров шляпки: чешуйчатая (светло-коричневый покров). - Характер растрескивания поверхности
- у зрелых плодовых тел: Характер растрескивания поверхности: потрескавшаяся, рисунок трещин не указан.
- Цвет шляпки
- Цвет шляпки: белый.
Цвет шляпки: красно-коричневый (центр шляпки).
Цвет шляпки: беловатая.
Цвет шляпки: светло-охристый.
Цвет шляпки: белый (сероватый оттенок).
Цвет шляпки: кремовый (основной цвет).
Цвет шляпки: беловатая (основной цвет).
Цвет шляпки: коричневый (светлый оттенок, орехово-коричневый). - Профиль края шляпки
- Профиль края шляпки: острый.
- Остатки покрывала на краю
- Остатки покрывала на краю: со свисающими остатками покрывала (слегка).
у молодых плодовых тел: Остатки покрывала на краю: со свисающими остатками покрывала (волокнистые). - Диаметр шляпки
- Диаметр шляпки составляет 50–150 mm.
- Центр шляпки
- Центр шляпки: с выраженным бугорком.
Центр шляпки: с выраженным бугорком.
Центр шляпки: с выраженным бугорком.
Центр шляпки: с выраженным бугорком (острый бугорок).
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: пластинки.
Пластинки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: свободный от ножки (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
- Цвет гименофора
- Цвет гименофора: белый.
Цвет гименофора: белый.
Цвет гименофора: беловатая.
Цвет гименофора: кремовый.
Цвет гименофора: серо-коричневый.
Цвет гименофора: белый (сероватый оттенок). - Естественный цвет края пластинки
- Естественный цвет края пластинки: коричневатый (иногда).
- Расстояние между пластинками
- Расстояние между пластинками: густо расположенные.
Расстояние между пластинками: густо расположенные. - Категория ширины пластинок
- Категория ширины пластинок: высокие.
- Наличие коротких пластиночек
- Наличие коротких пластиночек: присутствует.
Наличие коротких пластиночек: присутствует. - Количество рядов длины пластиночек
- Количество рядов длины пластиночек: 2–3.
Ножка и основание
- Форма ножки
- Форма ножки: цилиндрический.
Форма ножки: сужающийся кверху.
Форма ножки: цилиндрический (почти). - Основание ножки
- Основание ножки: клубневидный (слегка).
Основание ножки: утолщённая (слегка).
Основание ножки: клубневидный.
Основание ножки: клубневидный (выраженная, часто). - Цвет ножки
- Цвет ножки: беловатая.
Цвет ножки: кремовый.
Цвет ножки: светло-охристый.
ниже кольца: Цвет ножки: кремовый (основной цвет). - Покров поверхности ножки
- Покров поверхности ножки: чешуйчатая (коричневатый покров).
Покров поверхности ножки: чешуйчатая.
ниже кольца: Покров поверхности ножки: чешуйчатая (охристый покров).
над кольцом: Покров поверхности ножки: хлопьевидная (мелкие чешуйки).
над кольцом: Покров поверхности ножки: чешуйчатая (мелкие чешуйки, отрубевидные, коричневатый покров, особенно).
Покров поверхности ножки: чешуйчатая (мелкие чешуйки, отрубевидные, кремовый).
Покров поверхности ножки: чешуйчатая (мелкие чешуйки, отрубевидные, бледно-коричневый).
ниже кольца: Покров поверхности ножки: чешуйчатая (мелкие чешуйки, охристый покров, темнее фона, расположены кольцами, нечёткое расположение).
Покров поверхности ножки: хлопьевидная (белый покров).
Покров поверхности ножки: чешуйчатая (мелкие чешуйки, телесного цвета). - Внутреннее строение ножки
- у зрелых плодовых тел: Внутреннее строение ножки: полый.
у молодых плодовых тел: Внутреннее строение ножки: сплошной. - Консистенция ножки
- Консистенция ножки: волокнистый и устойчивый к разрыву и волокнистый.
- Длина ножки
- Длина ножки: до 250 mm.
- Диаметр ножки
- Диаметр ножки: 5–20 mm.
Кольцо
- Наличие кольца
- Наличие кольца: присутствует.
Наличие кольца: присутствует.
Наличие кольца: присутствует.
Наличие кольца: присутствует.
Наличие кольца: присутствует.
Наличие кольца: присутствует (простого строения).
Наличие кольца: присутствует (простого строения).
Наличие кольца: присутствует (число колец: 1). - Форма кольца
- Форма кольца: восходящий.
Форма кольца: восходящий. - Строение материала кольца
- Строение материала кольца: перепончатый.
Строение материала кольца: перепончатый.
Строение материала кольца: перепончатый. - Положение кольца
- Положение кольца: в верхней части ножки.
- Цвет кольца
- Цвет кольца: беловатая.
Цвет кольца: беловатая.
Цвет кольца: беловатая (нижняя сторона кольца).
Цвет кольца: коричневатый (верхняя поверхность кольца, точечный). - Окаймление кольца
- Окаймление кольца: с двойным краем (иногда).
- Подвижность кольца
- Подвижность кольца: подвижное.
Подвижность кольца: подвижное (слегка).
Клубень
- Ширина клубня у основания ножки
- Ширина клубня у основания ножки: до 22 mm.
Мякоть
- Цвет мякоти
- Цвет мякоти: беловатая.
Цвет мякоти: белый. - Плотность мякоти
- Плотность мякоти: мягкий (мякоть шляпки).
- Вкус мякоти
- Вкус мякоти: слабый.
Вкус мякоти: приятный, слабый. - Структура мякоти
- Структура мякоти: ватообразный (мякоть шляпки).
- Цвет мякоти после повреждения
- Цвет мякоти после повреждения: без изменения цвета.
Цвет мякоти после повреждения: без изменения цвета. - Запах мякоти
- Запах мякоти: невыразительный.
Где и когда растёт
- Характер роста плодовых тел
- Характер роста плодовых тел: одиночно или группами.
- Частота встречаемости
- Частота встречаемости: редкий.
- Период плодоношения
- Плодовые тела появляются с сентября по октябрь.
- Ареал распространения
- Ареал распространения: подтверждено.
Съедобность и кулинария
- Съедобность
- Съедобный
Законодательство
- Охрана
- В Польше вид не подлежит видовой охране.
- Торговля
- В Польше вид не допущен к торговле или производству грибной продукции.
С чем можно спутать
Macrolepiota procera
Основные различия
Гриб-зонтик пестрый (Macrolepiota procera) обычно достигает более крупных размеров и имеет более темную окраску с крупными, отчетливыми пластинчатыми чешуйками на шляпке и более выраженным зигзагообразным коричневым узором на ножке. Гриб-зонтик сосцевидный имеет значительно более мелкие чешуйки и более тонкий рисунок ножки. Под микроскопом зонтик пестрый отличается более крупными спорами и иной структурой гиф, образующих чешуйки шляпки (триходермальное строение, тогда как у гриба-зонтика сосцевидного присутствует палисадное).
Macrolepiota excoriata
Основные различия
Гриб-зонтик белый (Macrolepiota excoriata) характеризуется гладкой ножкой, тогда как у гриба-зонтика сосцевидного поверхность ножки покрыта мелкими чешуйками. При микроскопических исследованиях у Macrolepiota excoriata также отмечается более частое наличие пряжек у перегородок базидий.
Macrolepiota konradii
Основные различия
Гриб-зонтик сосцевидный (Macrolepiota mastoidea) образует более мелкие и густо расположенные чешуйки на шляпке и чаще растет на открытых травянистых местах. В международном реестре Species Fungorum название M. konradii признается синонимом M. mastoidea, тогда как во многих региональных атласах оба таксона описываются раздельно.
Гриб-зонтик звездчатый (Macrolepiota konradii) отличается более крупными, реже расположенными чешуйками на шляпке, растрескивающимися в характерный звездчатый узор, отличный от мелкой чешуйчатости зонтика сосцевидного. Хотя некоторые авторы включают его в широкий комплекс Macrolepiota mastoidea, в полевых условиях он представляет собой отдельный таксон.
FAQ
Является ли гриб-зонтик сосцевидный съедобным грибом?
Да, это вкусный съедобный гриб. В кулинарии используют главным образом нежные шляпки после надлежащей термической обработки.
Чем он отличается от гриба-зонтика пестрого?
Он обычно стройнее и меньше, а его шляпка отличается острым, резко выраженным бугорком и мелкими чешуйками.
Где чаще всего его можно найти?
Он встречается на почве по опушкам лиственных и смешанных лесов, на полянах, лугах и в залитых солнцем зарослях кустарника.
На какой период в Польше приходится сезон на этот вид?
Основной период плодоношения в польских лесах приходится на раннюю осень — прежде всего на сентябрь и октябрь.
Образует ли гриб-зонтик сосцевидный микоризу с деревьями?
Нет, он является сапротрофом, получающим питательные вещества из разлагающейся почвенной подстилки, а не микоризным партнером деревьев.
Как лучше всего приготовить его к употреблению?
Шляпки великолепны на вкус жаренными на сливочном масле, в панировке или тушеными; твердые ножки стоит высушить и перемолоть.
С какими опасными грибами его можно спутать?
Его можно спутать со смертельно ядовитыми светлыми мухоморами или ядовитыми мелкими видами лепиот.
По каким признакам можно узнать его шляпку?
По светлому фону с мелкими коричневатыми чешуйками и отчетливому остроконечному бугорку, расположенному в центральной точке.
Является ли кольцо на ножке подвижным?
Да, зрелые экземпляры имеют отчетливое кольцо, которое можно свободно перемещать вдоль гладкой, стройной ножки.
Можно ли употреблять этот вид в сыром виде?
Нет, гриб-зонтик сосцевидный безусловно требует тщательной термической обработки перед употреблением.
Любитель
Названия и история
- Obowiązująca nazwa taksonomiczna
- Macrolepiota mastoidea
- Pozostałe nazwy
- Czubajka sutkowata
Наблюдения дома
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 часов поднимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: белый.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: эллипсоидный. Форма споры: яйцевидный. Форма споры: эллипсоидный. Форма споры: эллипсоидный. Форма споры: яйцевидный. Форма споры: эллипсоидный. Форма споры: каплевидный. Форма споры: эллипсоидный. Форма споры: яйцевидный.
- Поверхность споры
- Поверхность споры: гладкий. Поверхность споры: гладкий. Поверхность споры: гладкий. Поверхность споры: гладкий.
- Размеры споры
- Длина 11–18 µm, ширина 7–10,4 µm.
- Размеры споры
- Длина 12,95 µm, ширина 8,69 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Экология и распространение
- Известковость почвы
- Известковость почвы: известковый (иногда).
- Хвойные деревья поблизости
- Хвойные деревья поблизости: Picea abies.
Хвойные деревья поблизости: Pinus sylvestris.
Хвойные деревья поблизости: Abies alba. - Способ питания
- Способ питания: сапротрофный.
Некулинарное применение
В кулинарии используют прежде всего нежные шляпки, которые великолепны на вкус жаренными на сливочном масле, в панировке или в качестве добавки к ароматным соусам. Твердые ножки обычно сушат и перемалывают в грибную приправу. В традиционном хозяйстве этот гриб ценился за приятный запах и вкусовые качества, обогащающие осенний рацион грибников.
История и культура
Видовой эпитет «mastoidea» происходит из греческого языка и указывает на сосковидное возвышение на шляпке. В польской номенклатуре гриб иногда называли сосковым зонтиком или более мелким сородичем зонтика пестрого. Хотя в прошлом его путали с родственными таксонами, в микологических атласах он занял прочное место как приятный и ценимый грибниками элемент местной природы.
Съедобность и безопасность
Он считается вкусным съедобным грибом, однако требует абсолютной осторожности. Никогда не полагайтесь на один-единственный признак — всегда оценивайте одновременно кольцо, ножку, свободные пластинки и бугорок. Начинающие могут спутать его со смертельно ядовитыми мухоморами или ядовитыми мелкими лепиотами. Собирайте только полностью развитые, надежно опознанные экземпляры.
Местообитание и встречаемость
Он растет на почве как сапротроф, разлагая лесную подстилку, поэтому присутствие деревьев поблизости не означает микоризу. Его можно встретить на опушках лиственных и смешанных лесов, на полянах, в зарослях кустарника и на солнечных травянистых холмах. В Польше плодовые тела обычно появляются в сентябре и октябре, хотя в более теплых регионах Европы сезон бывает длиннее.
Источники
- Karel Tejkal, Česká mykologická společnost: Macrolepiota mastoidea
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota (Agaricaceae, Basidiomycota) in China. Fungal Diversity45:81–98. DOI 10.1007/s13225-010-0062-0.
- Wojewoda W. 2003. Checklist of Polish larger Basidiomycetes. Biodiversity of Poland 7; focal entry printed423/PDF425.
Исследователь
Мякоть
- Запах мякоти
- Запах мякоти: запах чешуек кожицы шляпки может напоминать запах Macrolepiota procera. [6]
Съедобность и кулинария
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Съедобность
- Съедобный
Źródło oznaczenia.
Tejkal K. Česká mykologická společnost: Macrolepiota mastoidea. · Kuchyňské využití: Je jedlá a chutná podobně jako bedla vysoká; source author assessment. No preparation requirement inferred.
Snowarski M., Gierczyk B. Atlas grzybów Polski / GRej: Macrolepiota mastoidea; public page generated2026-09-01; taxon comment2025-12-30. · jadalne czy trujące?: Jadalna / Edible; source author assessment. No raw-edibility or preparation requirement inferred.
Научные названия и таксономия
- Действующее научное название
Macrolepiota mastoidea
Czubajka sutkowata, Macrolepiota mastoidea (Fr.) Singer, należy do rodziny pieczarkowatych (Agaricaceae). Nazwa ta obejmuje grupę bardzo zbliżonych morfologicznie form, których granice bywają różnie ujmowane w atlasach i opracowaniach taksonomicznych. W chińskiej rewizji z 2010 roku wykazano niewielkie różnice w sekwencjach regionu ITS pomiędzy próbkami zaliczanymi do tego kompleksu. W szerszych ujęciach systematycznych pojawiają się europejskie nazwy Macrolepiota affinis, Macrolepiota gracilenta oraz Macrolepiota rickenii, jednak ranga i odrębność tych drobnych taksonów pozostają przedmiotem dyskusji.
[40] [43] [39]- Zakres ujęcia taksonomicznego
Macrolepiota mastoidea (Fr.) Singer jako zaakceptowany gatunek GBIF2536707, z zachowaniem preferowanego celu rekordu44: Czubajka sutkowata. Materiały i dawne synonimiczne lub szersze ujęcia zachowują własny zakres źródłowy. PTMyk2025 rekomenduje czubajka wątła dla nazwy z kolumny3 Macrolepiota affinis(Velen.)Bon; kolumna2 przywołuje M.mastoidea(Wojewoda2003),a kolumna4 wcześniejszą czubajka sutkowata. Komisja nie rozstrzyga taksonomii. To pozostaje jawną różnicą ujęcia,nierozstrzygniętą tutaj jako pełna tożsamość M.affinis i wszystkich materiałów M.mastoidea. Nie scala się osobnego rekordu45 M.konradii.
[34] [35]
Примечания к трактовке таксона
Ge, Yang i Vellinga (2010): Autorzy omawiają zmienność kompleksu M. mastoidea i małe różnice ITS. Nie utożsamia się historycznych nazw z nowym oznaczeniem każdego okazu. Materiał HMAS28232 rozpoznano ponownie jako Lepiota clypeolaria; nie potwierdza on tego gatunku.
Cho i współautorzy (2019): Opis M. mastoidea jest odrębny od poprzedzającego go opisu M. detersa. Nazwa M. umbonata w tej pracy oznacza inny opisany gatunek; samo określenie garbka nie uzasadnia synonimizacji. Różnic sekwencji europejskich i azjatyckich nie rozstrzyga się tu jako nowej globalnej synonimii.
Česká mykologická společnost: Atlas rozróżnia M. konradii dla własnego ujęcia. Przywołane szersze traktowanie z innej publikacji jest wtórnym odsyłaczem, nie samodzielnym rozstrzygnięciem pozwalającym połączyć dwa rekordy.
Snowarski i rejestr GRej: Strona obejmuje kompleks M. mastoidea z odrębnymi adnotacjami rickenii i prominens, a M. konradii wyłącza. Jawne s.str. i formalny status zgłoszenia to różne informacje; komentarz o s.str. nie zastępuje oznaczenia wpisu jako zweryfikowanego przez kustosza.
de Kok i Vellinga (1998): Źródło ujmuje M. gracilenta i M. rickenii w synonimii M. mastoidea. Historyczne M. mastoidea sensu Konrad i Maublanc wyłącza jako M. konradii. Zachowano ujęcie danej publikacji, bez automatycznego przenoszenia każdej nazwy lub starego oznaczenia do jednego współczesnego taksonu.
Heberle i współautorzy (2022): Oznaczenie dotyczy materiału przedstawionego jako M. mastoidea w pracy z Brazylii. Nie uznano go za nową rewizję wszystkich europejskich ujęć gatunku.
Lebeuf i współautorzy (2024): Publikacja opisuje M. macilenta i M. pallida z Ameryki Północnej. Ich wymiarów i opisów nie przeniesiono do europejskiego M. mastoidea; nazwa tego ostatniego pełni także rolę taksonu porównawczego.
Polskie Towarzystwo Mykologiczne (2025): W rekomendacji nazw kolumna 2 podaje M. mastoidea w ujęciu Wojewody, kolumna 3 M. affinis, nazwa zalecana brzmi czubajka wątła, a wcześniejsza czubajka sutkowata. Komisja nie rozstrzyga przez tę tabelę taksonomii; zachowano niepewny zakres i dotychczasową tożsamość rekordu.
Species Fungorum, rekord 134693: Rekord nazwy 134693 wiąże M. rickenii z aktualną nazwą M. mastoidea (Fr.) Singer. Źródłowe daty i zapis bibliograficzny zachowano; nie utożsamiono tego pojedynczego rekordu nomenklatorycznego z pełnym przeglądem wszystkich synonimów.
Wojewoda (2003): Wpis obejmuje źródłowe szersze ujęcie M. mastoidea z rickenii i umbonata oraz odsyłaczem do gracilenta. M. konradii ma obok odrębny wpis.
Ślusarczyk (2025): Wpis z Nadleśnictwa Świebodzin, oddziału 185 d, podano pod nazwą Macrolepiota mastoidea. Nie przedstawiono go jako jawnego oznaczenia s.str. ani potwierdzenia molekularnego.
Ślusarczyk (2022): Wpis z Doliny Starej Słupi z IX 2021 podano pod nazwą Macrolepiota mastoidea. Nie przedstawiono go jako jawnego oznaczenia s.str. ani potwierdzenia molekularnego.
Atlas Lasów Państwowych — inny takson: Sprawdzany materiał Lasów Państwowych ma nagłówek M. konradii. Jego opisów, zakresu VII–X ani informacji o częstości nie włączono jako dowodu dla rekordu M. mastoidea.
[8] [5] [6] [13] [7] [25] [26] [36] [37] [15] [12] [11] [9]Экология и распространение
- Местообитание
- Местообитание: хвойный лес, лиственный лес, кустарниковые заросли, опушка леса или обочина дороги (название вида в источнике: Macrolepiota mastoidea sensu Wojewoda2003 (rickenii/umbonata included; gracilenta crossref; konradii separate)). [15]
Местообитание: лиственный лес, парк или кустарниковые заросли (название вида в источнике: Macrolepiota mastoidea sensu Snowarski/Gierczyk atlas complex, excluding separate konradii). [13]
Местообитание: смешанный лес (название вида в источнике: Macrolepiota mastoidea sensu Ślusarczyk2025; source morphology, no explicit s.str.). [12]
Местообитание: лиственный лес (название вида в источнике: Macrolepiota mastoidea sensu Ślusarczyk2022; source morphology, no explicit s.str.). [11] - Субстрат
- Субстрат: почва (название вида в источнике: Macrolepiota mastoidea sensu Wojewoda2003). [15]
Субстрат: почва (название вида в источнике: Macrolepiota mastoidea sensu Ślusarczyk2022). [11]
Субстрат: почва (название вида в источнике: Macrolepiota mastoidea sensu Ślusarczyk2025). [12]
Субстрат: подстилка (название вида в источнике: Macrolepiota mastoidea sensu Myko.cz; konradii separate). [6] - Частота встречаемости
- Польша: Частота встречаемости: редкий. [13]
Лабораторная диагностика
Dane ustrukturyzowane
Базидии
- Оптический вид базидии
- Оптический вид базидии: гиалиновый. [8]
Оптический вид базидии: гиалиновый. [5]
Оптический вид базидии: гиалиновый. [25] - Число спор на базидии
- Число спор на базидии составляет 4. [5]
Число спор на базидии составляет 4. [8]
Число спор на базидии составляет 4. [25] - Наличие содержимого базидии
- Наличие содержимого базидии: присутствует (редко, мелкие гранулы и пузырьковидные структуры). [5]
- Длина базидии
- Длина базидии: 33–39,7 µm. [5]
Длина базидии: 32–44 µm. [25]
Длина базидии: 32–44 µm. [8] - Форма базидии
- Форма базидии: булавовидный. [8]
Форма базидии: булавовидный. [5]
Форма базидии: булавовидный. [25]
Корковый слой шляпки
Клетки чешуек шляпки
- Форма верхушки микроскопической клетки
- Форма верхушки микроскопической клетки: сужающийся к верхушке (слегка). [8]
Форма верхушки микроскопической клетки: сужающийся к верхушке (слегка). [5] - Ветвление
- Ветвление: разветвлённый (редко). [8]
- Длина
- Длина: 36,9–71,9 µm. [5]
- Цвет пигмента
- Цвет пигмента: жёлтый (Желтоватый, в вакуолях). [8]
Цвет пигмента: коричневый (коричневатый, в вакуолях). [8]
Цвет пигмента: жёлтый (Желтоватый, в вакуолях). [5]
Цвет пигмента: коричневый (коричневатый, в вакуолях). [5] - Форма
- Форма: цилиндрический (почти). [8]
Гимениальные цистиды
- Длина гимениальной цистиды
- Длина гимениальной цистиды: 15–20 µm. [25]
Длина гимениальной цистиды: 10–20 µm. [8]
Длина гимениальной цистиды: 15,6–25 µm. [5] - Оптический вид гимениальной цистиды
- Оптический вид гимениальной цистиды: гиалиновый. [8]
Оптический вид гимениальной цистиды: гиалиновый. [5]
Оптический вид гимениальной цистиды: гиалиновый. [25] - Форма гимениальной цистиды
- Форма гимениальной цистиды: булавовидный. [8]
Форма гимениальной цистиды: булавовидный. [5]
Форма гимениальной цистиды: булавовидный. [25] - Толщина стенки указанной гимениальной цистиды
- Толщина стенки указанной гимениальной цистиды: тонкостенный. [8]
Толщина стенки указанной гимениальной цистиды: тонкостенный. [5]
Толщина стенки указанной гимениальной цистиды: тонкостенный. [25]
Остальные лабораторные признаки
Споры
- Среднее отношение длины споры к ширине
- Среднее отношение длины споры к ширине: 1,49 (стандартное отклонение: 0,09, среднее значение). [8] [24]
- Длина хилярного отростка базидиоспоры
- Длина хилярного отростка базидиоспоры: 1,2–1,4 µm. [5]
Длина хилярного отростка базидиоспоры: 1–1,5 µm. [8] - Форма верхушки споры
- Форма верхушки споры: закруглённый. [8]
- Цвет спор под микроскопом
- Цвет спор под микроскопом: гиалиновый. [8]
Цвет спор под микроскопом: гиалиновый. [5]
Цвет спор под микроскопом: гиалиновый. [25] - Наличие ростовой поры
- Наличие ростовой поры: присутствует. [8]
Наличие ростовой поры: присутствует. [5]
Наличие ростовой поры: присутствует. [25]
Наличие ростовой поры: присутствует (прикрыта гиалиновой крышечкой, разрыв эписпория). [8] - Длина споры
- Длина споры: 12–18 µm. [6]
Длина споры: 11,2–14,4 µm. [5]
Длина споры: 12,95 µm (неуточнённая мера разброса, указанная как ±, приведённое значение после знака ±: 0,84, среднее значение). [8]
Длина споры: 12–14 µm. [25]
Длина споры: 11–15 µm. [8] - Отношение длины споры к ширине
- Отношение длины споры к ширине: 1,33–1,65. [8]
Отношение длины споры к ширине: 1,31–1,67. [5] - Декстриноидная реакция спор
- Декстриноидная реакция спор: декстриноидная. [8]
Декстриноидная реакция спор: декстриноидная. [5]
Декстриноидная реакция спор: декстриноидная. [6] - Форма споры
- Форма споры: эллипсоидный. [8]
Форма споры: яйцевидный. [8]
Форма споры: эллипсоидный. [8]
Форма споры: эллипсоидный. [5]
Форма споры: яйцевидный. [5]
Форма споры: эллипсоидный. [6]
Форма споры: каплевидный. [6]
Форма споры: эллипсоидный. [25]
Форма споры: яйцевидный. [25] - Поверхность споры
- Поверхность споры: гладкий. [8]
Поверхность споры: гладкий. [5]
Поверхность споры: гладкий. [6]
Поверхность споры: гладкий. [25]
Материал и методы исследований
Микроскопические данные — источник и ограничения
Materiał: M. mastoidea China; 41 basidiospores from 2 basidiocarps of 2 collections. Source meanQ, not ratio of meanaxes.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
[8]- Результаты, приведённые в источниках — Длина хилярного отростка базидиоспоры
- Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 1–1,5 µm [8]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 1,2–1,4 µm [5] - Результаты, приведённые в источниках — Число спор на базидии
- Liczba zarodników na jednej podstawce wynosi 4. [8] [25] [5]
- Результаты, приведённые в источниках — Длина базидии
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 33–39,7 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 32–44 µm [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 32–44 µm [25] - Результаты, приведённые в источниках — Ширина базидии
- Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 12–14 µm [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 12–14 µm [25]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 11,6–13,8 µm [5] - Результаты, приведённые в источниках — Длина гимениальной цистиды
- Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. na ostrzu blaszki: 15–20 µm [25]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. na ostrzu blaszki: 15,6–25 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. na ostrzu blaszki: 15–20 µm (skrajnie od 10 µm) [8] - Результаты, приведённые в источниках — Ширина гимениальной цистиды
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. na ostrzu blaszki: 6,1–11,3 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. na ostrzu blaszki: 7–10 µm [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. na ostrzu blaszki: 7–10 µm [25] - Результаты, приведённые в источниках — Ширина
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. Komórki łuski kapelusza: Szerokość badanej komórki może wynosić od 8,2 do 10,9 mikrometra. [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. Komórki łuski kapelusza: Szerokość badanej komórki może wynosić od 6 do 12 mikrometrów. [8] - Результаты, приведённые в источниках — Длина споры
- Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 11,2–14,4 µm [5]
Materiał badania: Author atlas description; bibliography is not independent direct remeasurement. The atlas has an unresolved internal clamp statement conflict. 12–18 µm [6]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. Średnia długość zarodnika w badanym materiale wynosi 12,95 mikrometra (w źródle ±0,84 mikrometra; rodzaj niepewności nie został podany). [8]
Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 12–14 µm [25]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 12–14 µm (skrajnie 11–15 µm) [8] - Результаты, приведённые в источниках — Отношение длины споры к ширине
- Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 1,38–1,63 (skrajnie 1,33–1,65) [8]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 1,31–1,67 [5] - Результаты, приведённые в источниках — Ширина споры
- Materiał badania: HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material. 9–10 µm [25]
Materiał badania: Author atlas description; bibliography is not independent direct remeasurement. The atlas has an unresolved internal clamp statement conflict. 7–10 µm [6]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. 8–9,5 µm (skrajnie do 10 µm) [8]
Materiał badania: Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected. 8–10,4 µm [5]
Materiał badania: Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors. Średnia szerokość zarodnika w badanym materiale wynosi 8,69 mikrometra (w źródle ±0,6 mikrometra; rodzaj niepewności nie został podany). [8]
Metody i zapisy źródłowe — Taxon as M.mastoidea. Spore subset[41/2/2]; six examined vouchers HKAS37384,HMAS76557,HKAS11084,HKAS11207,HKAS50914,HKAS51950; subset vouchers not individually assigned by authors.
Pochodzenie materiału: China: Heilongjiang,Jilin,Sichuan.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Methods printed82: spores5–10%KOH; at least20/collection; [n/m/p]=spores/fruitbodies/collections; inner range contains>=90%; parentheses extrema; Q=L/W in side view; avQ mean±sample SD. Other structures5–10%KOH and Congo red; Melzer for amyloidy.
Wygląd optyczny podstawki — zapis źródłowy: „basidia hyaline” [8]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „apiculus1–1.5µm” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored/tetrasporic” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „(32, 44)×(12, 14)µm” [8]
Kształt podstawki — zapis źródłowy: „clavate” [8]
Organizacja cheilocystyd; Płodność ostrza blaszek — zapis źródłowy: „in bunches forming a sterile edge” [8]
Długość cystydy hymenialnej — zapis źródłowy: „(10)15–20×7–10µm” [8]
Wygląd optyczny cystydy hymenialnej — zapis źródłowy: „cheilocystidia hyaline” [8]
Kształt cystydy hymenialnej — zapis źródłowy: „cheilocystidia clavate” [8]
Grubość ściany dokładnie określonej cystydy hymenialnej — zapis źródłowy: „cheilocystidia thin-walled” [8]
Szerokość cystydy hymenialnej — zapis źródłowy: „(15, 20)×(7, 10)µm” [8]
Kształt szczytu — zapis źródłowy: „terminal cells slightly tapering to apex” [8]
Układ — zapis źródłowy: „Squamules on pileus: a palisade of hyphae” [8]
Rozgałęzienie — zapis źródłowy: „hyphae of squamules rarely branched” [8]
Barwa pigmentu — zapis źródłowy: „yellowish to brownish vacuolar pigment” [8]
Kształt — zapis źródłowy: „Squamules on pileus: a palisade of subcylindric, clampless hyphae” [8]
Grubość ściany — ocena jakościowa — zapis źródłowy: „basidia thin-walled” [8]
Grubość ściany — ocena jakościowa — zapis źródłowy: „slightly thick-walled hyphae forming squamules” [8]
Szerokość — zapis źródłowy: „hyphae forming pileal squamules; diameter(6, 12)µm” [8]
Obecność pleurocystyd — zapis źródłowy: „Pleurocystidia absent; source material scope only” [8]
Kształt szczytu zarodnika — zapis źródłowy: „germ pore caused by an interruption in the episporium on the rounded apex” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyaline” [8]
Kongofilia zarodników — zapis źródłowy: „congophilous” [8]
Obecność pory rostkowej — zapis źródłowy: „with germ pore” [8]
Obecność pory rostkowej — zapis źródłowy: „germ pore caused by an interruption in the episporium on the rounded apex; covered by a hyaline cap” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „[41/2/2] (11.0)12.0–14.0(15.0)×8.0–9.5(10.0)µm” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „x̄=12.95±0.84×8.69±0.60µm” [8]
Metachromazja zarodników — zapis źródłowy: „metachromatic in cresyl blue” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q=(1.33)1.38–1.63(1.65)” [8]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „dextrinoid; Melzer named in methods” [8]
Kształt zarodnika — zapis źródłowy: „ellipsoid to ovoid in side view; ellipsoid in front view” [8]
Kształt zarodnika — zapis źródłowy: „ellipsoid in front view” [8]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [8]
Grubość ściany zarodnika — zapis źródłowy: „thick-walled” [8]
Metody i zapisy źródłowe — Taxon as M.mastoidea. Spores[40/2/2]; basidia[28/2/2]; cheilocystidia[20/2/2]. Table1 lists SFC20150718-01,MK453227;SFC20160927-52,MK453228;SFC20171012-09,MK453229; two measured specimens not individually selected.
Pochodzenie materiału: South Korea: Gangwon-do and Jeollanam-do.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Section2.2 Nikon Eclipse80i400×/1000×; Melzer for amyloidity; other structures3%aqueousKOH,Congo red,cresyl blue. >=20spores,10basidia,10cheilocystidia/specimen. [a/b/c]=number observed/basidiocarps/collection sites; dimensions minimum–maximum.
Wygląd optyczny podstawki — zapis źródłowy: „basidia hyaline” [5]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „apiculus1.2–1.4µm” [5]
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored/tetrasporic” [5]
Obecność zawartości podstawki — zapis źródłowy: „[28/2/2] rarely containing small granules and bubble-like contents” [5]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „(33, 39.7)×(11.6, 13.8)µm” [5]
Kształt podstawki — zapis źródłowy: „clavate” [5]
Organizacja cheilocystyd; Płodność ostrza blaszek — zapis źródłowy: „in bunches forming a sterile edge” [5]
Długość cystydy hymenialnej; Szerokość cystydy hymenialnej — zapis źródłowy: „(15.6, 25)×(6.1, 11.3)µm” [5]
Wygląd optyczny cystydy hymenialnej — zapis źródłowy: „cheilocystidia hyaline” [5]
Kształt cystydy hymenialnej — zapis źródłowy: „cheilocystidia clavate” [5]
Grubość ściany dokładnie określonej cystydy hymenialnej — zapis źródłowy: „cheilocystidia thin-walled” [5]
Kształt szczytu — zapis źródłowy: „terminal cells slightly tapering to apex” [5]
Układ — zapis źródłowy: „Squamules on pileus: a palisade of hyphae” [5]
Długość — zapis źródłowy: „hyphae forming pileal squamules36.9–71.9µm long” [5]
Barwa pigmentu — zapis źródłowy: „yellowish to brownish vacuolar pigment” [5]
Grubość ściany — ocena jakościowa — zapis źródłowy: „basidia thin-walled” [5]
Grubość ściany — ocena jakościowa — zapis źródłowy: „slightly thick-walled hyphae forming squamules” [5]
Szerokość — zapis źródłowy: „hyphae forming pileal squamules; diameter(8.2, 10.9)µm” [5]
Obecność pleurocystyd — zapis źródłowy: „Pleurocystidia absent; source material scope only” [5]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyaline” [5]
Kongofilia zarodników — zapis źródłowy: „congophilous” [5]
Obecność pory rostkowej — zapis źródłowy: „with germ pore” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „[40/2/2]11.2–14.4×8.0–10.4µm” [5]
Metachromazja zarodników — zapis źródłowy: „metachromatic in cresyl blue” [5]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q=1.31–1.67” [5]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „dextrinoid; Melzer named in methods” [5]
Kształt zarodnika — zapis źródłowy: „ellipsoid to ovoid” [5]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [5]
Grubość ściany zarodnika — zapis źródłowy: „thick-walled” [5]
Metody i zapisy źródłowe — HCB18100,12May2021; description compares Ge2010 and cites it. Do not assume independent N or combine with Chinese material.
Pochodzenie materiału: Brazil: Rio Grande do Sul,São Gabriel,Morro do Sabiá.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Methods PDF2–3: macro/micromorphological identification atLATAF; specimens individually in plastic pots; dried after analysis at average40°C; microscopic medium,N and magnification not supplied.
Wygląd optyczny podstawki — zapis źródłowy: „basidia hyaline” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored/tetrasporic” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „(32, 44)×(12, 14)µm” [25]
Kształt podstawki — zapis źródłowy: „clavate” [25]
Długość cystydy hymenialnej; Szerokość cystydy hymenialnej — zapis źródłowy: „(15, 20)×(7, 10)µm” [25]
Wygląd optyczny cystydy hymenialnej — zapis źródłowy: „cheilocystidia hyaline” [25]
Kształt cystydy hymenialnej — zapis źródłowy: „cheilocystidia clavate” [25]
Grubość ściany dokładnie określonej cystydy hymenialnej — zapis źródłowy: „cheilocystidia thin-walled” [25]
Układ — zapis źródłowy: „The cortical layer of the pileus is formed by a palisade of subcylindrical hyphae” [25]
Kształt — zapis źródłowy: „subcylindrical hyphae of the cortical layer of the pileus” [25]
Grubość ściany — ocena jakościowa — zapis źródłowy: „basidia thin-walled” [25]
Obecność pleurocystyd — zapis źródłowy: „Pleurocystidia absent; source material scope only” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyaline” [25]
Obecność pory rostkowej — zapis źródłowy: „with germ pore” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „12–14×9–10µm” [25]
Kształt zarodnika — zapis źródłowy: „ellipsoid to ovoid” [25]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [25]
Grubość ściany zarodnika — zapis źródłowy: „thick-walled” [25]
Metody i zapisy źródłowe — Author atlas description; bibliography is not independent direct remeasurement. The atlas has an unresolved internal clamp statement conflict.
Pochodzenie materiału: Czech atlas; measured material locality not specified.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: No microscope,measurement medium or sample count given; Melzer explicitly named for dextrinoid reaction.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „12–18×7–10µm” [6]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „dextrinoid; Melzer named in methods” [6]
Kształt zarodnika — zapis źródłowy: „eliptické nebo kapkovité” [6]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [6]
Материал и объём исследования
Ge, Yang i Vellinga (2010): Zachowano sześć chińskich kolekcji z ich własnymi numerami, datami i zbieraczami. Próba pomiaru zarodników [41/2/2] obejmuje węższy materiał; nie przypisuje się jej wszystkim sześciu okazom. Przedziały obejmujące co najmniej 90% pomiarów, skrajności i średnie mają odrębne znaczenie statystyczne. Porównanie z M. excoriata dotyczy m.in. trzonu i częstości sprzążek, z zachowaniem wtórnych cytowań autorów.
Cho i współautorzy (2019): Materiał porównawczy obejmuje SFC20150718-01/MK453227, SFC20160927-52/MK453228 i SFC20171012-09/MK453229. Próby zarodników [40/2/2], podstawek [28/2/2] i cheilocystyd [20/2/2] pozostają oddzielne; ostatnia liczba oznacza liczbę stanowisk. Nieliczne sprzążki przy podstawkach i brak zaobserwowanych sprzążek u podstaw cheilocystyd dotyczą różnych struktur.
Česká mykologická společnost: W haśle występuje wewnętrzna rozbieżność o sprzążkach: opis podaje ich obecność co najmniej przy podstawkach, a porównanie wskazuje ich brak. Nie utworzono z tego bezwarunkowych, wymiennych stanów cechy. Zachowano także uwagi o czasem podwójnym brzegu pierścienia i czasem brązowawym ostrzu blaszek wraz z ich kwalifikatorami.
Snowarski i rejestr GRej: Zachowano osiemnaście wpisów GRej: dwanaście z żółtym identyfikatorem i sześć formalnie przyjętych, oczekujących na weryfikację. Numerów okazów nie zastępują deklaracje wysłania materiału ani sama informacja, kto go badał. Wpis 359534 podaje s.str. i BGF0009874; 350908 ma komentarz s.str., lecz pozostaje formalnie oczekujący.
de Kok i Vellinga (1998): Praca podaje osiemnaście kolekcji z siedmiu krajów. Nie dopowiedziano krajów niewymienionych w odczytanym fragmencie ani brakujących identyfikatorów okazów. Później importowane sekwencje porównawcze nie są nowymi niezależnymi zbiorami.
Heberle i współautorzy (2022): Kolekcja HCB18100 zachowuje źródłowy zapis daty 12/05/2021 oraz miejsce São Gabriel, Morro do Sabiá, Rio Grande do Sul. Nie rozstrzygnięto kolejności dnia i miesiąca przez zgadywanie. Zakres danych o łuskach i ich strzępkach pozostaje przypisany opisanej strukturze, nie całej skórce kapelusza.
Lebeuf i współautorzy (2024): W tabeli wykorzystano wcześniej opublikowane sekwencje porównawcze: Vellinga 2294 (L), AY243604 z Holandii, oraz SFC20171012-09, MK453229 z Korei Południowej. Koreański numer jest tą samą kolekcją co w pracy Cho, nie drugim nowym okazem. Nie przypisano tym importom nowej liczebności próby pomiarowej.
Species Fungorum, rekord 134693: Źródło służy sprawdzeniu relacji nomenklatorycznej. Nie jest nową analizą mikroskopową ani dowodem biologicznej odrębności wszystkich historycznych ujęć.
Wojewoda (2003): Źródło wspomina materiał KRAM z 1972 r. z okolic Lubina i Rynarcic, bez indywidualnego numeru akcesji. Nie utworzono brakującego numeru. Historyczne oceny czerwonych list NL4 i SF VU oraz brak oceny PL nie są aktualnym statusem prawnym.
Ślusarczyk (2025): Źródło wskazuje prywatne fungarium, lecz nie podaje indywidualnego numeru okazu. Zachowano to ograniczenie bez dopisywania akcesji.
Ślusarczyk (2022): Źródło wskazuje prywatne fungarium TSH bez indywidualnego numeru akcesji i bez dnia zbioru. Nie uzupełniono tych braków domysłem.
[8] [5] [6] [13] [7] [25] [26] [37] [15] [12] [11]Проверка распространения — объём и ограничения
Materiał: Historical Polish synthesis; M. rickenii and M. umbonata included; M. gracilenta cross-reference to M. mastoidea.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: No new identification or DNA verification; source occurrence does not mean whole-region occupancy or current presence. Dates of individual collections are not an ordinary season.
[15]Materiał: Przemyśl-Lipowica, woj.podkarpackie; GRej 359534, M. mastoidea s.str., curator-verified yellow ID; 20 Oct 2021.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Przemyśl-Lipowica, pow. przemyski, woj. podkarpackie; zbiór 20 paź 2021; voucher: BGF0009874.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: No new identification or DNA verification; source occurrence does not mean whole-region occupancy or current presence. Dates of individual collections are not an ordinary season.
[13]Materiał: Łagowsko-Sulęciński PK in woj.lubuskie; M. mastoidea, Nadl.Świebodzin 185 d; source observation monthIX.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Łagowsko-Sulęciński Park Krajobrazowy, województwo lubuskie; Nadleśnictwo Świebodzin, oddział 185 d; zbiór IX; study 2010–2022, exact observation year not supplied.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Existing geographic identity reused for explicitly named woj.lubuskie; GBIF is not this biological evidence. Morphological source identification; taxon not explicitly s.str.; exact year of the September collection is not given.
[12]Materiał: Park Krajobrazowy Dolina Słupi in woj.pomorskim; M. mastoidea in Dolina Starej Słupi; IX 2021, grąd, ground.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Dolina Starej Słupi, Park Krajobrazowy Dolina Słupi, województwo pomorskie; zbiór IX 2021; exact day not supplied.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Existing geographic identity reused for explicitly named woj.pomorskie; GBIF is not this biological evidence. Morphological source identification; taxon not explicitly s.str.; no individual accession number or collection day.
[11]Materiał: GRej 335549, Puszcza Bukowa, woj.zachodniopomorskie; M. mastoidea under page complex concept, curator-verified; BGF0005880.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Puszcza Bukowa (rez. Trawiasta Buczyna), 1,5 km SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; zbiór 14 paź 2018; voucher: BGF0005880.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Page covers a broad complex; no s.str. assignment for this collection. Do not conflate with nearby prominens morphotype records, or claim DNA confirmation.
[13]Materiał: GRej 335549 explicitly in Puszcza Bukowa, rezerwat Trawiasta Buczyna; 14 Oct 2018, soil, several fruit bodies.
Zakres odczytu: Fragmenty źródeł.
Powiązane kolekcje: Puszcza Bukowa (rez. Trawiasta Buczyna), 1,5 km SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; zbiór 14 paź 2018; voucher: BGF0005880.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Source mastoidea complex concept; no molecular/s.str. claim.
[13]Materiał: Wojewoda 2003 explicitly lists Warszawa and vicinity, citing Berdau 1876 and Chełchowski 1898.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Historical broad taxon concept; cited 19 th-century originals not personally read. The registered Warszawa identity is used for explicitly named city, without new geometry or claiming current occupancy.
[15]Materiał: Myko.cz Nálezy explicitly lists Středočeský kraj 9 Oct 2024 and Zlínský kraj 15 Sep 2017 for M. mastoidea.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Occurrence-list rows read; child pages unavailable; no voucher or curator grade inferred. General Výskyt seasonVII–X is preserved independently with its source-account scope; this evidence does not define the season of Poland.
[6]Materiał: Myko.cz Nálezy 0196-2024-0003 explicitly Středočeský kraj, 9 Oct 2024.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Only the atlas occurrence-list row was read; child page unavailable. One date is not a regional regular season.
[6]Общие ограничения интерпретации источника
Ograniczenia: Broad mastoidea concept includes gracilenta and rickenii; source keeps konradii separate. No dates or ordinary national season supplied for these focal materials. No broader distribution inferred from the unnamed seven-country sample.
[7]Проверка распространения — объём и ограничения
Materiał: de Kok & Vellinga 1998, p 75–76: focal Romanian material of Pázmány 1985 discussed and combined in their analysis.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: Broad mastoidea concept includes gracilenta and rickenii; source keeps konradii separate. No dates or ordinary national season supplied for these focal materials. Romanian evidence is citation-chain/Pázmány material discussed by authors; Pázmány 1985 original not personally read.
[7]Materiał: Ge et al. 2010, focal species account: descriptive distribution statement and Materials examined; six Chinese collections are retained separately in the species document.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 26.10.2026.
Ograniczenia: One source statement and its examined material, not four independent studies. Administrative scopes record named source localities; no inferred complete range, geometry or collection date.
[8]Объём проверки
Перед завершением запись нужно дополнить или проверить.
- Новые источники требуют проверки сведений, выявленных при обзоре.
Правовая основа и объём оценки
Нормы для локации: Польша
Важнейшие вещества и их действие
W serbskiej analizie biochemicznej próbki Mm-151-2015 oznaczono profil składników odżywczych metodami AOAC. Cukry analizowano techniką HPLC-RI z detekcją refraktometryczną, kwasy organiczne za pomocą UFLC-PDA przy 215 nm, a fenole przy 280 nm. Profil kwasów tłuszczowych określono metodą GC-FID po konwersji do estrów metylowych (dozowanie split 1:40 w 250 °C), a tokoferole za pomocą HPLC z detekcją fluorescencyjną (wzbudzenie 290 nm, emisja 330 nm) z tokolem jako wzorcem wewnętrznym.
[38]Analizy próbki serbskiej wykonano w trzech powtórzeniach, z których każde mierzono trzykrotnie. Dane analityczne zestawiono w przeliczeniu na suchą masę grzyba. W opisie metod jednostki tokoferoli podano w mg/100 g, natomiast w tabeli źródłowej w µg/100 g suchej masy.
[38]Składniki odżywcze i związki biologicznie czynne w suchej masie (próbka serbska):
| Składnik | Zawartość (średnia ± SD) | Jednostka |
|---|---|---|
| Tłuszcz | 3,62 ± 0,03 | g/100 g suchej masy |
| Białko | 32,36 ± 0,05 | g/100 g suchej masy |
| Popiół | 12,44 ± 0,03 | g/100 g suchej masy |
| Węglowodany ogółem | 51,58 ± 0,01 | g/100 g suchej masy |
| Wartość energetyczna | 368,37 ± 0,01 | kcal/100 g suchej masy |
| Mannitol | 4,91 ± 0,08 | g/100 g suchej masy |
| Trehaloza | 2,93 ± 0,06 | g/100 g suchej masy |
| Cukry ogółem | 7,8 ± 0,2 | g/100 g suchej masy |
| Kwas szczawiowy | 0,045 ± 0,005 | g/100 g suchej masy |
| Kwas jabłkowy | 0,32 ± 0,01 | g/100 g suchej masy |
| Kwas cytrynowy | nie wykryto | g/100 g suchej masy |
| Kwas fumarowy | śladowe ilości | g/100 g suchej masy |
| Kwasy organiczne ogółem | 0,37 ± 0,01 | g/100 g suchej masy |
| Kwas p-hydroksybenzoesowy | 0,109 ± 0,002 | mg/100 g suchej masy |
| Kwas p-kumarowy | 0,040 ± 0,002 | mg/100 g suchej masy |
| Związki fenolowe ogółem | 0,150 ± 0,001 | mg/100 g suchej masy |
| Kwas cynamonowy | 0,036 ± 0,001 | mg/100 g suchej masy |
Profil kwasów tłuszczowych w puli lipidowej:
| Kwas tłuszczowy | Udział procentowy we frakcji kwasów tłuszczowych (średnia ± SD) |
|---|---|
| C6:0 (kwas kapronowy) | 0,044 ± 0,004% |
| C8:0 (kwas kaprylowy) | 0,027 ± 0,002% |
| C10:0 (kwas kaprynowy) | 0,028 ± 0,001% |
| C12:0 (kwas laurynowy) | 0,074 ± 0,001% |
| C14:0 (kwas mirystynowy) | 0,29 ± 0,01% |
| C14:1 (kwas mirystooleinowy) | 0,008 ± 0,001% |
| C15:0 (kwas pentadekanowy) | 0,28 ± 0,01% |
| C16:0 (kwas palmitynowy) | 15,84 ± 0,05% |
| C16:1 (kwas palmitooleinowy) | 1,55 ± 0,01% |
| C17:0 (kwas margarynowy) | 0,150 ± 0,002% |
| C18:0 (kwas stearynowy) | 0,88 ± 0,01% |
| C18:1n9 (kwas oleinowy) | 11,10 ± 0,01% |
| C18:2n6 (kwas linolowy) | 66,59 ± 0,03% |
| C18:3n3 (kwas linolenowy) | 0,120 ± 0,001% |
| C20:0 (kwas arachidowy) | 0,170 ± 0,001% |
| C20:1 (kwas gadoleinowy) | 0,080 ± 0,004% |
| C20:2 (kwas eikozadienowy) | 0,094 ± 0,001% |
| C20:3n3 + C21:0 | 0,80 ± 0,04% |
| C20:5n3 (kwas eikozapentaenowy) | 0,32 ± 0,01% |
| C22:0 (kwas behenowy) | 0,67 ± 0,01% |
| C23:0 (kwas trikosanowy) | 0,055 ± 0,001% |
| C24:0 (kwas lignocerynowy) | 0,65 ± 0,01% |
| C24:1 (kwas nerwonowy) | 0,17 ± 0,01% |
| Nasycone kwasy tłuszczowe (SFA) | 19,16 ± 0,06% |
| Jednonienasycone kwasy tłuszczowe (MUFA) | 12,91 ± 0,01% |
| Wielonienasycone kwasy tłuszczowe (PUFA) | 67,92 ± 0,06% |
Aktywność przeciwutleniającą ekstraktu metanolowego oceniano in vitro za pomocą testu wychwytywania rodnika DPPH, testu bielenia β-karotenu w emulsji kwasu linolowego, testu hamowania peroksydacji lipidów TBARS oraz zdolności redukcji żelaza (tworzenia błękitu pruskiego), wyrażając wyniki wartościami EC50. Całkowitą zawartość fenoli oznaczono metodą Folina–Ciocalteu w odniesieniu do kwasu galusowego.
[38]Właściwości przeciwutleniające ekstraktu metanolowego in vitro:
| Oznaczenie | Wynik (średnia ± SD) | Jednostka |
|---|---|---|
| Zawartość związków fenolowych (Folin–Ciocalteu) | 17,35 ± 0,05 | mg GAE/g ekstraktu |
| Zdolność redukcyjna żelazicyjanku, EC50 | 2,10 ± 0,01 | mg/mL ekstraktu |
| Wychwytywanie rodników DPPH, EC50 | 5,4 ± 0,2 | mg/mL ekstraktu |
| Hamowanie bielenia β-karotenu/linolanu, EC50 | 1,85 ± 0,09 | mg/mL ekstraktu |
| Hamowanie peroksydacji lipidów (TBARS), EC50 | 0,47 ± 0,02 | mg/mL ekstraktu |
Aktywność przeciwbakteryjną i przeciwgrzybiczą ekstraktu metanolowego wyznaczano metodą mikrorozcieńczeń, określając minimalne stężenie hamujące (MIC) oraz minimalne stężenie bójcze (bakteriobójcze MBC lub grzybobójcze MFC). W badaniach na Pseudomonas aeruginosa stwierdzono ponadto obniżenie produkcji piocyjaniny w stężeniach poniżej minimalnego stężenia hamującego wzrost (MIC).
[38]Działanie przeciwbakteryjne ekstraktu metanolowego in vitro:
| Szczep bakteryjny | MIC (mg/mL) | MBC (mg/mL) |
|---|---|---|
| Bacillus cereus (izolat kliniczny) | 0,20 | 0,25 |
| Staphylococcus aureus ATCC 6538 | 0,75 | 1 |
| Staphylococcus aureus MRSA (szczep oporny) | 2 | 4 |
| Escherichia coli ATCC 35210 | 1 | 2 |
| Escherichia coli H2b (szczep oporny) | 0,75 | 1 |
| Pseudomonas aeruginosa ATCC 27853 | 2 | 4 |
| Pseudomonas aeruginosa IBRS P001 (szczep oporny) | 1 | 2 |
| Enterobacter cloacae ATCC 35030 | 1 | 2 |
Działanie przeciwgrzybicze ekstraktu metanolowego in vitro:
| Szczep grzyba | MIC (mg/mL) | MFC (mg/mL) |
|---|---|---|
| Aspergillus fumigatus ATCC 9197 | 1 | 2 |
| Aspergillus versicolor ATCC 11730 | 2 | 4 |
| Aspergillus ochraceus ATCC 12066 | 0,5 | 1 |
| Aspergillus niger ATCC 6275 | 1 | 2 |
| Trichoderma viride IAM 5061 | 0,25 | 0,5 |
| Penicillium funiculosum ATCC 10509 | 1 | 2 |
| Penicillium ochrochloron ATCC 9112 | 1 | 2 |
| Penicillium verrucosum var. cyclopium (izolat żywnościowy) | 2 | 4 |
Aktywność antyproliferacyjną ekstraktu metanolowego badano w warunkach in vitro na czterech ludzkich liniach nowotworowych oraz nienowotworowej pierwotnej hodowli komórek wątroby PLP2 w zakresie stężeń 6,25–400 µg/mL, wyznaczając stężenie hamujące wzrost komórek o 50% (GI50). Jako substancję referencyjną zastosowano eliptycynę.
[38]Wpływ ekstraktu na linie komórkowe (wartości GI50):
| Linia komórkowa | Ekstrakt M. mastoidea (GI50, µg/mL) | Eliptycyna (GI50, µg/mL) |
|---|---|---|
| MCF-7 (rak piersi) | 237 ± 14 | 0,91 ± 0,04 |
| NCI-H460 (niedrobnokomórkowy rak płuca) | 287 ± 10 | 1,03 ± 0,09 |
| HeLa (rak szyjki macicy) | 250 ± 9 | 1,91 ± 0,06 |
| HepG2 (rak wątrobowokomórkowy) | 181 ± 16 | 1,1 ± 0,2 |
| PLP2 (nienowotworowe komórki wątroby) | >400 | 3,2 ± 0,7 |
W badaniu brazylijskim z 2024 roku owocniki Macrolepiota mastoidea (kolekcja MP03) ekstrahowano 70% etanolem (v/v) przez 5 minut, a następnie macerowano w 4 °C przez 10 dni, sączono, zatężano na wyparce obrotowej i liofilizowano.
[42]Przesiew fitochemiczny ekstraktu hydroetanolowego: W testach probówkowych ekstraktu stwierdzono obecność alkaloidów (+), flawonoidów (+), terpenoidów (+), cukrów redukujących (+) oraz tanin hydrolizujących i galusowych (reakcja niebieska). Wynik negatywny (−) uzyskano w próbach na obecność glikozydów, steroidów oraz saponin.
[42]W próbie wygaszania rodnika DPPH na płytkach 96-dołkowych badano stężenia ekstraktu hydroetanolowego w zakresie 5–7000 ppm wobec roztworu DPPH o stężeniu 0,147 mMol/mL, mierząc absorbancję przy 517 nm po 60 minutach inkubacji w ciemności.
[42]Wpływ ekstraktu na aktywność acetylocholinesterazy (AChE z Electrophorus electricus, typ VI) oceniano kolorymetrycznie metodą opartą na reakcji z DTNB przy długości fali 405 nm, stosując eserynę jako inhibitor referencyjny.
[42]W teście DPPH ekstrakt hydroetanolowy MP03 wykazał wartość IC50 równą 305,16 ± 0,74 µg/mL. W teście enzymatycznym zaobserwowano hamowanie aktywności acetylocholinesterazy na poziomie 72,1 ± 0,49%.
[42]Экологические исследования
Объём полевых данных
Ge, Yang i Vellinga (2010): Źródło podaje Chiny oraz materiał z Heilongjiang, Jilin i Syczuanu. Daty sześciu zbiorów są pojedynczymi zdarzeniami, nie zwykłym sezonem. Wysokości 220, 400 i 740 m dotyczą opisanych stanowisk, nie granic wysokościowych gatunku. Lasy mieszane nie są wskazaniem konkretnego partnera mikoryzowego.
Cho i współautorzy (2019): Wymieniono materiał z Korei Południowej: Pyeongchang-gun, Hongcheon-gun i Wando-gun. Ciągi cyfr w numerach kolekcji pozostają numerami; bez odrębnego potwierdzenia nie są datami zbioru ani sezonem. Opis obejmuje ziemię, otwarte łąki i skraj lasu; nie wskazuje konkretnego gospodarza.
Česká mykologická společnost: Podane znalezienia z Czech są odrębnymi zdarzeniami. Ogólnego zakresu VII–X nie przypisano Polsce ani krajowi wywnioskowanemu z języka strony. Wzmianka o większej obfitości na suchszych stanowiskach z wapiennym podłożem nie określa pH każdego podłoża. Zalecenie oszczędzania rzadkich owocników nie jest przepisem prawa.
Snowarski i rejestr GRej: Daty, miejsca, siedliska i rośliny z poszczególnych zgłoszeń pozostają kontekstem tych zdarzeń. Jasne miejsca nie są automatycznie stanowiskami nasłonecznionymi, a roślinność zielna nie oznacza sama w sobie łąki. Ochrona obszaru Biedrusko nie jest ochroną gatunkową tego grzyba. Numery fotografii i autorstwo nie ustanawiają licencji do ponownego wykorzystania.
de Kok i Vellinga (1998): Materiały z Holandii, Austrii i Belgii zachowują zakres tej publikacji. Wzmianka o Rumunii ma wtórną ścieżkę do Pázmányego (1985); oryginał tego wcześniejszego źródła nie został odczytany. Materiałów nie przekształcono w krajowe okresy regularnego owocowania.
Heberle i współautorzy (2022): Brazylijska kolekcja jest dokumentacją konkretnego materiału. Jej daty i lokalizacji nie użyto jako polskiego sezonu ani dowodu występowania we wszystkich regionach Brazylii.
Lebeuf i współautorzy (2024): Lokalizacje importowanych materiałów są ich proweniencją. Nie stanowią niezależnych nowych obserwacji krajowych ani podstawy do określenia zwykłego sezonu.
Wojewoda (2003): Zwykły polski okres IX–X pochodzi z pełnego wpisu, nie z dat okazów. Picea abies, Pinus sylvestris i Abies alba opisują roślinność otoczenia. Określenie czasem na glebie wapiennej pozostaje kwalifikowanym stwierdzeniem, nie wyłączną preferencją ani pomiarem pH.
Ślusarczyk (2025): Dane dotyczą Łagowsko-Sulęcińskiego Parku Krajobrazowego w województwie lubuskim, Nadleśnictwa Świebodzin, oddziału 185 d: bór mieszany i ziemia. IX oznacza miesiąc znalezienia; dokładnego roku nie podano. Status parku opisuje miejsce, nie ochronę gatunkową ani zwykły regionalny sezon.
Ślusarczyk (2022): Stanowisko pochodzi z Doliny Starej Słupi w województwie pomorskim: IX 2021, grąd, ziemia. To pojedyncze zdarzenie, nie zakres sezonu regionalnego. Nie stwierdzono tu jawnego oznaczenia s.str. ani potwierdzenia molekularnego.
[8] [5] [6] [13] [7] [25] [26] [15] [12] [11]Экологические сведения из источников
Условия и сравнения приведены в общем контексте с дословной формулировкой источника.
Źródła: [13]
| Вид сведений | Смысл | Контекст источника | Дословная формулировка | Место в источнике | Границы интерпретации |
|---|---|---|---|---|---|
| Освещённость местообитания | В светлых местах, указанных в этом описании местообитания. | Macrolepiota mastoidea sensu Snowarski/Gierczyk | Rzadka. Owocniki wyrastają pojedynczo i gromadnie w świetlistych miejscach w lasach liściastych, parkach, zaroślach i wśród roślinności zielnej. | Występowanie, HTML line 500 | В пределах контекста источника, без определения общего предпочтения или диагностических баллов. |
| Растительность | Среди травянистой растительности в том же описании местообитания. | Macrolepiota mastoidea sensu Snowarski/Gierczyk | Rzadka. Owocniki wyrastają pojedynczo i gromadnie w świetlistych miejscach w lasach liściastych, parkach, zaroślach i wśród roślinności zielnej. | Występowanie, HTML line 500 | В пределах контекста источника, без определения общего предпочтения или диагностических баллов. |
- Освещённость не означает прямого солнечного света. Травянистая растительность не определяет таксон или хозяина.
- Более сухое место и известковый каменистый субстрат вместе составляют условие сравнения, без вывода о pH.
Экологические сведения из источников
Условия и сравнения приведены в общем контексте с дословной формулировкой источника.
Źródła: [6]
| Вид сведений | Смысл | Контекст источника | Дословная формулировка | Место в источнике | Границы интерпретации |
|---|---|---|---|---|---|
| Сравнение обилия | Обильнее встречается в более сухих местах на известковом каменистом субстрате. | Macrolepiota mastoidea — ČMS | Hojnější je na sušších lokalitách s vápencovým podložím. | Výskyt, HTML source line 50 | В пределах контекста источника, без определения общего предпочтения или диагностических баллов. |
- Освещённость не означает прямого солнечного света. Травянистая растительность не определяет таксон или хозяина.
- Более сухое место и известковый каменистый субстрат вместе составляют условие сравнения, без вывода о pH.
Местообитание и встречаемость
W Chinach czubajka sutkowata rośnie jako saprotrof naziemny samotnie lub w rozproszeniu na otwartych łąkach oraz w lasach mieszanych, na obszarze od północnego wschodu po południowy zachód kraju. Kolekcje zielnikowe zbierano od końca lipca do końca września m.in. w prowincjach Heilongjiang, Jilin i Syczuan, na wysokościach 220, 400 oraz 740 m n.p.m.
[40]W Ameryce Południowej obecność gatunku stwierdzono m.in. w brazylijskim biomie Pampa, na wzgórzu Morro do Sabiá w stanie Rio Grande do Sul (30°21′20″S, 54°17′42″W, 124 m n.p.m.), na glebie typu Planossolo Hidromórfico Eutrófico Arênico, w sąsiedztwie pól i terenów podmokłych dorzecza rzeki Vacacaí. Pojedynczy owocnik (HCB18100) zebrano tam w maju 2021 roku.
[41]W badaniach laboratoryjnych prowadzonych w Serbii owocniki zebrano jesienią 2015 roku w Babušnicy koło Pirotu, w południowej części kraju (próbka Mm-151-2015).
[38]Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Источники |
|---|---|---|---|
| Австрия | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Бельгия | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Китай | Хэйлунцзян; Цзилинь; Сычуань | Nie ustalono |
|
| Чехия | Среднечешский край | Nie ustalono |
|
| Нидерланды | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Польша | Подкарпатское воеводство; Lubuskie / Lubusz (территория в метаданных GBIF); Pomeranian (территория в метаданных GBIF); Западно-Поморское воеводство; Буковая пуща; Варшава | IX–X |
|
| Румыния | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
Материалы
Гербарные коллекции
- HCB18100
Бразилия; SãoGabriel,MorrodoSabiá,RioGrandedoSul; 12/05/2021; M.A.Heberle
[4]- SFC20150718-01
Южная Корея; Woljeongsa temple,Pyeongchang-gun,Gangwon-do
[4]- SFC20160927-52
Южная Корея; NatureEnvironmentResearchPark,Hongcheon-gun,Gangwon-do
[4]- SFC20171012-09
Южная Корея; DadohaehaesangMarine&CoastalNationalParks,Wando-gun,Jeollanam-do
[4]- E.C.Vellinga2294(L)
Нидерланды; N.J.Dam
[4]- Bas7381
Австрия
[4]- Boekhout1026
Бельгия
[4]- Сбор
Польша; Tycówka, przysiółek Ciśca w Gminie Węgierska Górka pow. Żywiec woj. śląskie; 2009-10-01; Ryszard Taran
[14]- BGF/BF/BK/121018/0001
Польша; ok. 1,6 km na NE od Radojewa, pow. Poznań, woj. wielkopolskie [N 52°30'29,31" E 16°58'05,66"], BC99; 2012-10-18; Barbara Kudławiec
[14]- BGF/BF/JN/131010/0007
Польша; 800 m N od wsi Stobiecko Szlacheckie, gm.Ładzice, pow. radomszczański, woj. łódzkie [51st 6' 36,8" N i 19st 23' 45,95" E], DE45; 2013-10-10; Jacek Nowicki
[14]- BGF0005142
Польша; Złoty Potok, pow. częstochowski, woj. śląskie, DE95; 2016-10-22; Krzysztof Kołodziejczyk
[14]- Сбор
Польша; Puszcza Bukowa (rez. Osetno), 1,6 km na NE od Dobropola Gryfińskiego, pow. gryfiński, woj. zachodniopomorskie, AB94; 2019-10-02; Grazyna Domian
[14]- Сбор
Польша; Puszcza Bukowa (Dolina Ponikwy), 2,5 km na NW od Binowa, pow. gryfiński, woj. zachodniopomorskie, AB93; 2019-10-09; Grazyna Domian
[14]- BGF0005880
Польша; Puszcza Bukowa (rez. Trawiasta Buczyna), 1,5 km SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; 2018-10-14; Grazyna Domian
[14]- BGF0016932
Польша; prop. rez. Płoty w gm. Płoty, 1,2 km na NW od miejscowości Kocierz, pow. gryficki, woj. zachodniopomorskie, AB38; 2020-10-08; Grazyna Domian
[14]- BGF0008104
Польша; 0,7 km NW od wsi Fryszerka; gm. Gomunice, pow. radomszczański, woj. łódzkie [GPS: 51st 8' 44,8" N i 19st 29' 59,5" E], DE46; 2016-09-22; Jacek Nowicki
[14]- BGF0016751
Польша; Równina Wełtyńska (prop. rez. Mszar Gajki), 0,8 km na NE od osady leśnej Gajki, pow. gryfiński, woj. zachodniopomorskie, AC03; 2021-10-06; Grazyna Domian
[14]- BGF0009874
Польша; Przemyśl-Lipowica, pow. przemyski, woj. podkarpackie; 2021-10-20; piotr pytel
[14]- Сбор
Польша; 1,5 km NE od wsi Wąglin; gm. Gomunice, pow. radomszczański, woj. łódzkie [GPS: 51,1528 19,5807], DE47; 2022-10-01; Jacek Nowicki
[14]- BGF0017142
Польша; Równina Gorzowska (prop. rez. Lilie Wodne w Barlineckim PK), 3,3 km SE od Moczydła, pow. myśliborski, woj. zachodniopomorskie, AC48; 2022-10-26; Grazyna Domian
[14]- BGF0017139
Польша; Równina Pyrzycka (Barlinecki PK, prop. rez. Wilcze Jary), 0,4 km E od nowego Cmentarza Komunalnego w Barlinku (pomiędzy ul. Szosową i Fabryczną), pow. myśliborski, woj. zachodniopomorskie, AC37; 2022-09-30; Grazyna Domian
[14]- Сбор
Польша; 1 km E od wsi Wąglin; gm. Gomunice, pow. radomszczański, woj. łódzkie [GPS: 51,1431 19,5856], DE47; 2022-11-13; Jacek Nowicki
[14]- BGF0010337
Польша; 2km na zach od Wapowiec, pow. przemyski, woj. podkarpackie; 2022-09-27; piotr pytel
[14]- BGF0017124
Польша; Wzgórza Bukowe (rez. Trawiasta Buczyna), 2 km na SE od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; 2023-10-17; Grazyna Domian
[14]- BGF0017122
Польша; Wzgórza Bukowe (rez. Źródliskowa Buczyna), 1,2 km NW od Glinnej, pow. gryfiński, woj. zachodniopomorskie, AB94; 2023-11-10; Grazyna Domian
[14]- Сбор
Польша; Łagowsko-Sulęciński Park Krajobrazowy, województwo lubuskie; Nadleśnictwo Świebodzin, oddział185d; IX; study2010–2022, exact observation year not supplied; Tomasz Ślusarczyk
[14]- Сбор
Польша; Dolina Starej Słupi, Park Krajobrazowy Dolina Słupi, województwo pomorskie; IX2021; exact day not supplied; Tomasz Ślusarczyk
[14]- HKAS37384
Китай; Heilongjiang Province: Yichun City, Beishan; 2000-08-08; M. S. Yuan4646; 400 м над уровнем моря
[14]- HMAS76557
Китай; Heilongjiang Province: Huma County; 2000-07-29; X.L. Mao, H.A. Wen and S.X. Sun120
[14]- HKAS11084
Китай; Jilin Province: Antu County, Baima town; 2004-08-17; L.F. Zhang605; 740 м над уровнем моря
[14]- HKAS11207
Китай; Jilin Province: Antu County, Jinyuetan Park; 2004-09-29; L.F. Zhang628; 220 м над уровнем моря
[14]- HKAS50914
Китай; Jilin Province: Dunhua City, Huangnihe; 2006-09-05; X.H. Wang2016
[14]- HKAS51950
Китай; Sichuan Province: Chengdu City; 2006-09-30; Z.W. Ge938
[14]
Источники
- nr44.anatomy.collections.v2
- Cho et al. 2019. Mycobiology47(4): 368–377; DOI 10.1080/12298093.2019.1663122
- Karel Tejkal, Česká mykologická společnost: Macrolepiota mastoidea (także [39])
- de Kok & Vellinga 1998. Persoonia17(1): 69–79
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota (Agaricaceae, Basidiomycota) in China. Fungal Diversity45:81–98. DOI 10.1007/s13225-010-0062-0.
- Grzyby polskich lasów. Lasy Państwowe; printed112–113/PDF110–111.
- Ślusarczyk T. 2022. Materiały do znajomości mykobioty Parku Krajobrazowego Dolina Słupi. Przegląd Przyrodniczy33(3): 3–29.
- Ślusarczyk T. 2025. Materiały do poznania bioty grzybów Łagowsko-Sulęcińskiego Parku Krajobrazowego. Przegląd Przyrodniczy36(2): 27–69.
- Snowarski M., Gierczyk B. Atlas grzybów Polski / GRej: Macrolepiota mastoidea; public page generated 2026-09-01; taxon comment 2025-12-30.
- nr44.ecology.source-results.20261026
- Wojewoda W. 2003. Checklist of Polish larger Basidiomycetes. Biodiversity of Poland 7; focal entry printed423/PDF425.
- nr44.ge 2010.qmean.v2
- Heberle et al. 2022. RSD11(10):e596111033143; DOI 10.33448/rsd-v11i10.33143 (także [41])
- Lebeuf, Russell & Justo 2024. Fungal Syst Evol14:139–152; DOI 10.3114/fuse.2024.14.09
- Rozporządzenie Ministra Środowiska z dnia 9 października 2014 r. w sprawie ochrony gatunkowej grzybów
- ELIaktualnośćochrony 2014/1408
- Własnypełnyprzeglądaktówirejestrówprawnychrekordu44
- ELIaktualnośćaktupodstawowego 2011/672
- Obwieszczenie Ministra Zdrowia z dnia 13 lutego 2026 r. w sprawie ogłoszenia jednolitego tekstu rozporządzenia Ministra Zdrowia w sprawie grzybów dopuszczonych do obrotu lub produkcji przetworów grzybowych, środków spożywczych zawierających grzyby oraz uprawnień klasyfikatora grzybów i grzyboznawcy
- ELIaktualnośćtekstu 2026/258
- ZweryfikowaneźródłowowynikiprawnePLrekord44
- GBIF Backbone Taxonomy:exact accepted match2536707, Macrolepiota mastoidea;familyAgaricaceae
- PTMyk, KPNG, Rekomendacja5/2025,9June 2025
- PTMyk, Rekomendacja5,9.06.2025
- Species Fungorum, name134693, current name for M.rickenii
- Ćirić A., Kruljević I., Stojković D., Fernandes Â., Barros L., Calhelha R.C., Ferreira I.C.F.R., Soković M., Glamočlija J. 2019. Comparative investigation on edible mushrooms Macrolepiota mastoidea, M.rhacodes and M.procera:functional foods with diverse biological activities. Food&Function10:7678–7686. DOI 10.1039/c9fo01900f
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota (Agaricaceae, Basidiomycota) in China. Fungal Diversity45:81–98. DOI 10.1007/s13225-010-0062-0
- Silva H.V.da, Freitas M.A.M.de, Machado T.H.L., Menezes Filho A.C.P.de, Ventura M.V.A., Rocha E.N.da 2024. First report, phytochemical screening, and antioxidant and acetylcholinesterase inhibition activities of Macrolepiota mastoidea(Fr.)Singer mushroom extract in the Southwest region of Brazil. Brazilian Journal of Science3(12): 50–57. DOI 10.14295/bjs.v3i12.706
- Marek Snowarski i Błażej Gierczyk, atlas/GRej: Macrolepiota mastoidea