
Jedlý

Nastavte polohu, abyste viděli údaje pro svůj region.
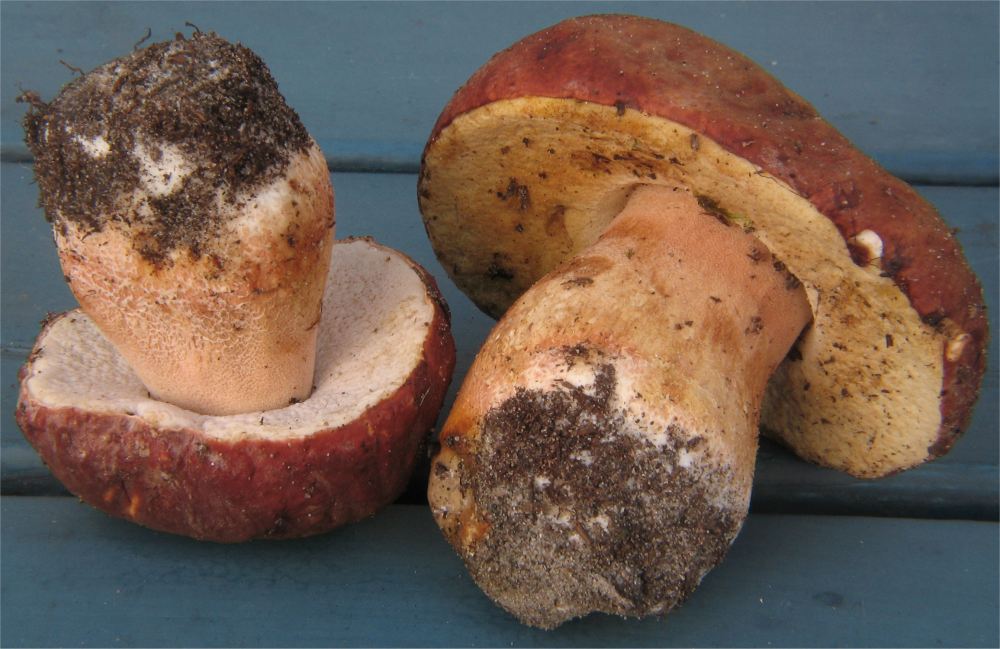
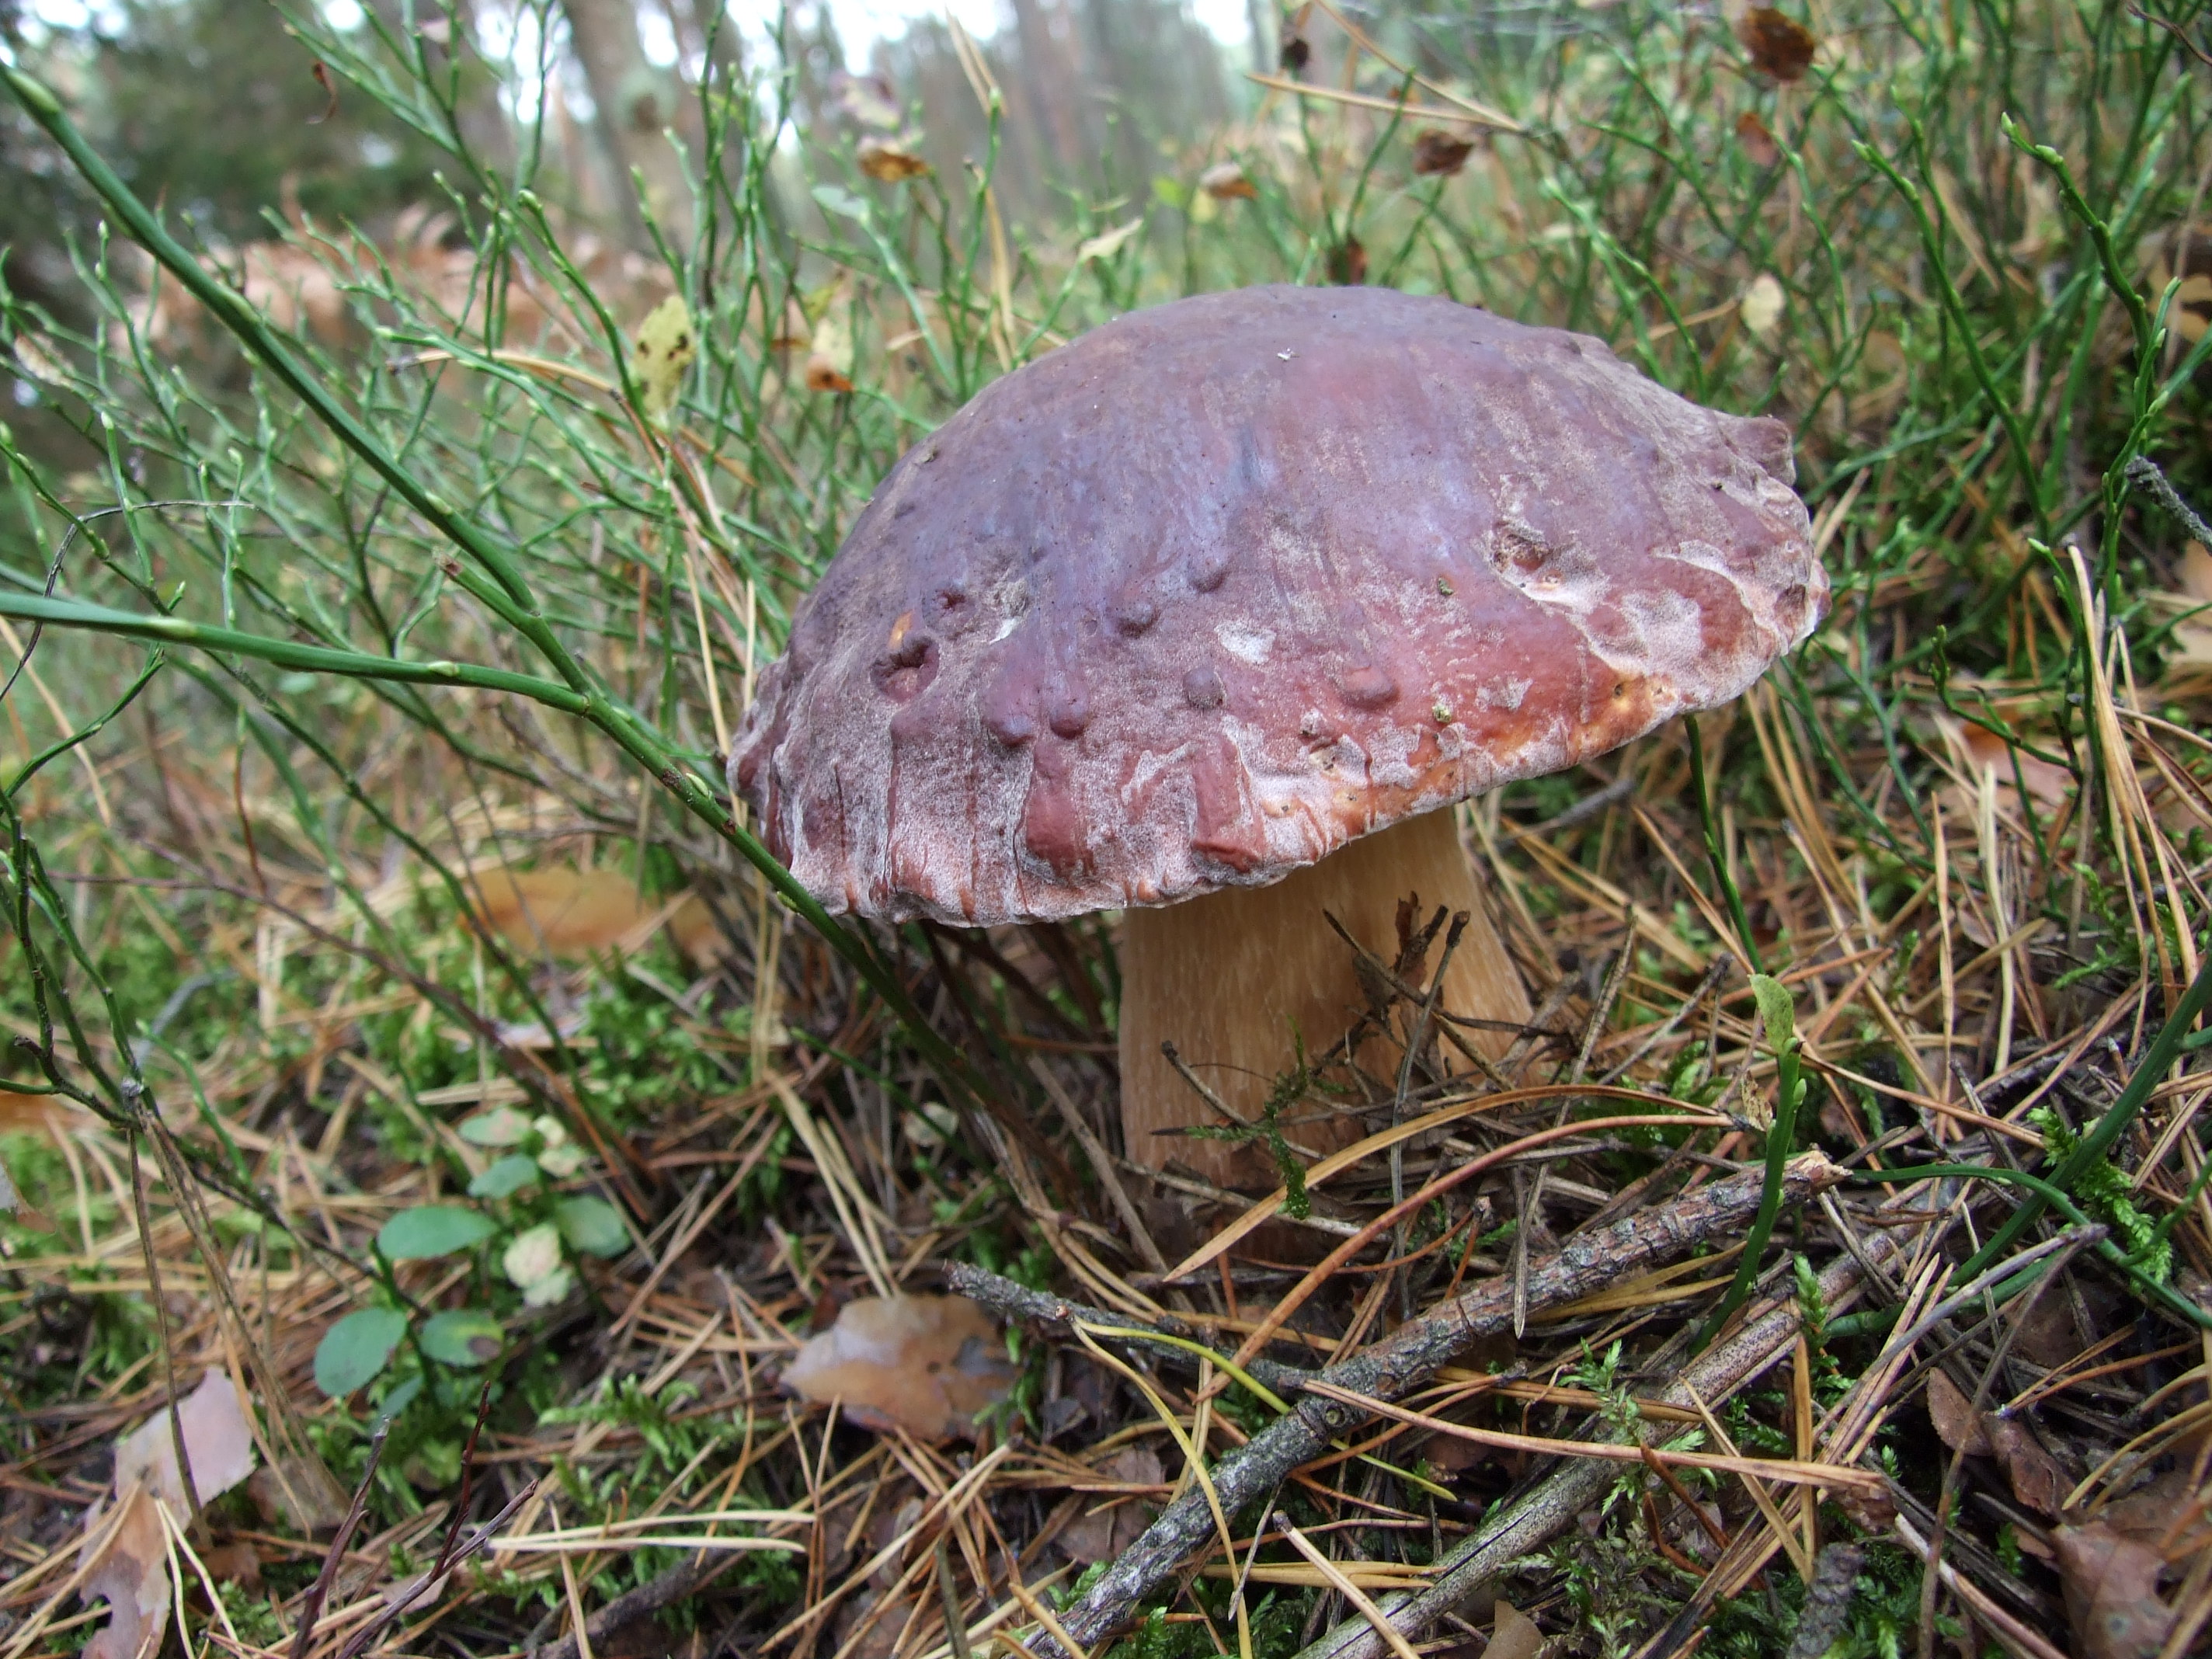
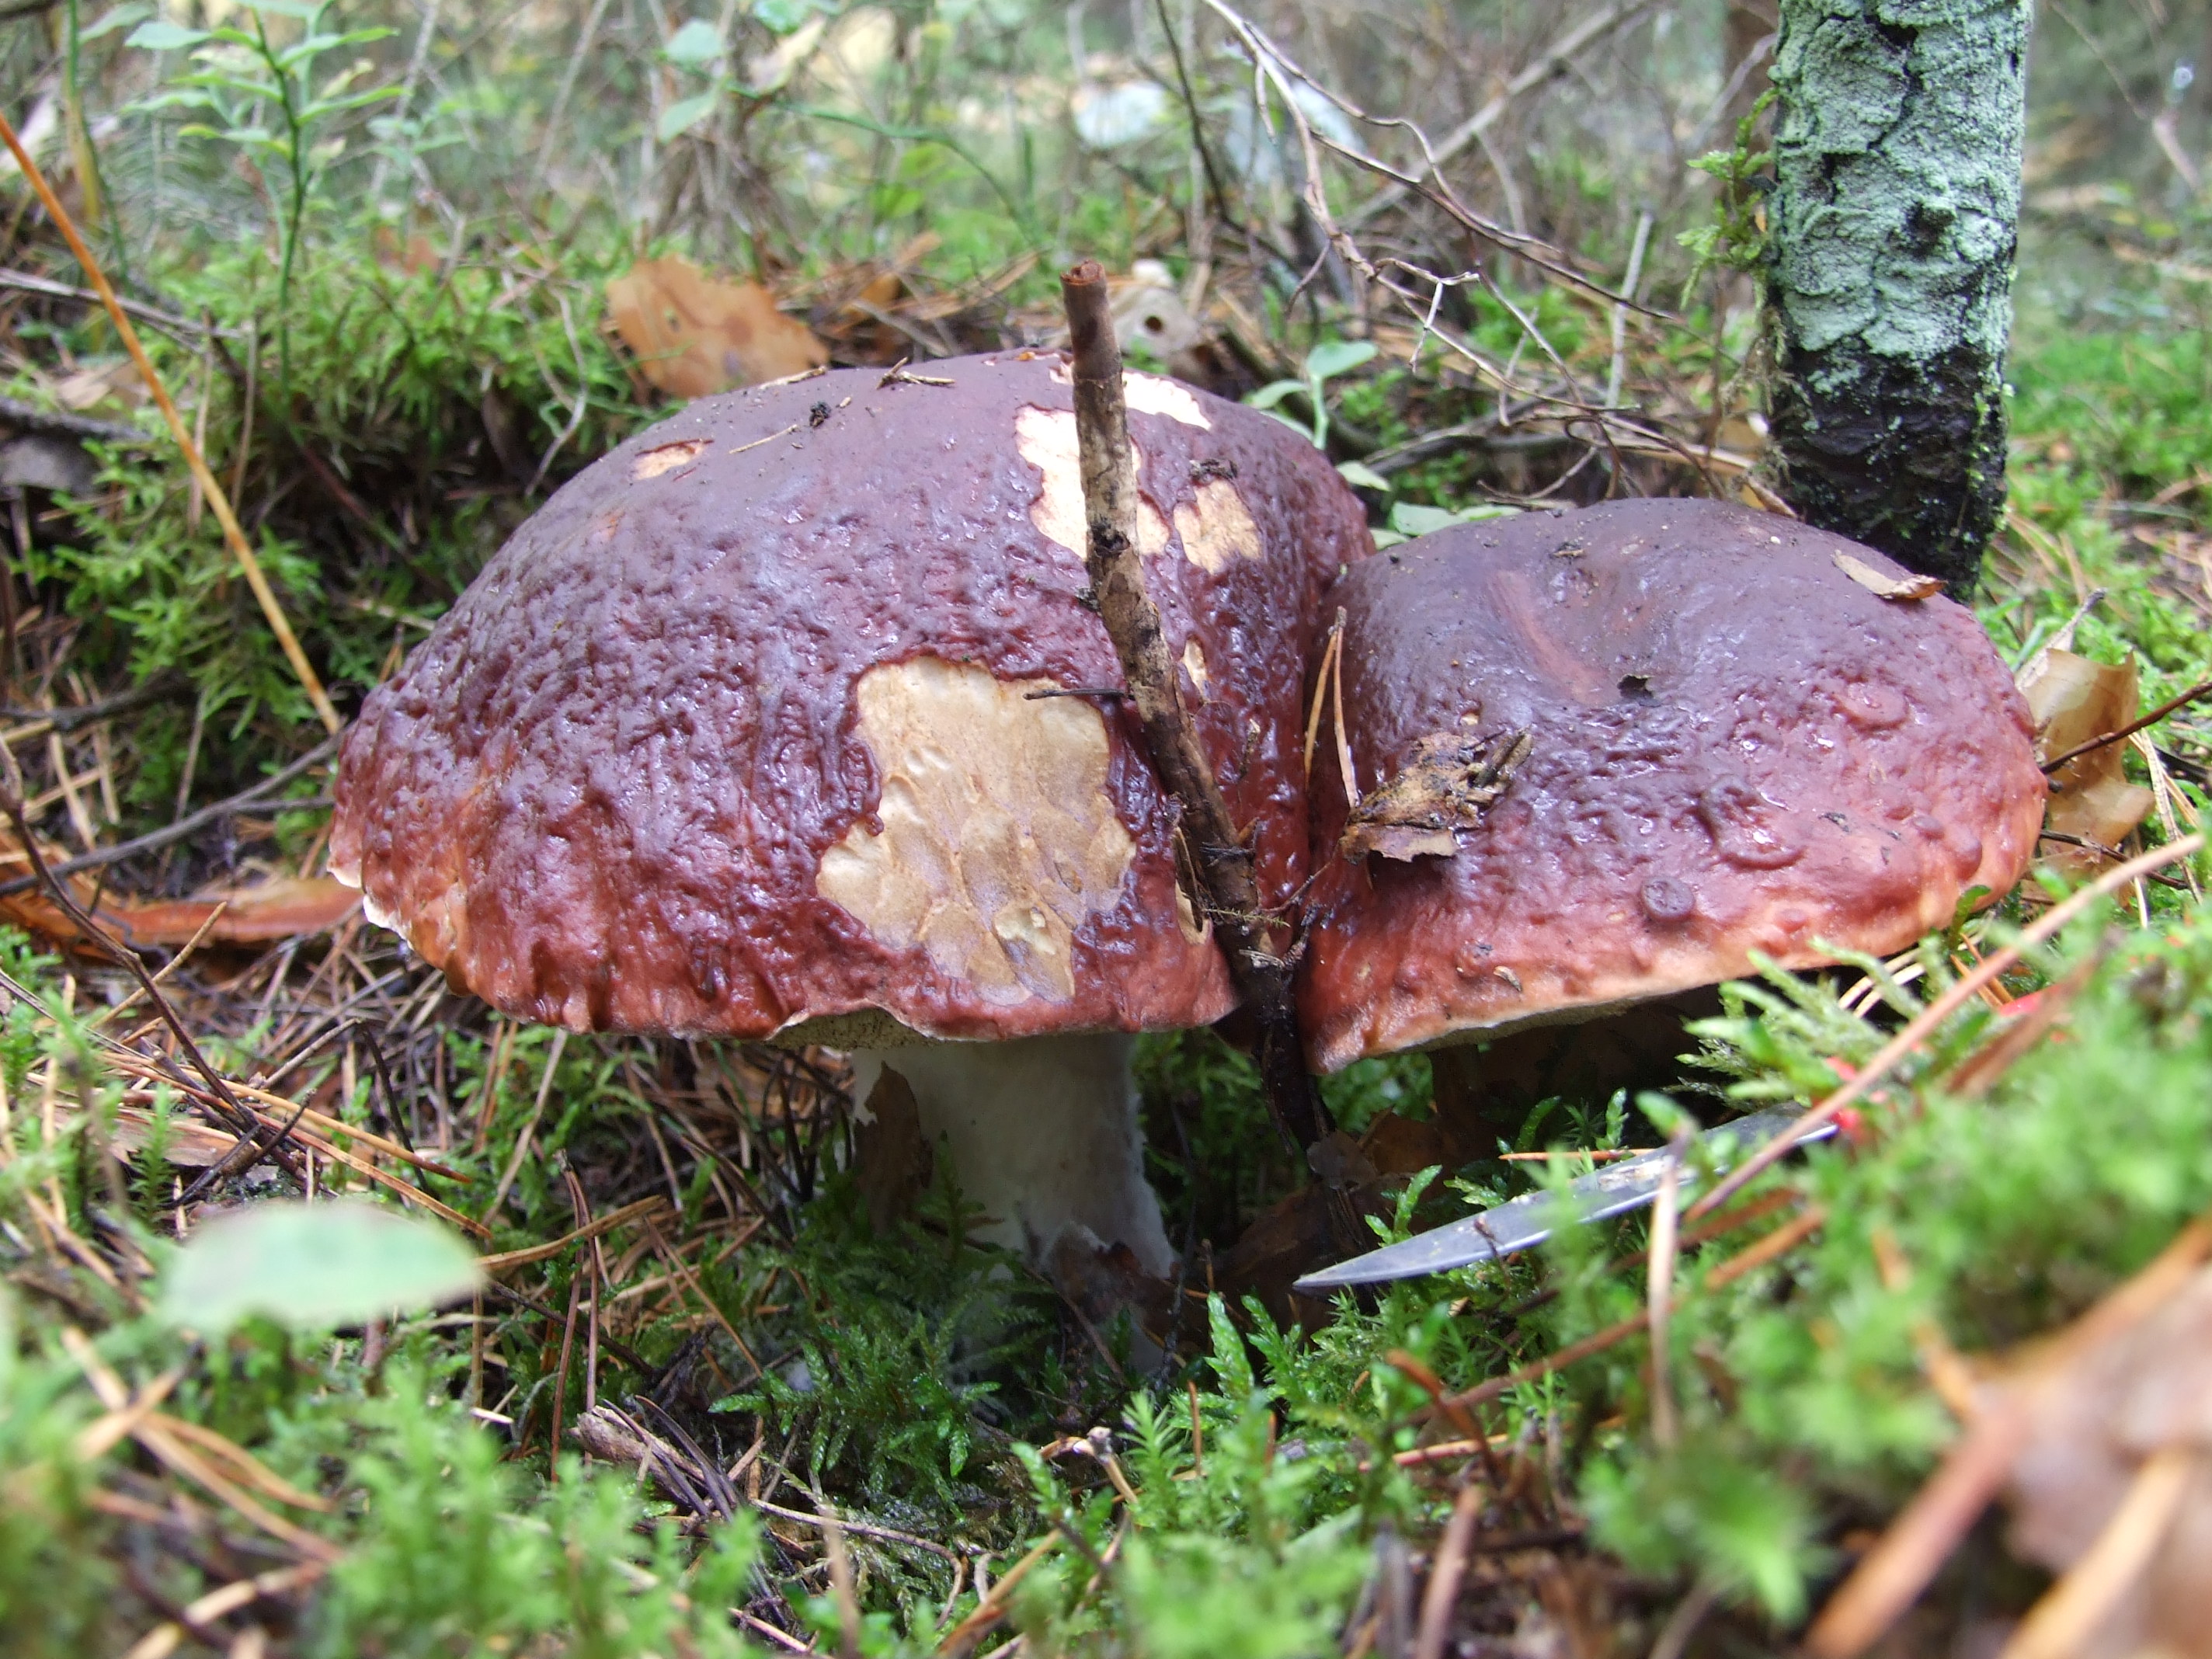
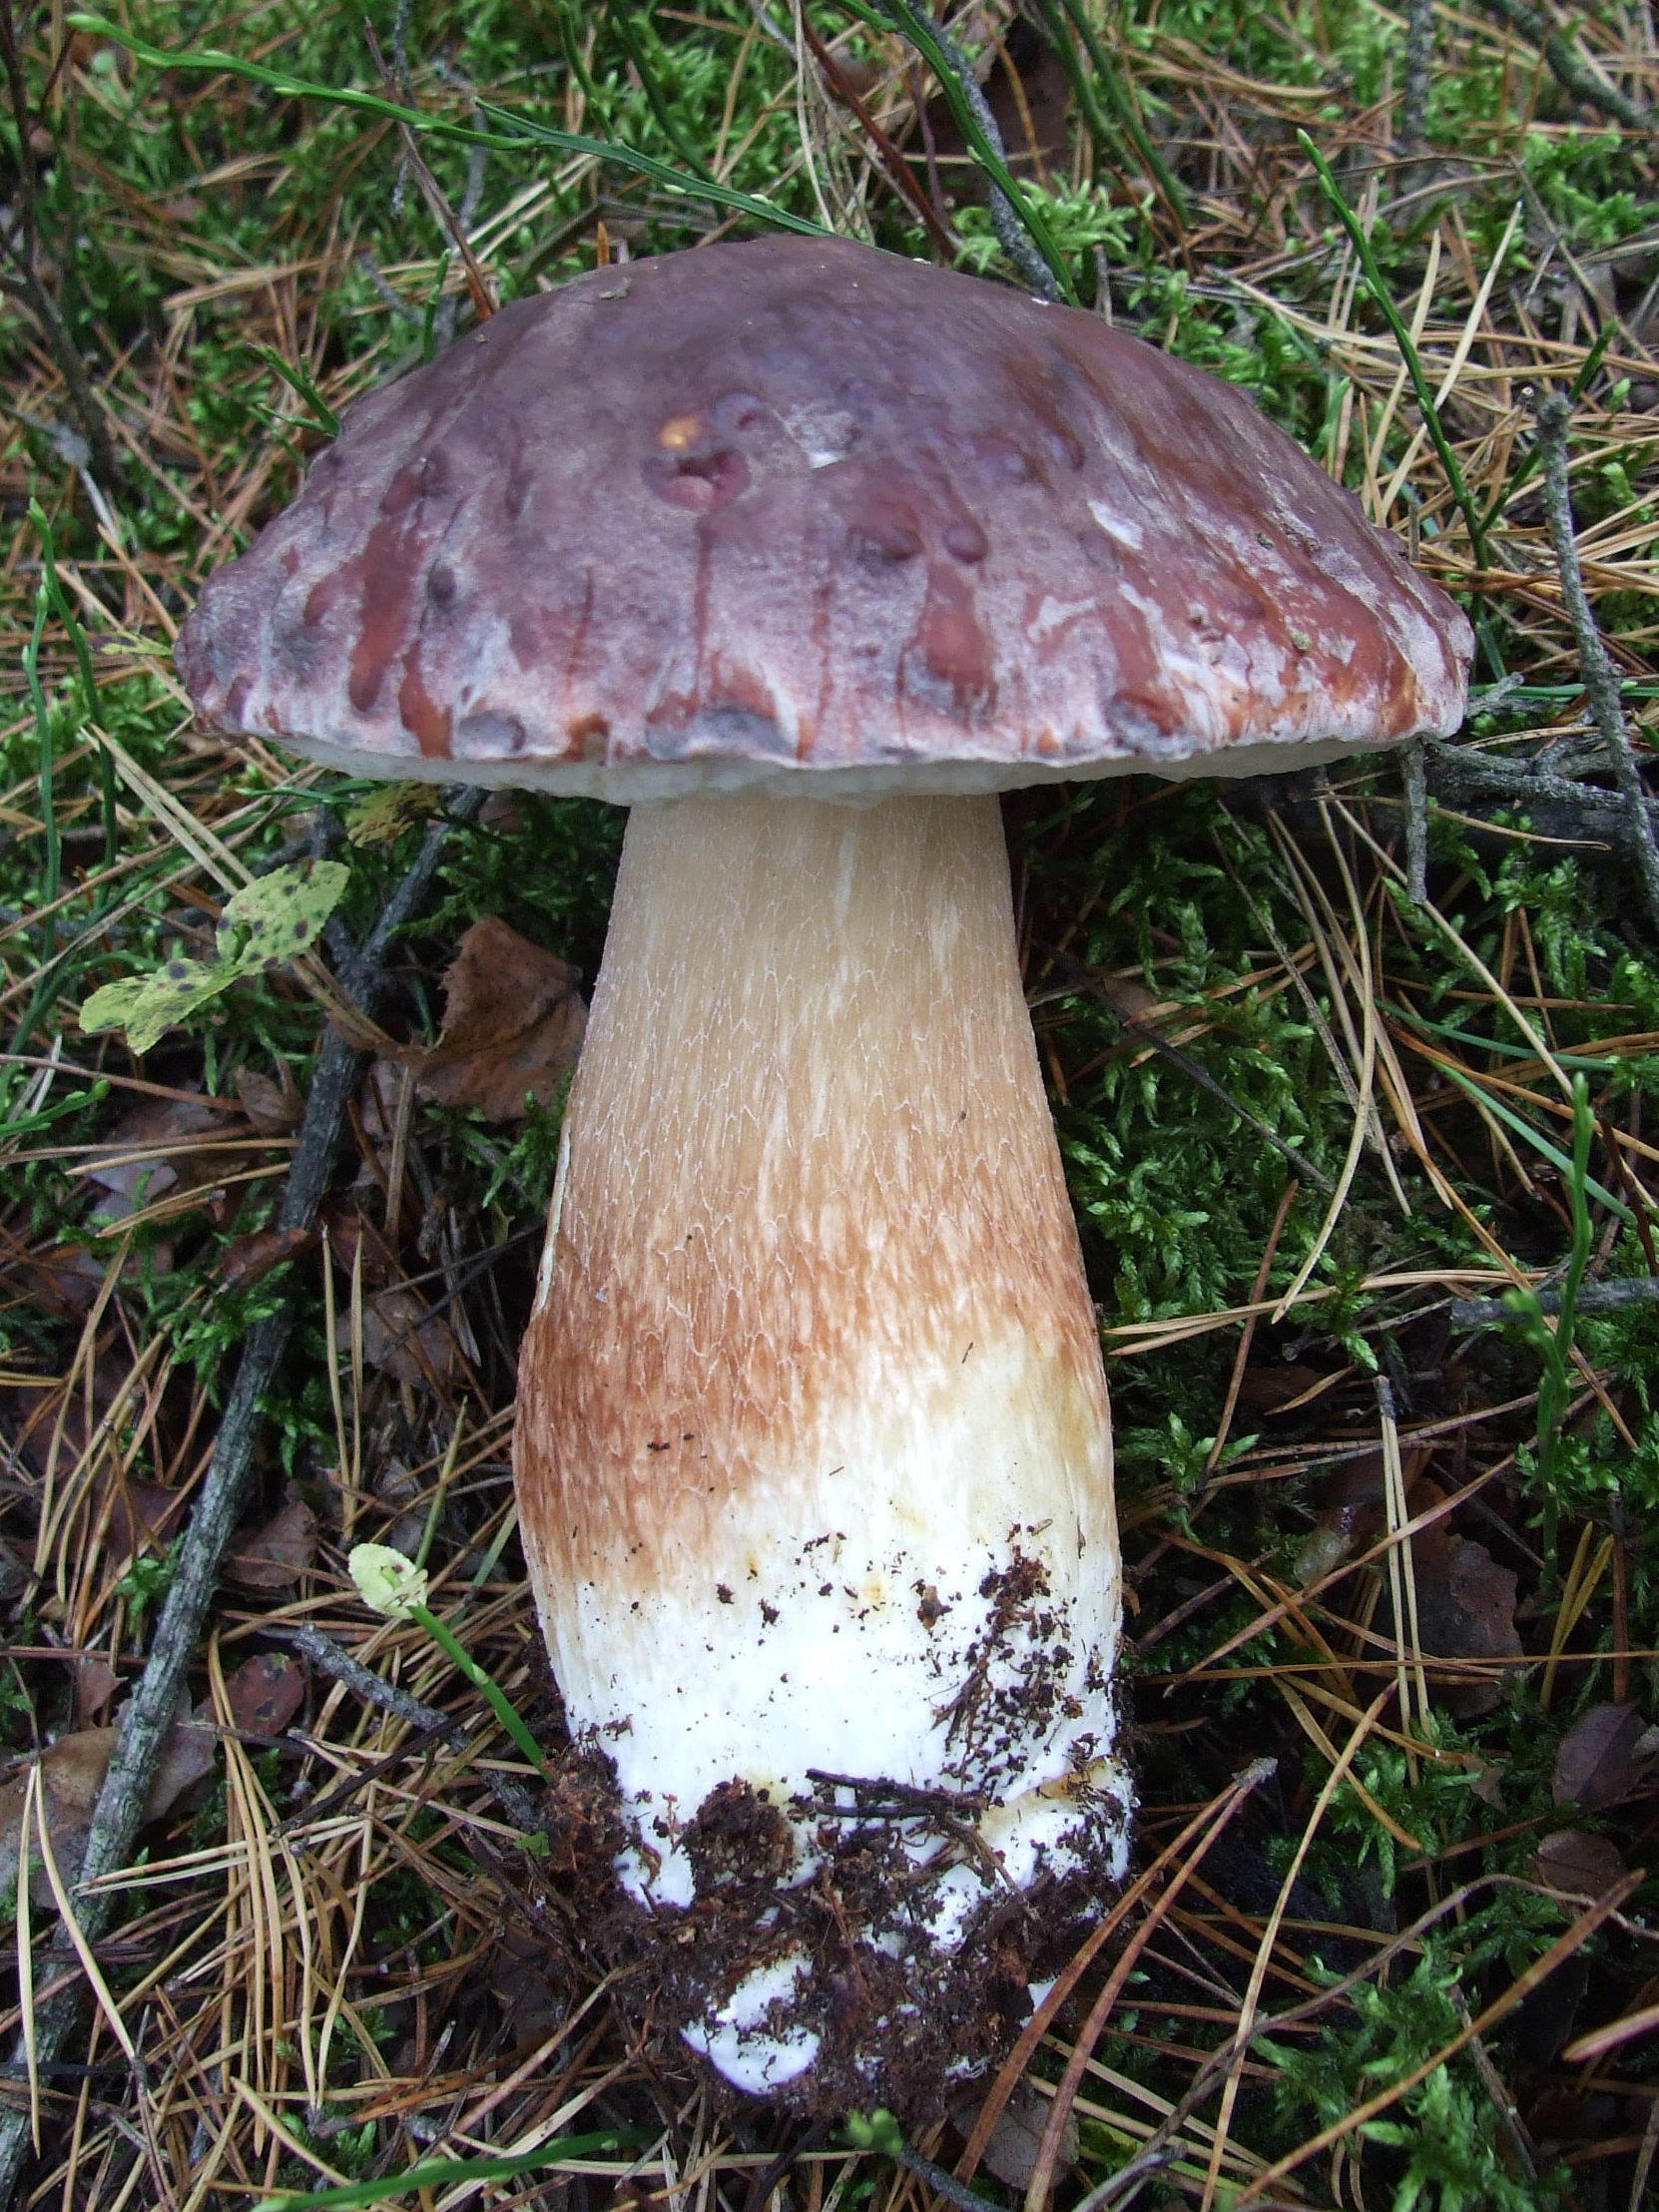
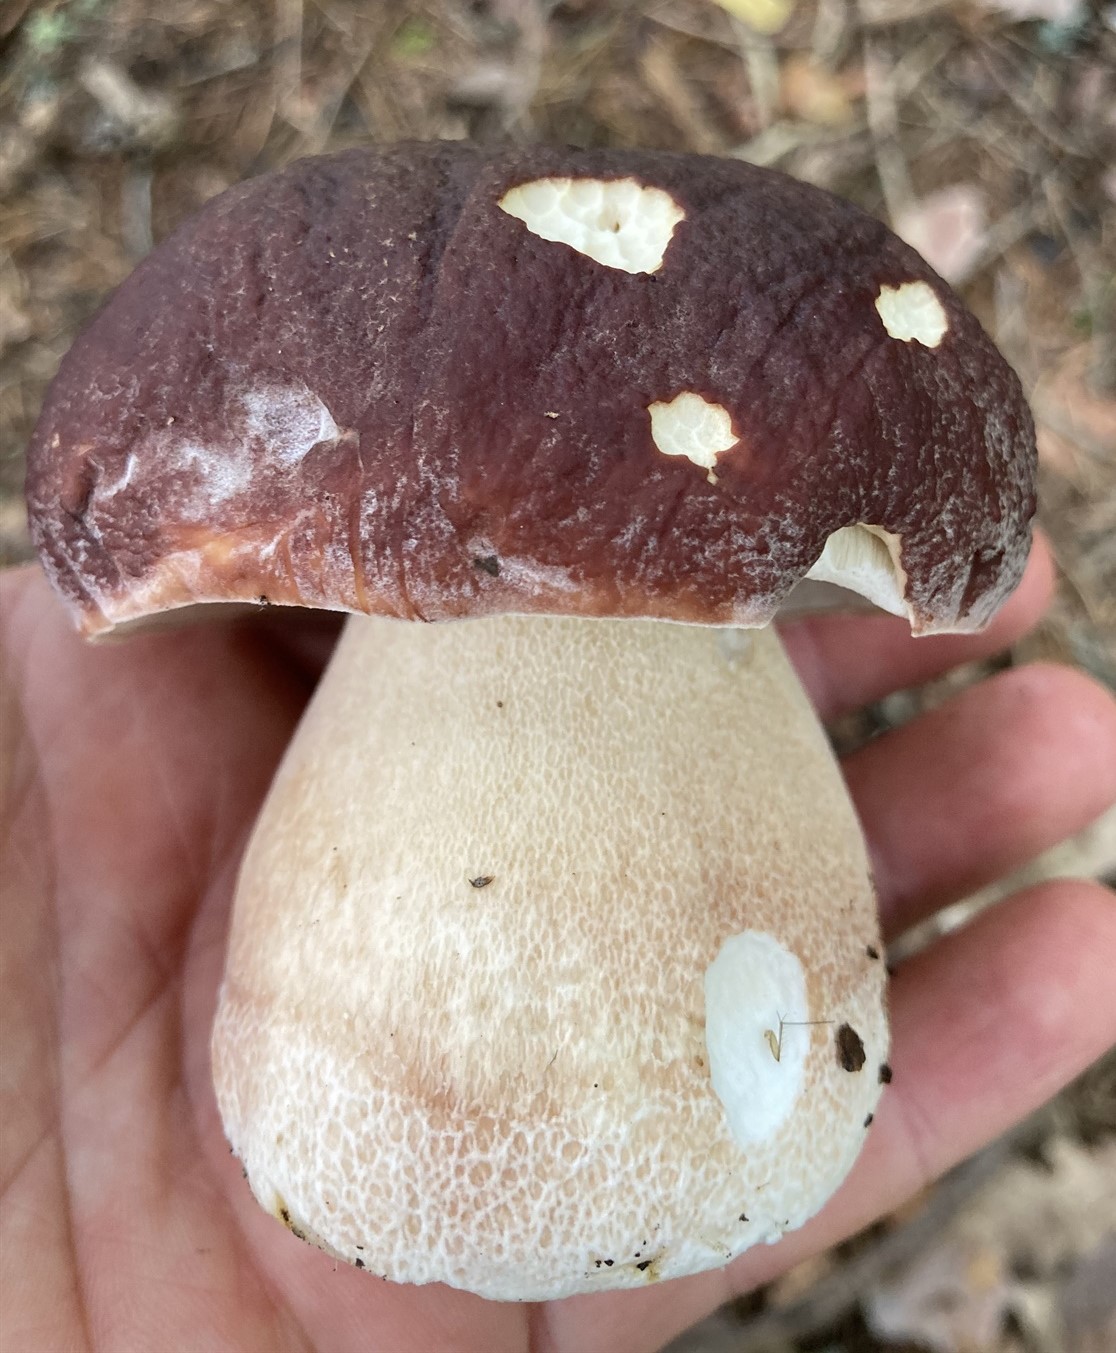
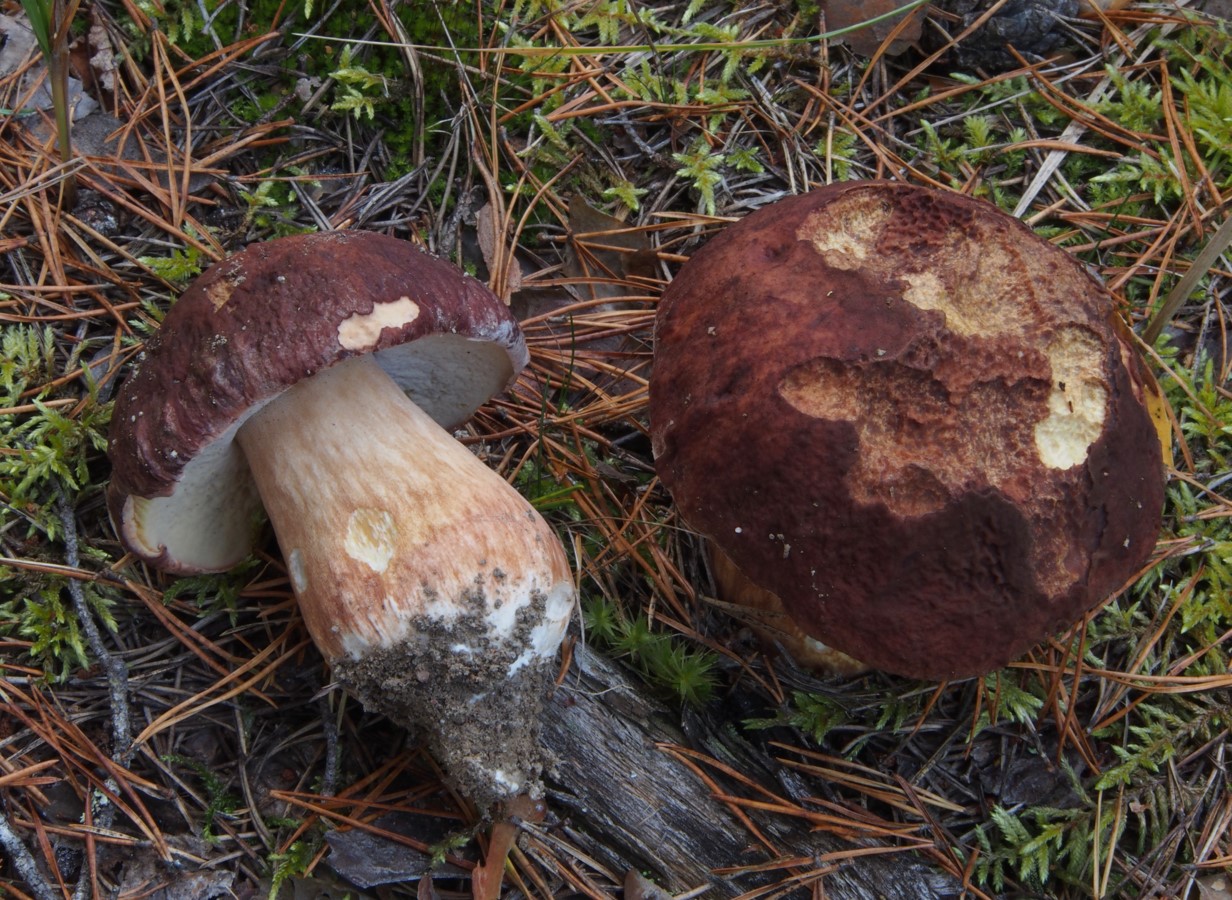
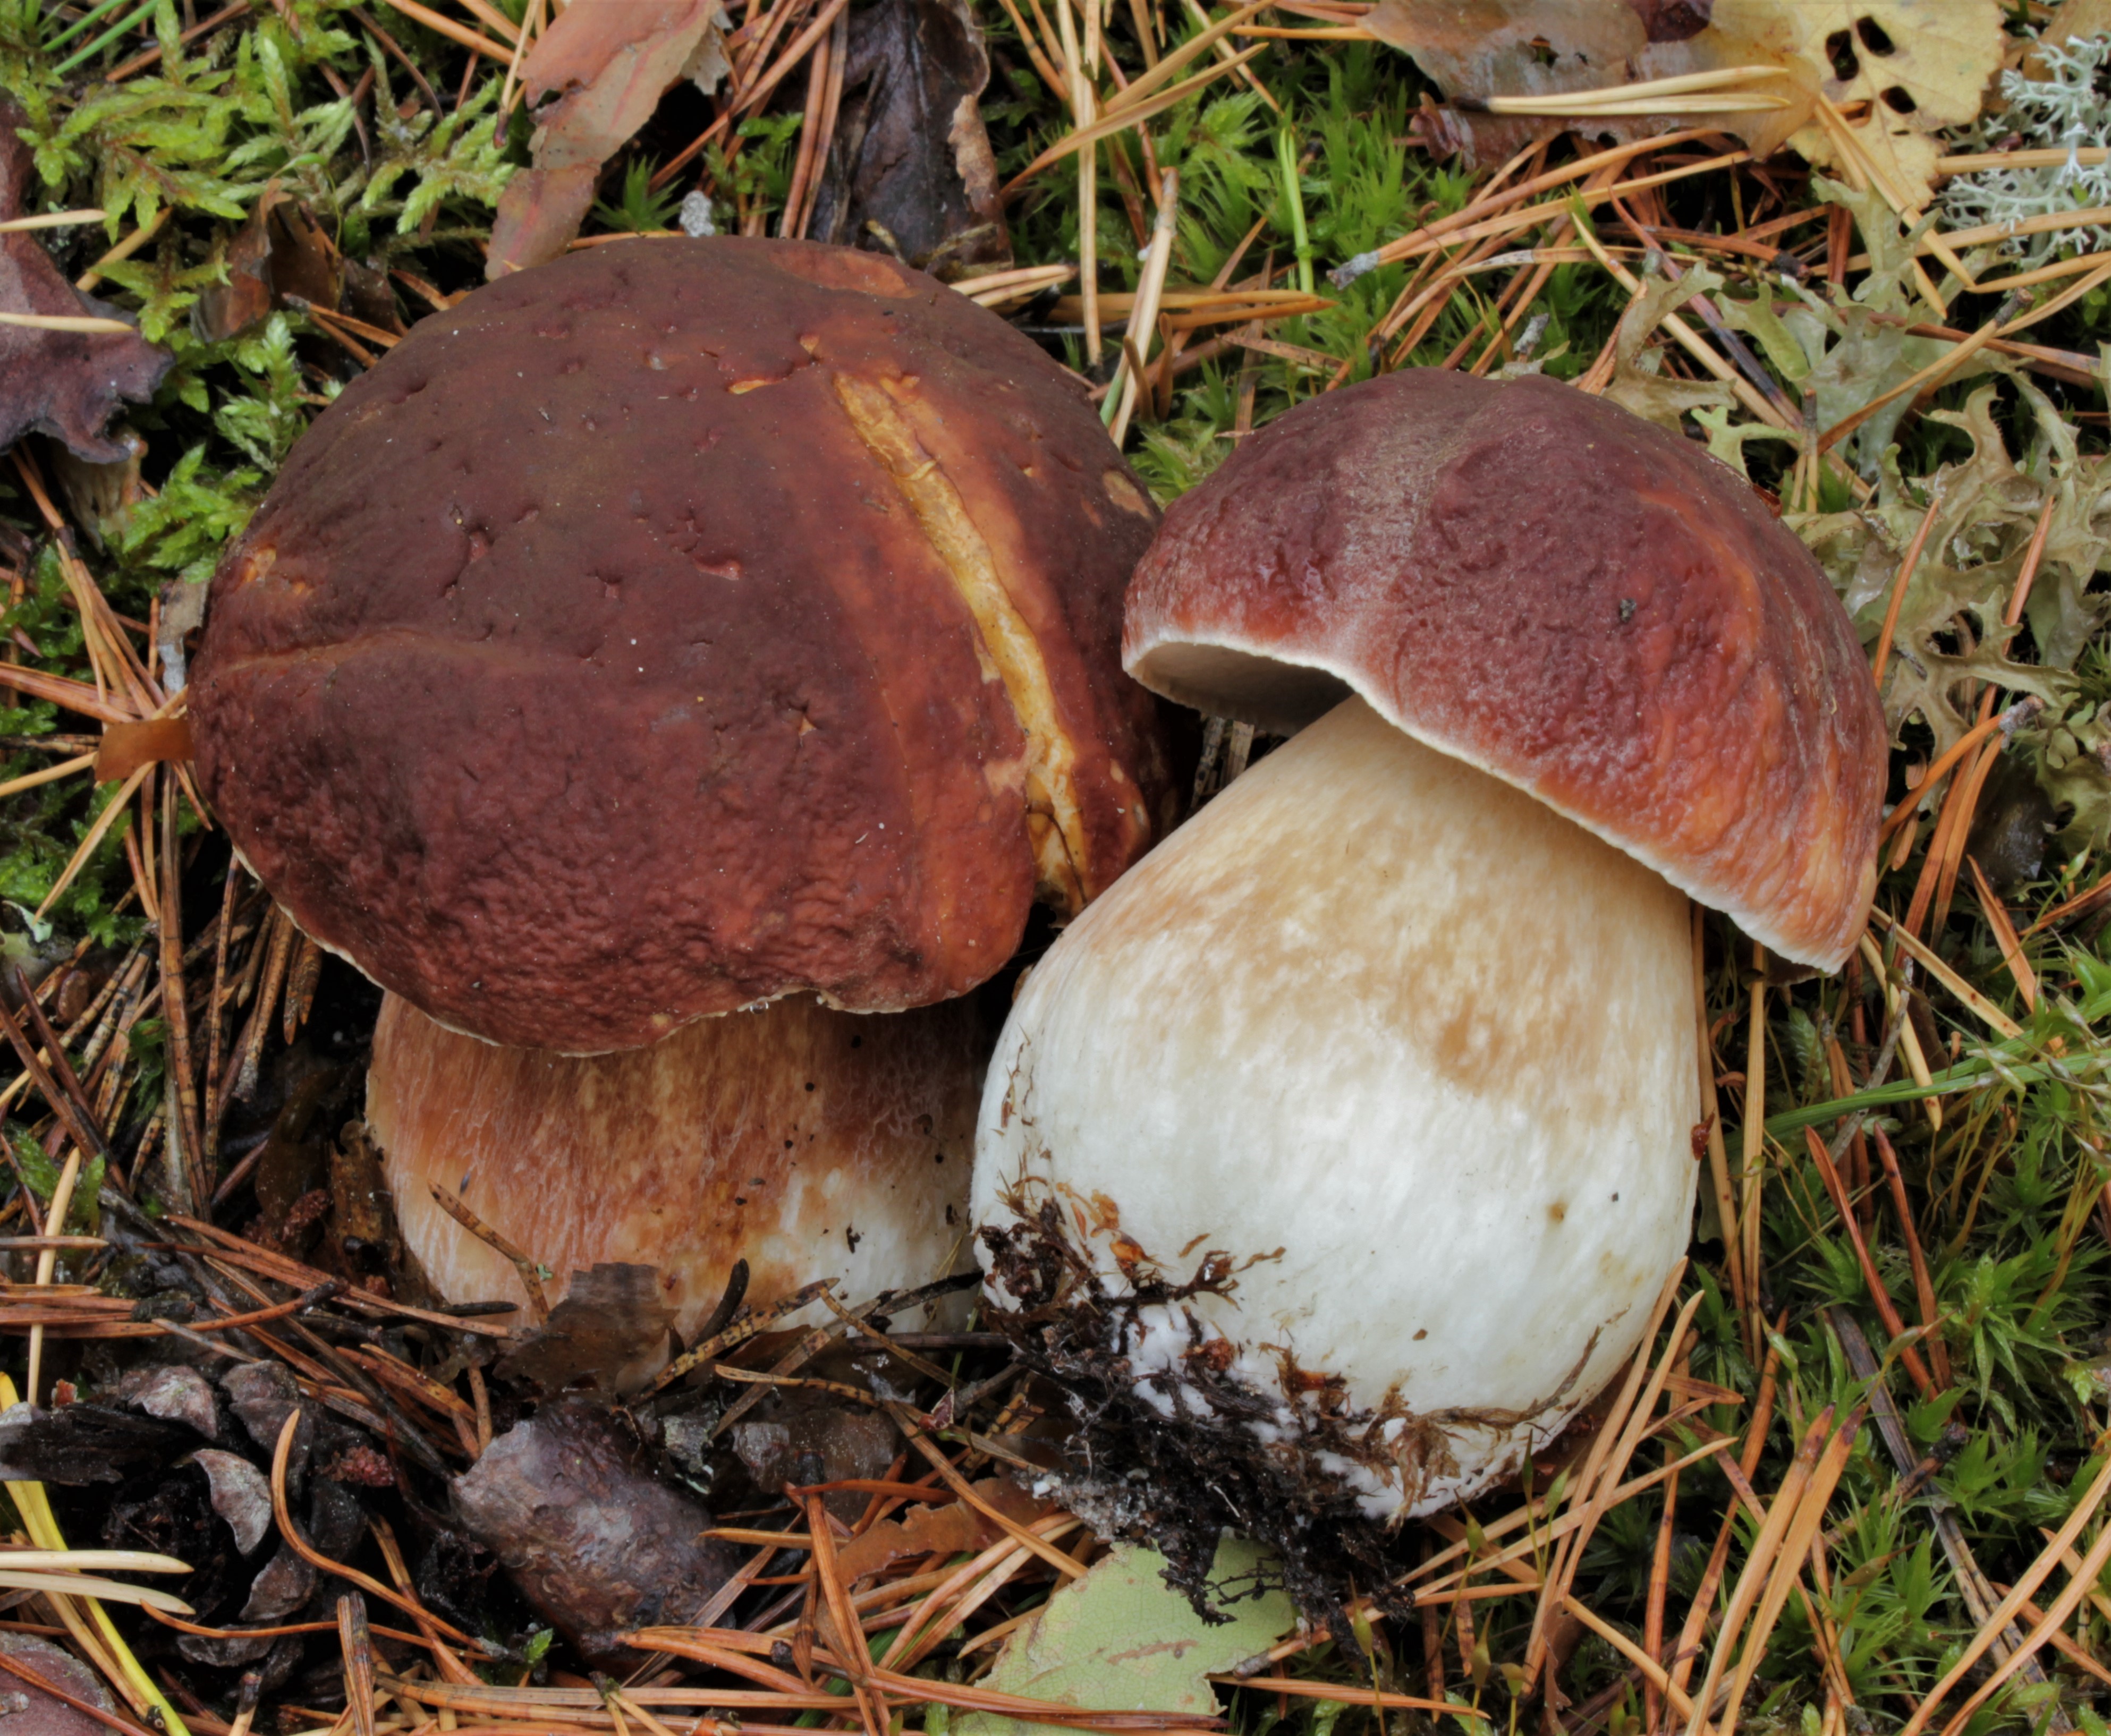
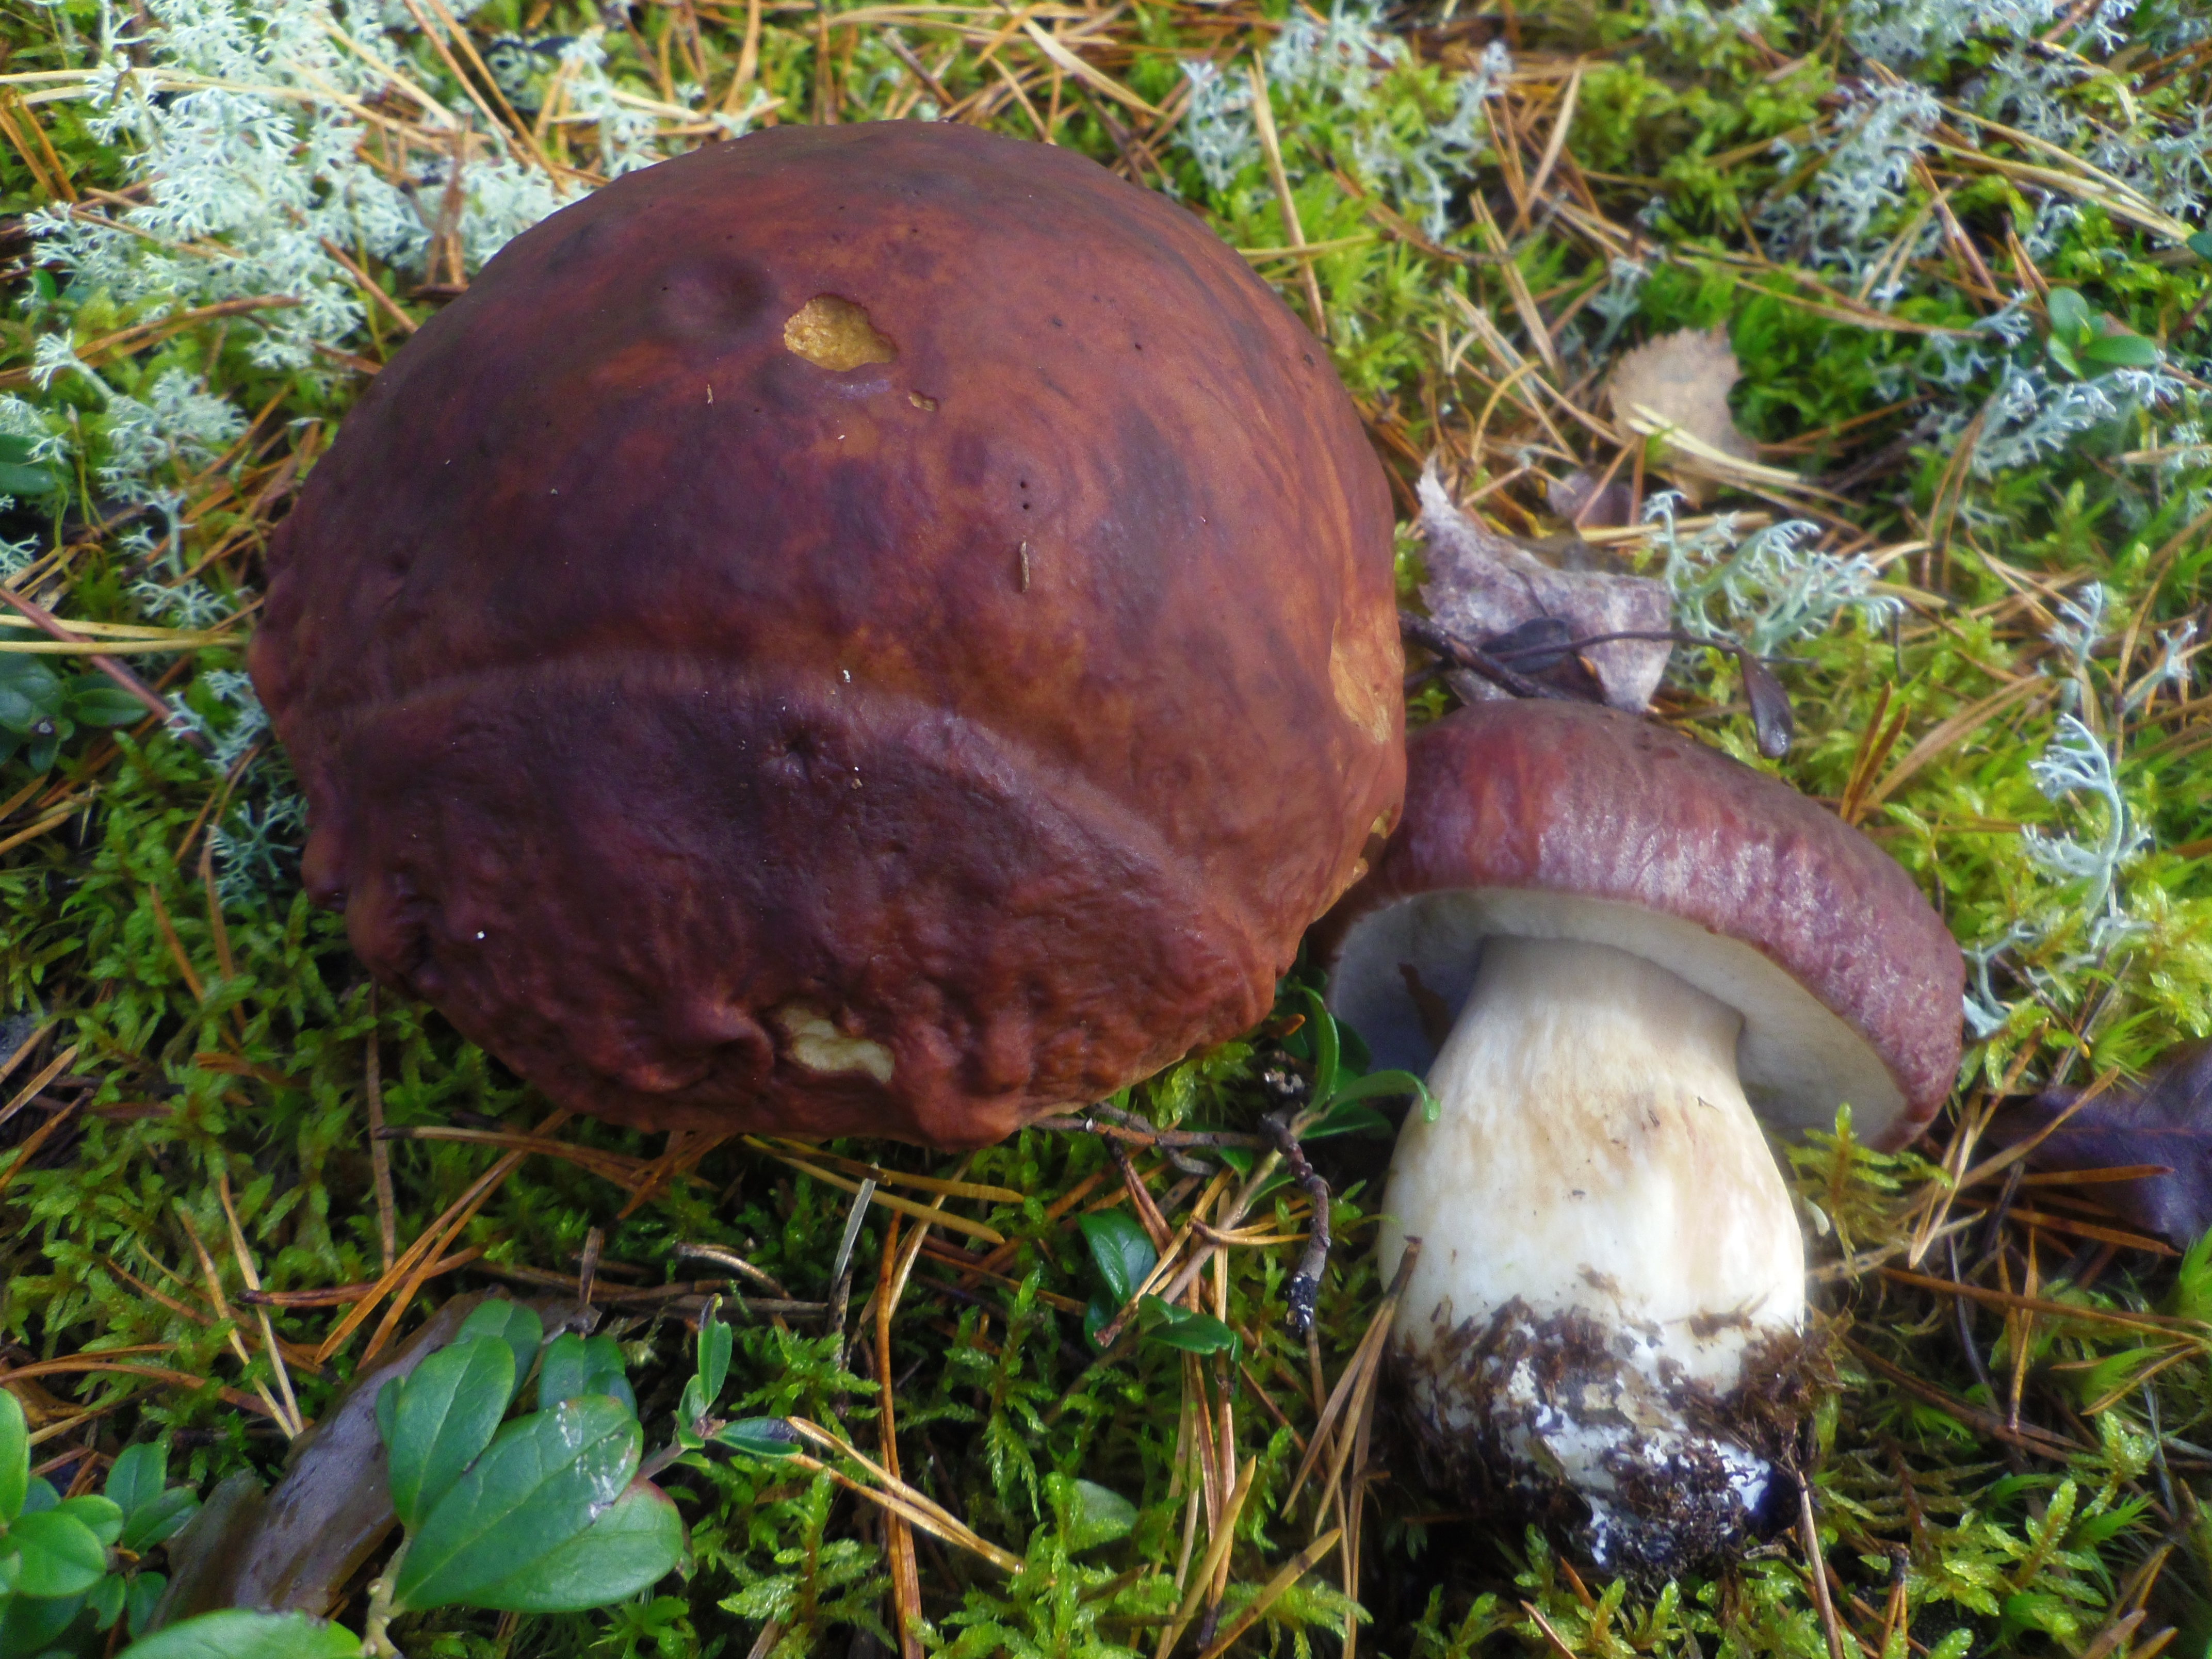
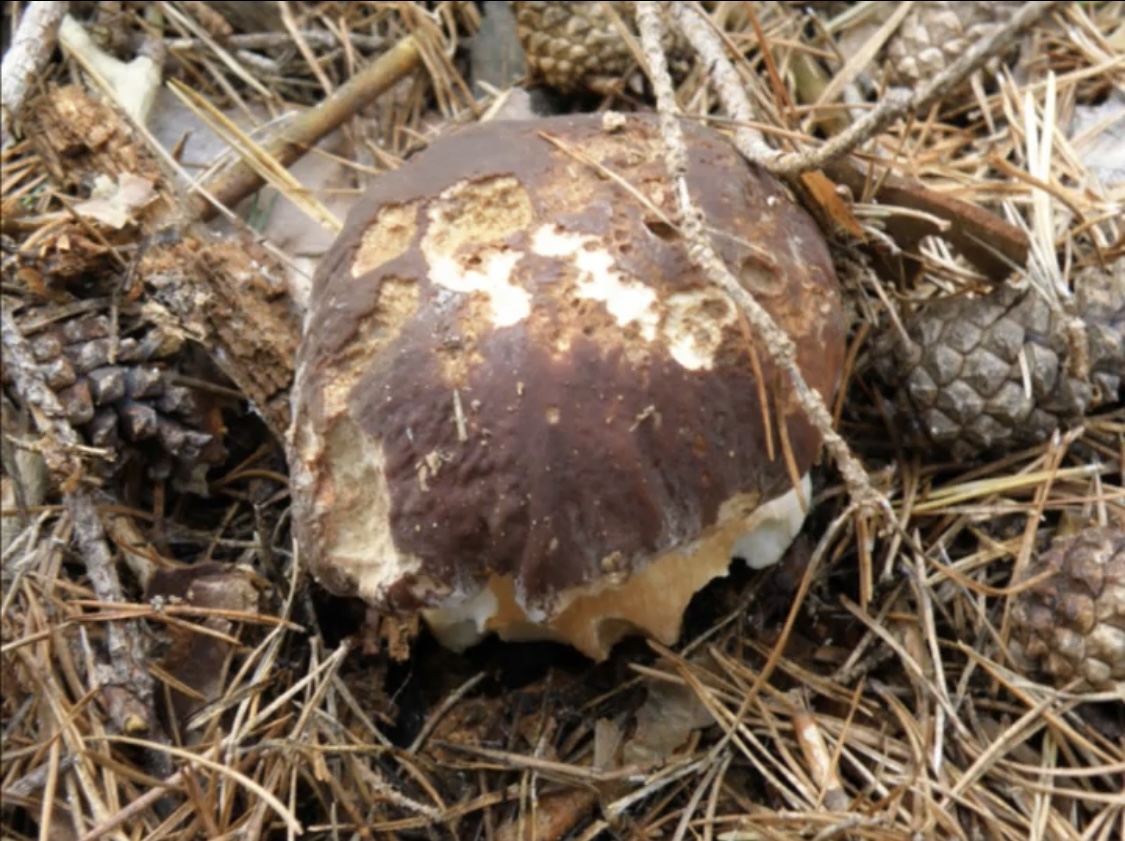
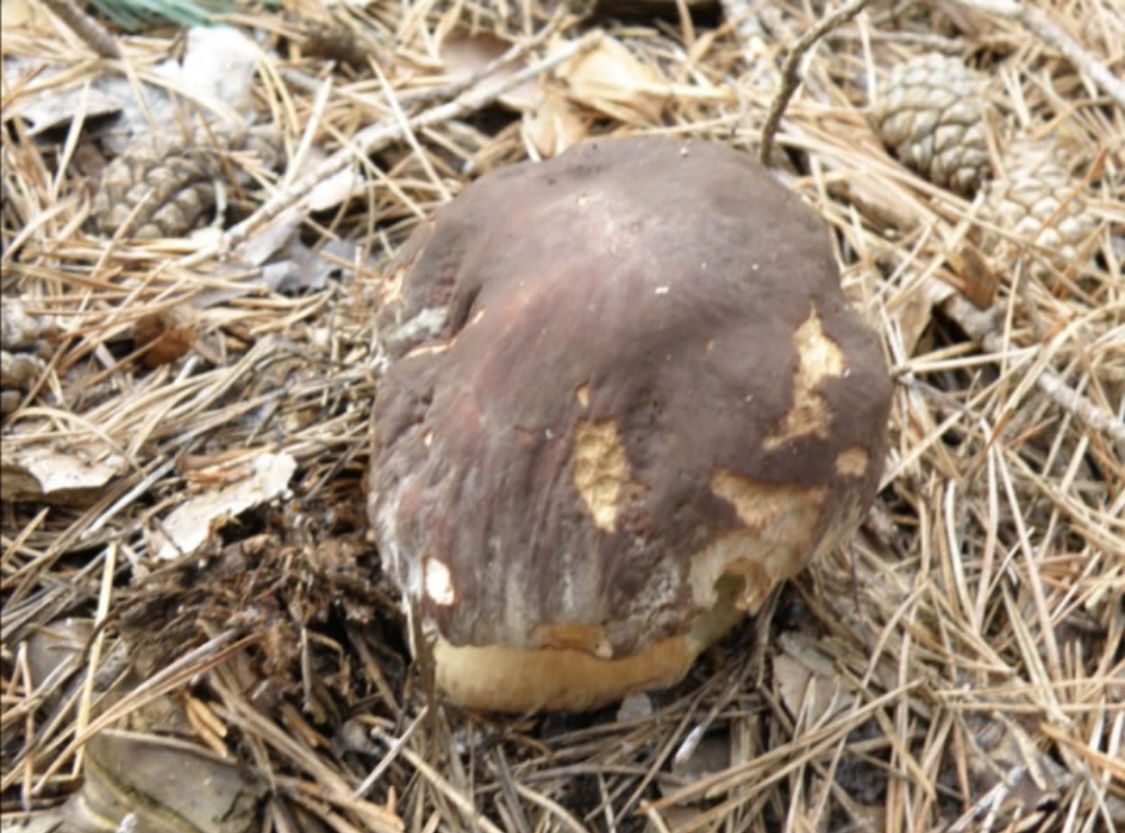
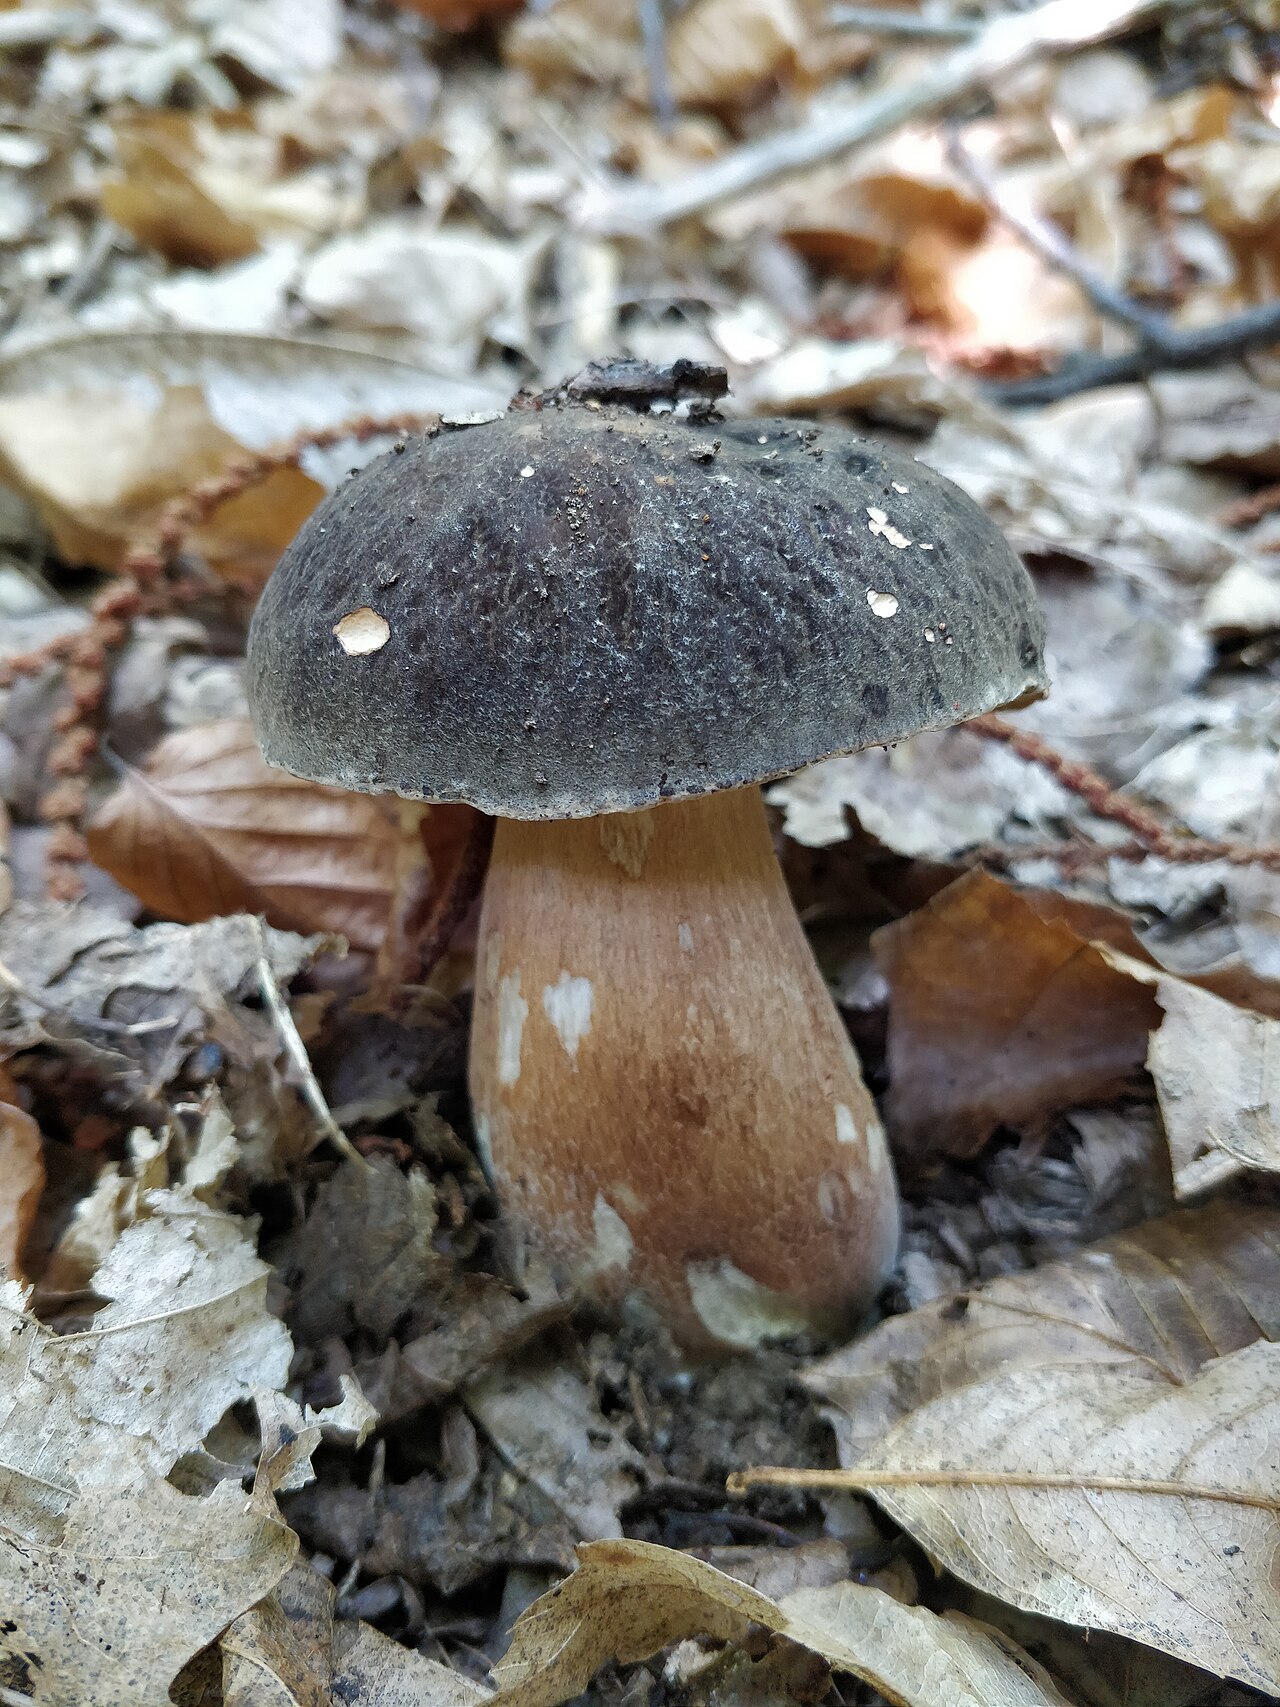
Plodnice hřibu borového má masivní kloboukatotřeňovou stavbu s rourkatým hymenoforem pod kloboukem. Je mimořádně podsaditá a masitá, často mohutnější než u hřibu smrkového. Tyto houby rostou jednotlivě nebo po několika kusech. Klobouk dosahuje průměru od 50 do 250–300 mm. Vyznačuje se tmavě červenohnědou, mahagonovou nebo tmavě kaštanově hnědou barvou, někdy s fialovým nádechem. Mladý klobouk je polokulovitý, s podvinutým okrajem pokrytým jemným povlakem, později se stává vyklenutým až poduškovitým. Jeho povrch bývá svraskalý, hrbolkatý a někdy jamkovitý. Pokožka může být jemně plstnatá nebo hladká; za vlhkého počasí se stává mírně lepkavou, lesklou a nepatrně přesahuje okraj klobouku. Okraj je jednobarevný, bez žluté zóny, ačkoli u mladých jedinců bývá světlejší – bělavý, narůžovělý nebo nafialovělý. Rourky mají délku do 25 mm a jsou u třeně vykrojené. Zpočátku jsou bílé nebo krémové, s věkem se stávají žlutými a u zralých plodnic olivovými. Póry po stlačení nemění barvu a u starších exemplářů mohou jejich okraje hnědnout. Třeň měří 60–150 mm na délku a 30–100 mm na tloušťku. Je silný, pevný a značně masitý. Za mlada má soudkovitý nebo kulovitě vejčitě břichatý tvar, s věkem se stává válcovitě kyjovitým. Vrchol bývá bělavý, níže je třeň žlutohnědý až světle hnědý, u starších plodnic často načervenalý. Pokrývá ho síťka s bělavými oky v horní části, směrem dolů hnědnoucí, sahající někdy téměř k bázi třeně. Dužnina je bílá, tvrdá a kompaktní, pod samotnou pokožkou klobouku má načervenalý až červenohnědý odstín. Po rozkrojení nemodrá ani netmavne. Vůně čerstvých plodnic je mírná a příjemně hřibovitá, po usušení intenzivnější; chuť je mírná, houbová. Výtrusný prach je tmavě olivový až hnědoolivový. Výtrusy jsou pod mikroskopem hladké, s patrnými kapkami, válcovitě elipsoidního, úzce eliptického až vřetenovitého tvaru. Rozměry výtrusů činí 15,5–20 × 4,5–5,5 µm (podle polských zdrojů) a 12–17 × 4–6 µm (podle českých zdrojů). V pokožce klobouku se nachází tlustá želatinózní vrstva s koncovými elementy o šířce až 27 µm a červenohnědým nástěnným a inkrustujícím pigmentem, rozpustným v KOH.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
- Konzistence celé plodnice
- Konzistence celé plodnice: masitý.
Klobouk
- Tvar klobouku
- u mladých plodnic: Tvar klobouku: polokulovitý.
u zralých plodnic: Tvar klobouku: vyklenutý. - Reliéf povrchu klobouku
- Reliéf povrchu klobouku: svraštělý.
u zralých plodnic: Reliéf povrchu klobouku: svraštělý.
u zralých plodnic: Reliéf povrchu klobouku: jamkatá.
u zralých plodnic: Reliéf povrchu klobouku: hrbolkatá. - Pokryv klobouku
- Pokryv klobouku: plstnatý nebo holá.
u zralých plodnic: Pokryv klobouku: holá.
Pokryv klobouku: holá.
u mladých plodnic: Pokryv klobouku: ojíněný. - Lesk povrchu klobouku
- za mokra, u zralých plodnic: Lesk povrchu klobouku: lesklý.
- Lepkavost a slizkost klobouku
- za mokra: Lepkavost a slizkost klobouku: lepkavý.
- Barva klobouku
- u zralých plodnic: Barva klobouku: tmavohnědý.
u zralých plodnic: Barva klobouku: červenohnědý.
u mladých plodnic: Barva klobouku: bělavá (na okraji klobouku).
Barva klobouku: tmavě červenohnědý. - Postavení okraje
- u mladých plodnic: Postavení okraje: podvinutý.
- Přesah okraje klobouku přes hymenofor
- u zralých plodnic: Přesah okraje klobouku přes hymenofor: přesahující hymenofor.
- Průměr klobouku
- Průměr klobouku je 50–300 mm.
- Barevné zónování klobouku
- Barevné zónování klobouku: bez zónování.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: rourky.
Rourky u třeně
- Profil hymenoforu u třeně
- Profil hymenoforu u třeně: vykrojený u třeně (rourky).
- Barva pórů po poranění
- Barva pórů po poranění: beze změny barvy.
- Přirozená barva pórů
- u mladých plodnic: Přirozená barva pórů: bílý.
u zralých plodnic: Přirozená barva pórů: žlutý.
u zralých plodnic: Přirozená barva pórů: olivový. - Přirozená barva rourek
- u mladých plodnic: Přirozená barva rourek: krémový.
u zralých plodnic: Přirozená barva rourek: olivový.
u mladých plodnic: Přirozená barva rourek: bledě žlutý.
u mladých plodnic: Přirozená barva rourek: bílý.
u zralých plodnic: Přirozená barva rourek: žlutý.
Třeň a báze
- Tvar třeně
- u mladých plodnic: Tvar třeně: soudkovitý.
u zralých plodnic: Tvar třeně: kyjovitý.
u mladých plodnic: Tvar třeně: kulovitý nebo vejčitý.
u zralých plodnic: Tvar třeně: válcovitě kyjovitý. - Barva třeně
- u mladých plodnic, v horní části třeně: Barva třeně: bělavá.
v dolní části třeně: Barva třeně: žlutohnědý.
Barva třeně: světle hnědý.
Barva třeně: načervenalý.
u zralých plodnic: Barva třeně: načervenalý. - Reliéf povrchu třeně
- v horní části třeně: Reliéf povrchu třeně: síťovitá.
v dolní části třeně: Reliéf povrchu třeně: síťovitá. - Konzistence třeně
- Konzistence třeně: pevný.
- Délka třeně
- Délka třeně: 60–150 mm.
- Průměr třeně
- Průměr třeně: 30–100 mm.
- Barva síťky na třeni
- v horní části třeně: Barva síťky na třeni: bělavá.
v dolní části třeně: Barva síťky na třeni: nahnědlý.
Dužnina
- Barva dužniny
- Barva dužniny: bílý.
Barva dužniny: červenohnědý (dužnina klobouku, pod pokožkou). - Pevnost dužniny
- Pevnost dužniny: pevný.
- Barva dužniny po poranění
- Barva dužniny po poranění: beze změny barvy.
- Vůně dužniny
- Vůně dužniny: houbový, slabý.
Kde a kdy roste
- Stanoviště
- Stanoviště: jehličnatý les.
Stanoviště: smíšený les.
Stanoviště: listnatý les. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: v malých skupinách. - Doba růstu
- Plodnice se objevují od června do září.
- Oblast výskytu
Jedlost a kuchyně
- Jedlost
- Jedlý
Možná záměna
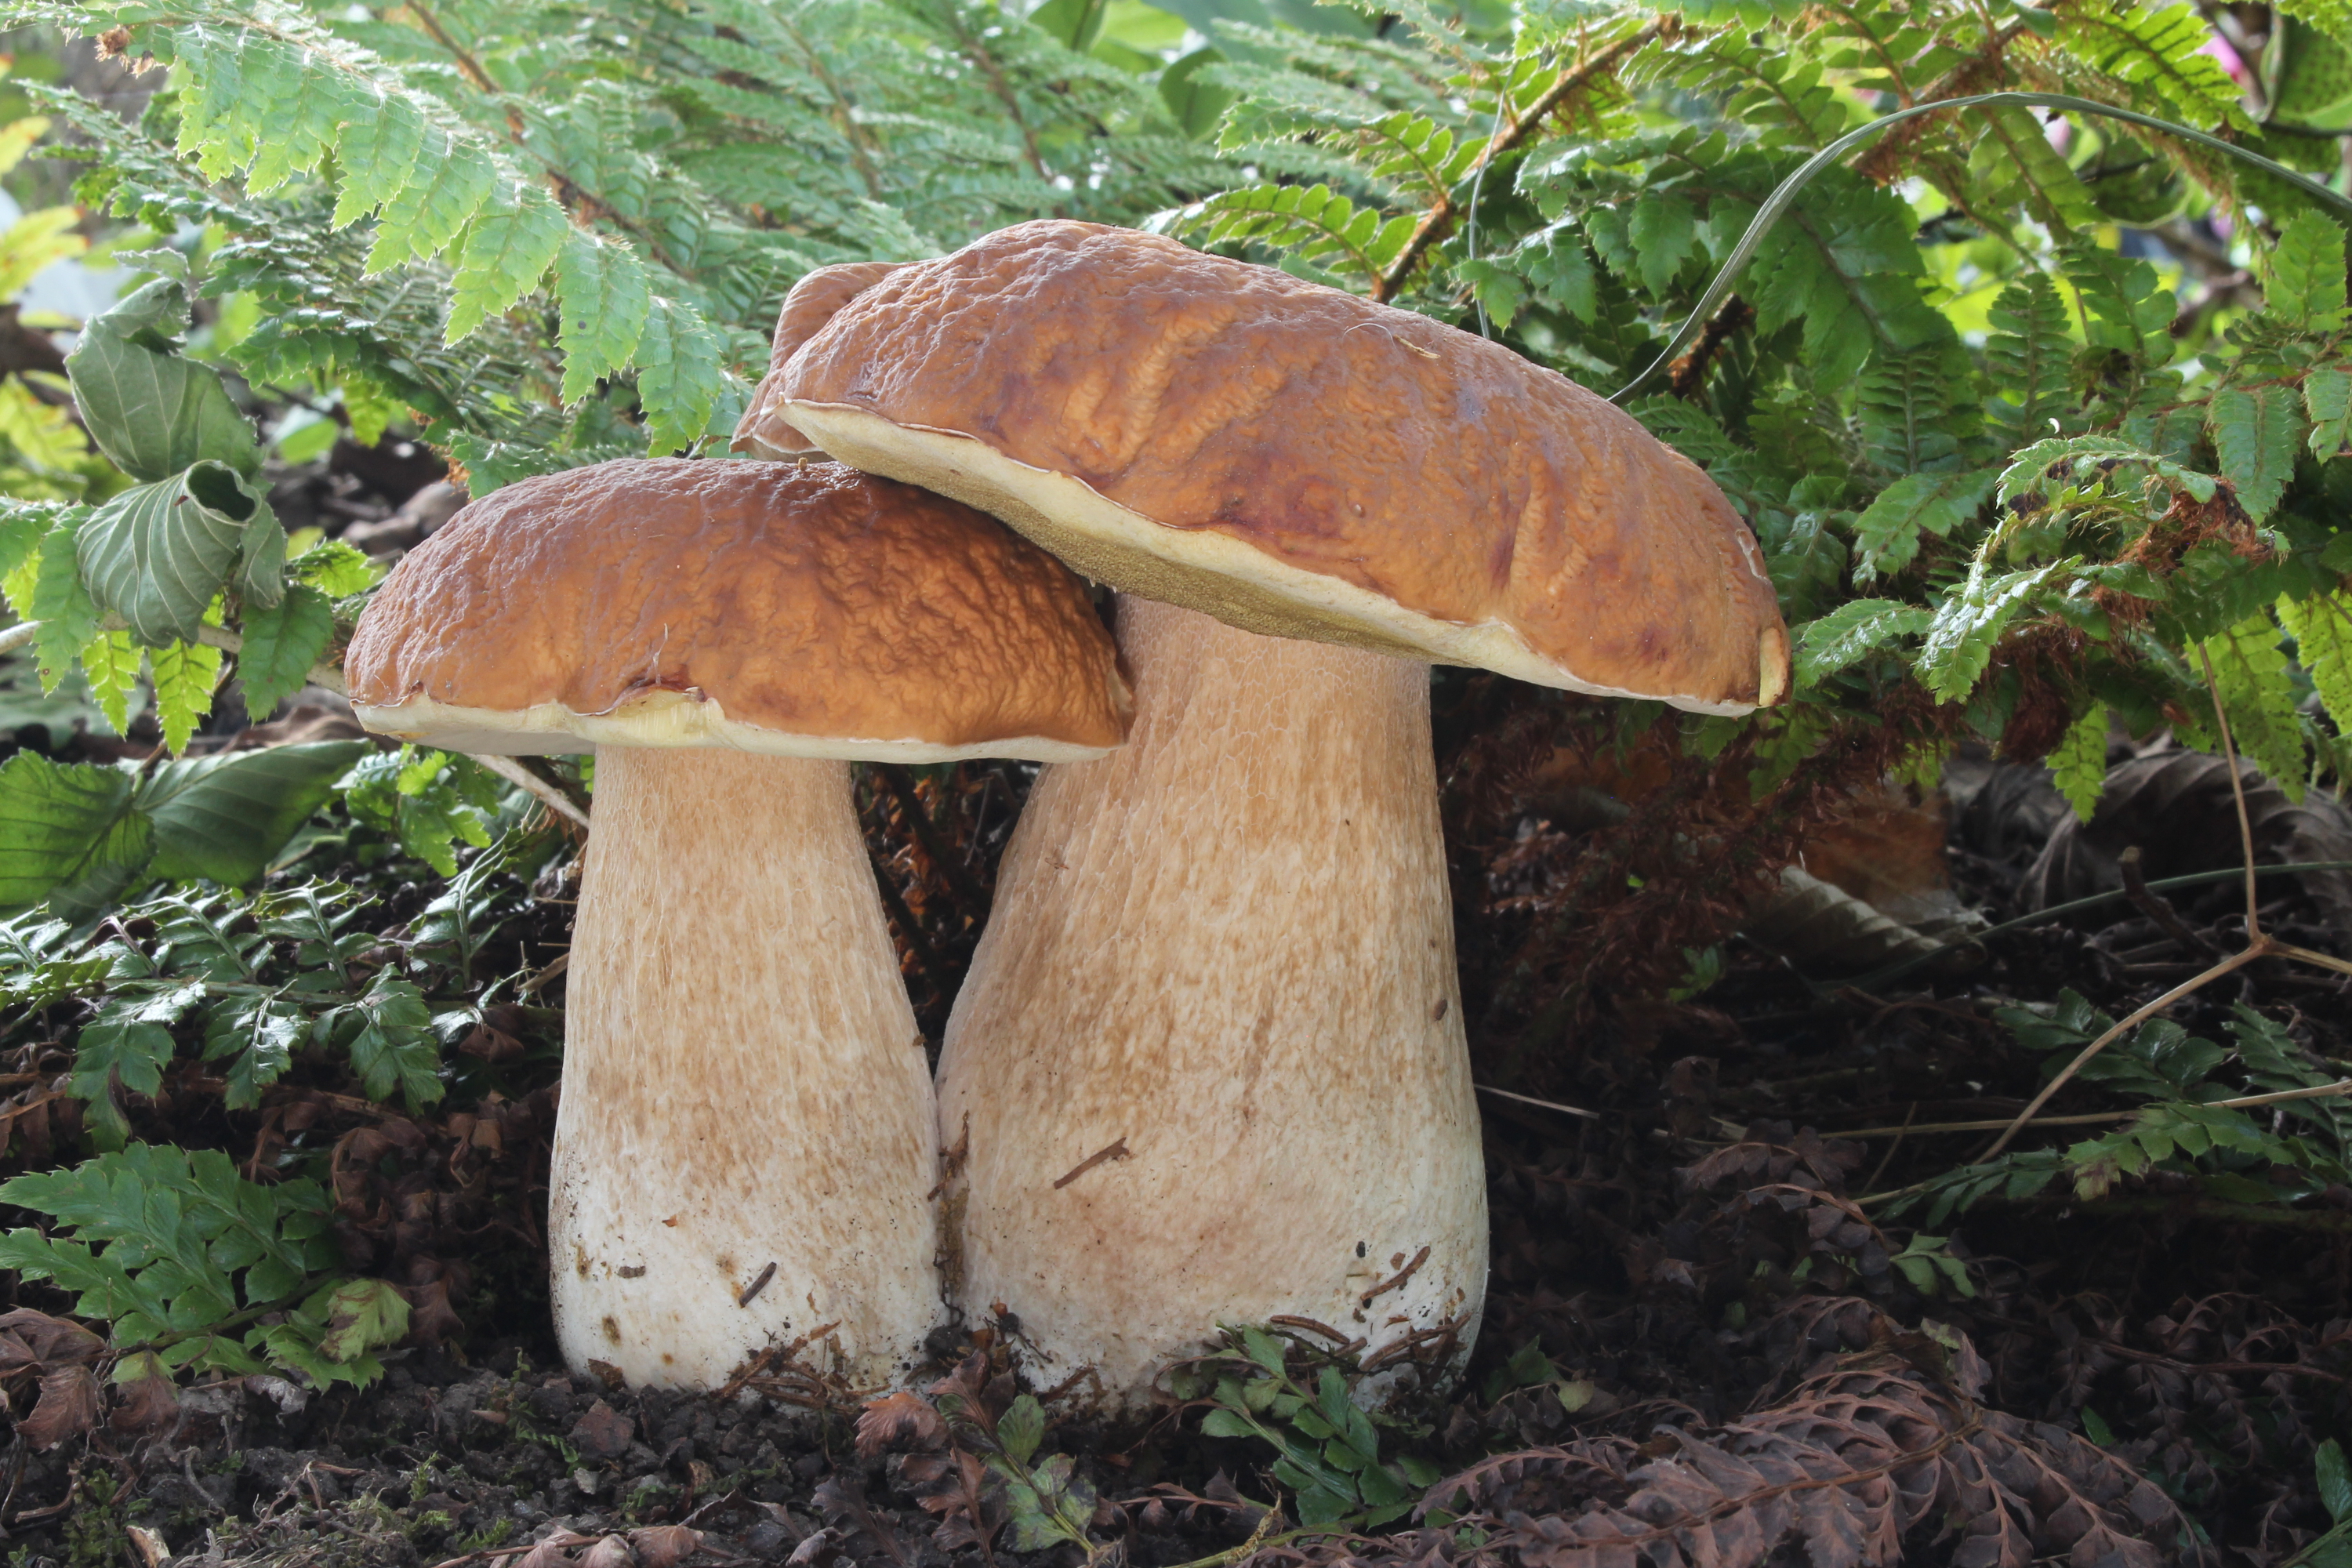
Boletus edulis
Hlavní rozdíly
Hřib borový (Boletus pinophilus) se vyznačuje tmavým, červenohnědým nebo téměř černohnědým kloboukem a roste převážně ve vazbě na borovice. V mikroskopické stavbě vyniká tlustou, želatinizovanou pokožkou a koncovými elementy o šířce až 27 µm, které obsahují červenohnědý, nástěnný inkrustující pigment, jenž se rozpouští v hydroxidu draselném (KOH).
Hřib smrkový (Boletus edulis) mívá klobouk v odstínech od světle hnědé po tmavě hnědou, někdy s nažloutlým nebo načervenalým tónem, jeho povrch je však lysý, mastný a síťka na třeni je obvykle jemná a omezená na horní část. Mikroskopicky mají koncové elementy pokožky B. edulis šířku 4–19 µm a barvivo se nachází uvnitř buněk. Přítomnost načervenalého odstínu ani blízkost borovic nejsou výhradními znaky pro B. pinophilus, protože B. edulis roste rovněž v borových lesích na chudých, kyselých píscích.
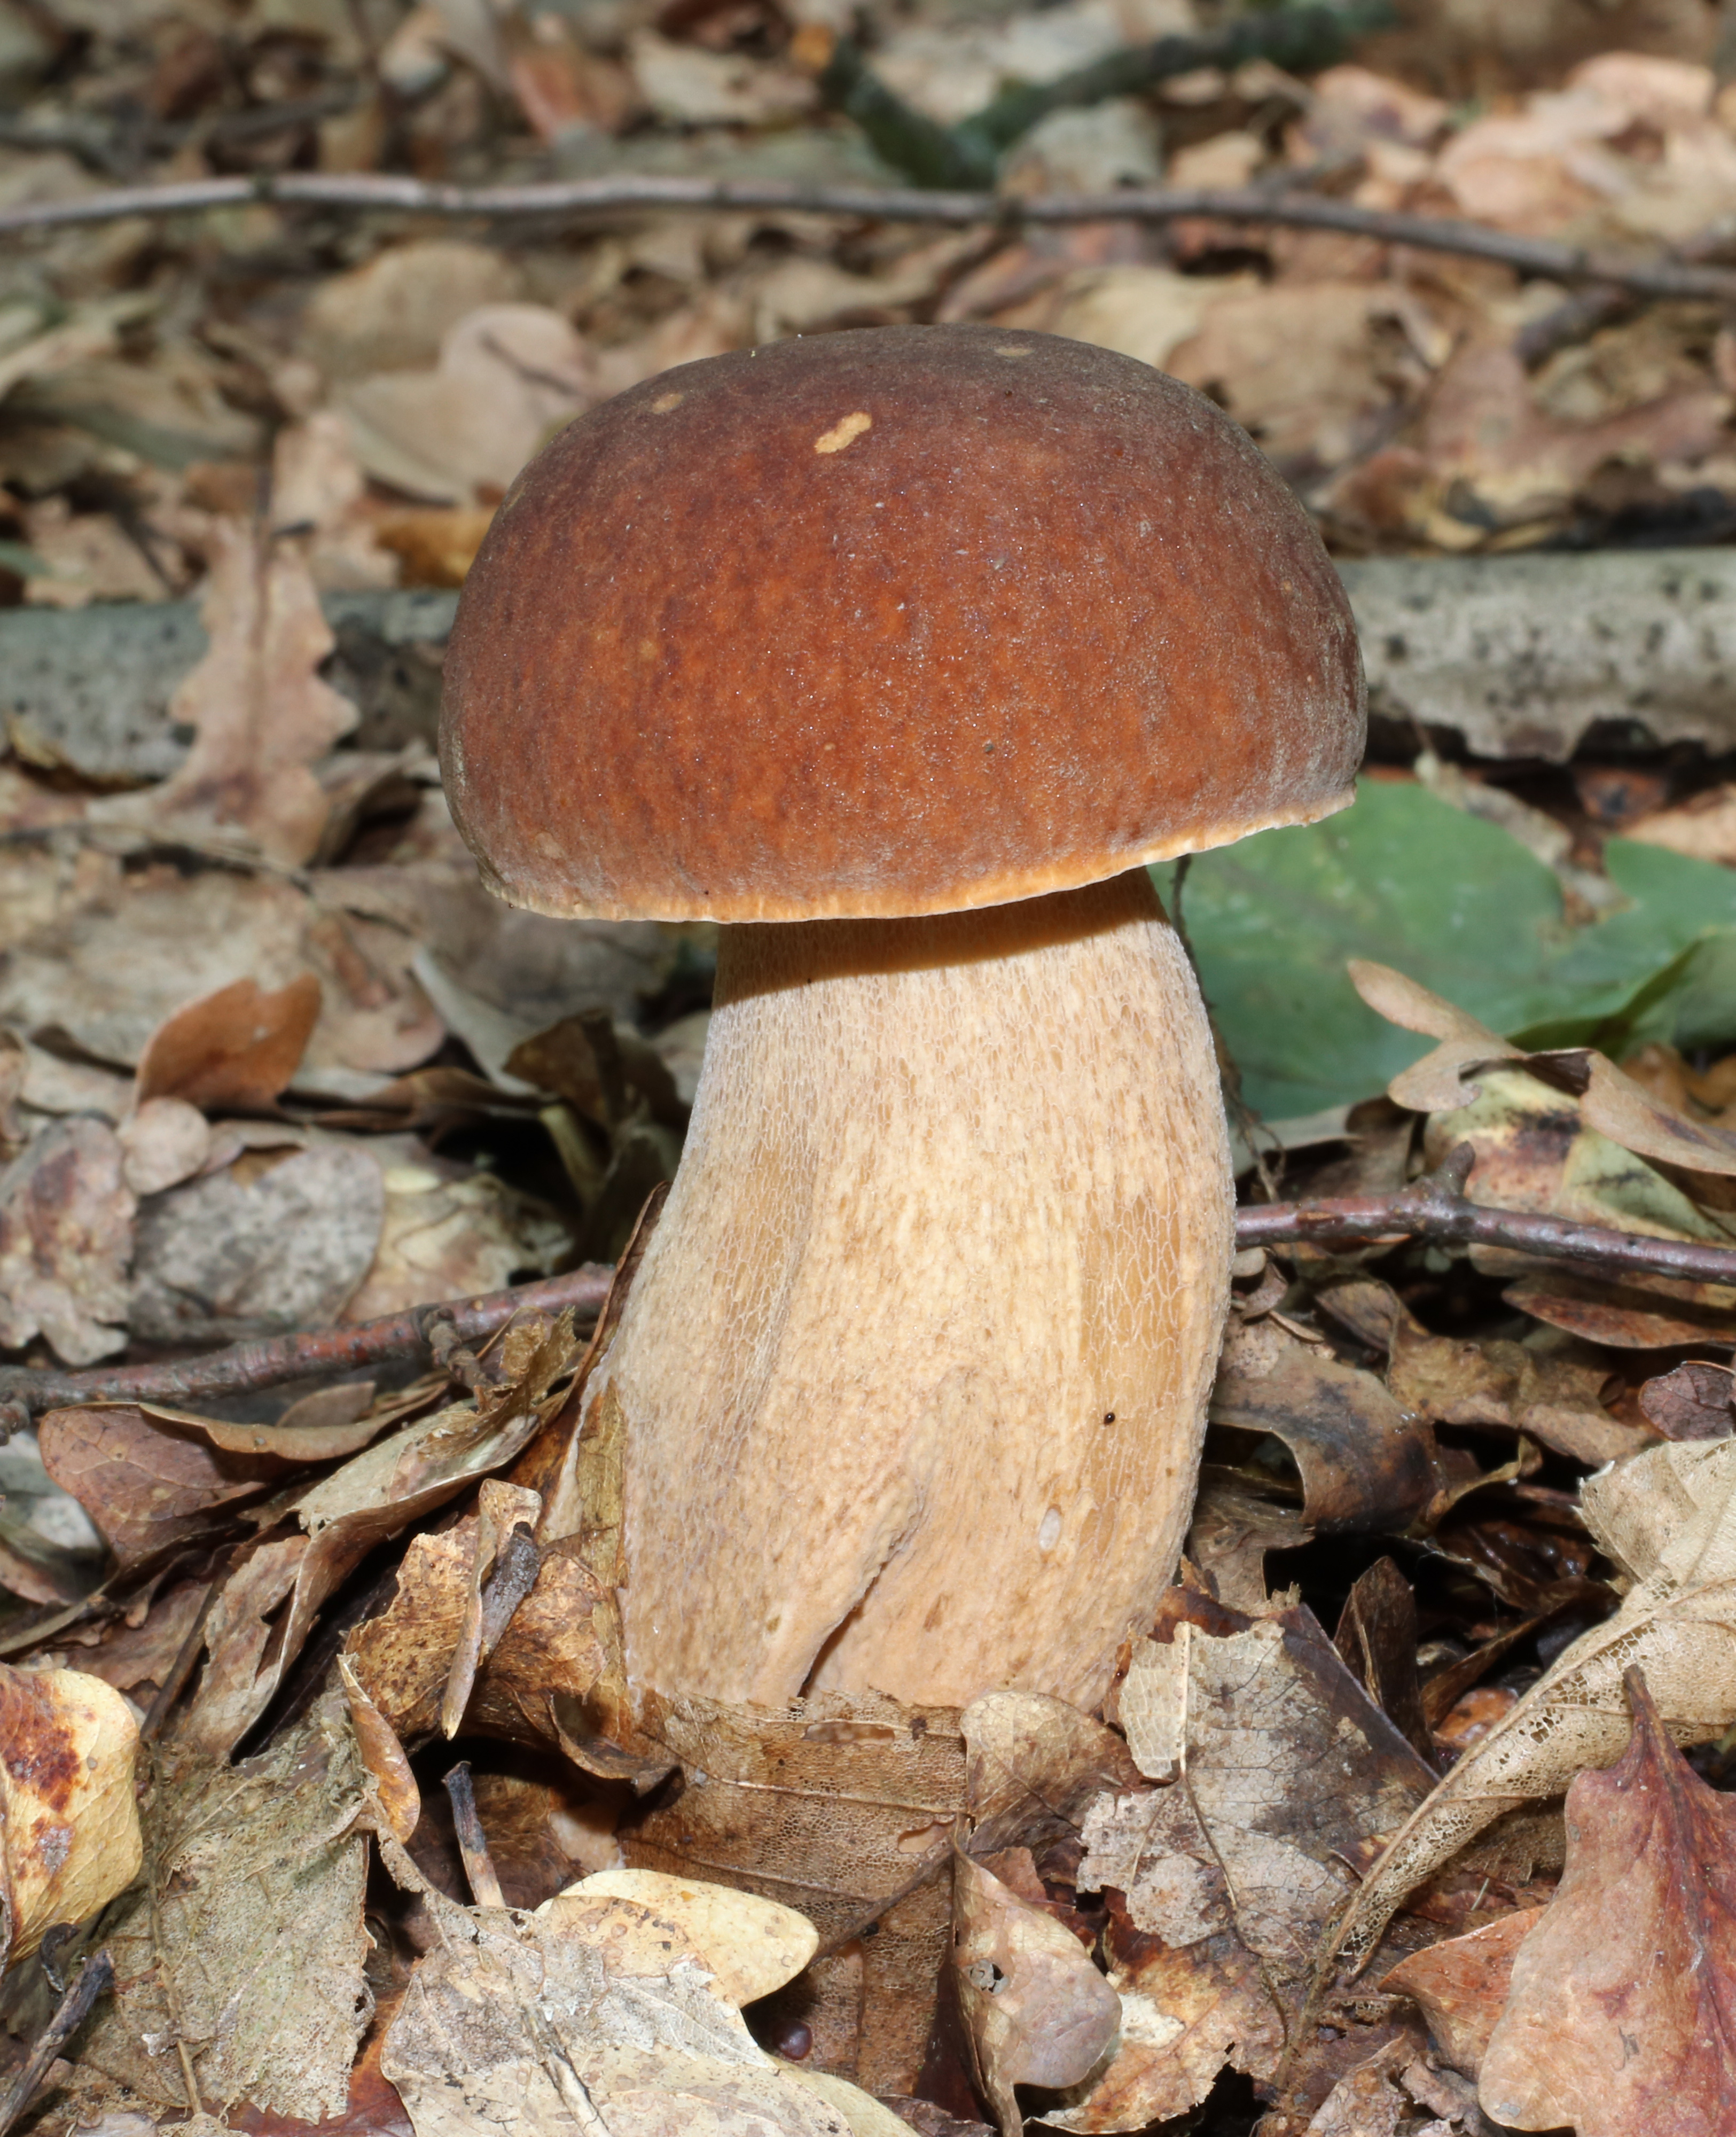
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Zdroj fotografie · Public domainBoletus reticulatus
Hlavní rozdíly
Hřib dubový (Boletus reticulatus) se vyznačuje suchým, sametovým kloboukem středně žlutohnědé až červenohnědé barvy, který u starších plodnic často charakteristicky puká. Po celé délce jeho třeně je patrná výrazná, vystouplá síťka. V mikroskopickém obraze dosahují koncové elementy pokožky šířky až 20 µm a obsahují drobná zrna vnitrobuněčného barviva. Tento druh roste převážně pod duby, na hlinitých nebo písčito-hlinitých půdách, mimo jiné v parcích a podél okrajů cest.
Hřib borový (Boletus pinophilus) se od hřibu dubového liší podstatně tmavším kloboukem s výrazným, hlubokým červenohnědým nebo mahagonovým odstínem.
Boletus aereus
Hlavní rozdíly
Hřib borový (Boletus pinophilus) se vyznačuje červenohnědou, kaštanovou až mahagonovou barvou klobouku s povrchem často vrásčitým a želatinizovaným, hrubší síťkou na vrcholu třeně a širšími elementy pokožky klobouku (do 27 µm šířky), jejichž hnědý pigment se rozpouští v hydroxidu draselném (KOH).
Hřib bronzový (Boletus aereus) se vyznačuje kloboukem bez načervenalých odstínů, o barvě velmi tmavě hnědé až téměř černohnědé, se suchým, jemně ochmýřeným povrchem a ojíněným okrajem. Na třeni se vyskytuje tmavohnědá síťka pokrývající téměř celou jeho délku. Koncové elementy hyf pokožky jsou užší (do 11 µm šířky) a obsahují drobná vnitrobuněčná zrnka pigmentu.
FAQ
Lze hřib borový konzumovat za syrova?
Konzumace syrové houby se na základě obecných doporučení PSSE pro lesní houby jednoznačně nedoporučuje. Vyžaduje tepelnou úpravu a sušení je pouze metodou konzervace.
Pod jakými stromy nejčastěji roste hřib borový?
Ve studiích je vázán téměř výhradně na borovici (*Pinus*), vzácně na smrk (*Picea*). Zdroje z Cuneo uvádějí jehličnaté a listnaté lesy bez doložení konkrétních rodů stromů.
V jakých měsících lze v Polsku najít hřib borový?
V klimatických podmínkách Polska je období růstu plodnic tohoto druhu doloženo od června do září (VI–IX) v závislosti na vlhkosti a teplotě.
Jak chutná hřib borový?
Má příjemnou chuť a nepříliš silnou vůni čerstvé dužniny. Jeho dužnina je bílá a po rozkrojení nemění barvu.
Proč bývá hřib borový označován jako „porcino rosso“?
Italské označení „porcino rosso“ odkazuje na charakteristické mahagonové nebo červenohnědé zbarvení klobouku tohoto druhu.
Na jakých půdách tento druh roste nejraději?
Často se nachází na písčitých a kyselých půdách typických pro borové lesy, osidluje však i jiné typy lesních podkladů.
Akumuluje hřib borový těžké kovy?
Ve vědeckých studiích byla publikována měření koncentrací rtuti v plodnicích tohoto druhu, která poukazují na její příjem z podkladu, bez zobecňování ohledně klinických dopadů.
Je hřib borový v Polsku chráněným druhem?
V Polsku nepodléhá druhové ochraně. Nefiguruje na seznamu hub podléhajících přísné nebo částečné ochraně ve vyhlášce ministra životního prostředí.
Kdy byl formálně publikován název Boletus pinophilus?
Formální druhový název *Boletus pinophilus* byl v mykologické literatuře publikován v roce 1973.
Proč se nedoporučuje sbírat staré plodnice této houby?
Staré, přezrálé plodnice podléhají přirozeným procesům rozkladu tkání a jejich konzumace je spojena s rizikem nespecifických žaludečních potíží.
Nadšenec
Spodní strana klobouku
- Délka rourek
- Délka rourek: do 25 mm.
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách klobouk zvedněte a prohlédněte si otisk.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: zelený.
- Odstín výtrusného prachu
- Odstín výtrusného prachu: tmavě olivový. Odstín výtrusného prachu: hnědoolivový.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: Válcovitě elipsoidní.
- Povrch výtrusu
- Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 12–21 µm, šířka 3,5–6,5 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Půdní reakce
- Půdní reakce: kyselý.
- Zrnitost půdy
- Zrnitost půdy: písčitý.
- Úrodnost půdy
- Úrodnost půdy: Chudá na živiny.
Historie a kultura
Hřib borový zaujímá významné místo v evropských houbařských tradicích a je součástí kulinářské i lesnické kultury mnoha regionů. V italské tradici bývá lidově označován jako „porcino rosso“, což odkazuje na červenohnědou, mahagonovou barvu jeho klobouku, která jej vizuálně odlišuje od ostatních hřibů.
V historii mykologické taxonomie byl status této houby předmětem mnohaletých diskusí a systematických změn. Ačkoli byl tento taxon v 19. století popisován jako varieta hřibu smrkového, formální druhový název Boletus pinophilus byl publikován v roce 1973. Tyto změny odrážely postupné zpřesňování morfologických a ekologických kritérií mykology zkoumajícími borové houby.
Zájem o tento druh v mykologické i regionální literatuře souvisel především s jeho charakteristickým vzhledem a úzkou vazbou na borovicová stanoviště. Tato houba zůstává rozpoznatelnou součástí evropského přírodního dědictví a milovníci mykologie ji oceňují pro její mohutný vzrůst a specifické nároky na stanoviště.
Jedlost a bezpečnost
Hřib borový je ceněná jedlá houba. Podle popisu provincie Cuneo se vyznačuje příjemnou chutí, nepříliš silnou vůní čerstvé dužniny a bílou dužninou, která po rozkrojení nemění barvu. Ke konzumaci jsou určeny výhradně zdravé plodnice. Podobně jako u jiných lesních hub je konzumace starých nebo rozkládajících se plodnic spojena s rizikem nespecifických gastrointestinálních potíží.
V odborných publikacích byla zaznamenána schopnost tohoto druhu akumulovat stopové prvky včetně rtuti, což je předmětem biomonitorovacích studií chemického složení plodnic, aniž by z toho byly vyvozovány přímé závěry o klinickém riziku.
Konzumace hřibu borového v syrovém stavu se na základě obecných hygienických pokynů (PSSE) pro lesní houby jednoznačně nedoporučuje, aniž by se tomuto druhu připisoval zvláštní toxický účinek a bez záruky bezpečnosti po požití syrové plodnice. Před konzumací vyžaduje odpovídající tepelnou úpravu (např. vaření, dušení nebo smažení). Je přitom třeba odlišovat kulinářskou úpravu od metod konzervace – sušení představuje pouze způsob konzervace plodnic, nikoli přípravu k přímé konzumaci. V italské tradici, kde bývá označován jako „porcino rosso“, nachází kulinářské uplatnění díky pevné struktuře dužniny.
Stanoviště a výskyt
Hřib borový je ektomykorhizní houba vázaná především na borovici (Pinus). Podrobné mykologické studie (Beugelsdijk et al. 2008) uvádějí, že se tento druh vyskytuje téměř výhradně ve vazbě na borovice, vzácněji na smrky (Picea), a roste na chudých, kyselých písčitých půdách. Oficiální popis italské provincie Cuneo naproti tomu uvádí plodnice v jehličnatých i listnatých lesích, avšak bez doložení konkrétních rodů hostitelských stromů.
Vyskytuje se především v borech a také v jehličnatých a smíšených lesích. Geografický areál druhu zahrnuje Evropu. V severní a střední Evropě, včetně Polska, je zaznamenáván v nížinách a pahorkatinách, zatímco v jižní části kontinentu roste mimo jiné v podhorských a horských oblastech v jehličnatých i listnatých porostech.
V klimatických podmínkách Polska spadá v literatuře doložená doba růstu plodnic na měsíce červen až září (VI–IX) v závislosti na příznivých teplotních a vlhkostních podmínkách v dané sezóně.
Zdroje
- Snowarski M. Atlas grzybów Polski: Boletus pinophilus (borowik sosnowy). Page generated 2026-09-01; content changed 2025-10-19.
- Tejkal K. Česká mykologická společnost: Boletus pinophilus — hřib borový.
- Beugelsdijk D.C.M. et al. (2008). A phylogenetic study of Boletus section Boletus in Europe. Persoonia20:1–7. DOI 10.3767/003158508X283692.
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlost
- Jedlý — źródło oznaczenia
Snowarski M. Atlas grzybów Polski: Boletus pinophilus (borowik sosnowy). Page generated 2026-09-01; content changed 2025-10-19. · jadalne czy trujące? / Jadalny; edible and choice
Vědecké názvy a taxonomie
Borowik sosnowy (Boletus pinophilus Pilát & Dermek) należy do królestwa Fungi, typu Basidiomycota, podklasy Agaricomycetidae, klasy Agaricomycetes, rzędu Boletales oraz rodziny Boletaceae. Rejestr Species Fungorum uznaje tę nazwę za bieżącą, a numer rekordu nomenklatorycznego w bazie Index Fungorum to 309751.
[2] [3]Nazwę Boletus pinophilus utworzono w 1973 r. jako nową nazwę (nomen novum) dla grzyba określanego wcześniej jako Boletus pinicola w ujęciu wywodzącym się od Boletus edulis var. pinicola Vittad. 1835. Zmiana ta wynikała z kolizji ze starszą nazwą Boletus pinicola Sw. 1810, odnoszącą się do innej linii taksonomicznej związanej z rodzajem Fomitopsis. Zbieżność samego epitetu gatunkowego nie oznacza powiązania tych grzybów. Publikację nomenklatoryczną przygotował Albert Pilát, natomiast formalne autorstwo nazwy przypisane jest duetowi Pilát & Dermek.
[3] [4]Rejestr Species Fungorum wymienia w synonimii tego gatunku następujące nazwy oraz kombinacje historyczne:
| Nazwa i autorstwo | Rok w rejestrze | Publikacja |
|---|---|---|
| Boletus edulis var. pinicola Vittad. | 1835 | Descr. fung. mang. Italia: 168 |
| Boletus pinicola (Vittad.) A. Venturi | 1863 | I Miceti dell’Agro Bresciano: tab. 46 |
| Boletus aestivalis var. pinicola (Vittad.) Sacc. | 1910 | Syll. Fung. 19: 154 |
| Boletus pinicola (Vittad.) Rea | 1922 | Brit. basidiomyc.: 567 |
| Boletus edulis f. pinicola (Vittad.) Vassilkov | 1966 | C. r. Soc. Phys. Hist. nat. Genève: 14 |
| Dictyopus edulis var. fuscoruber Forq. | 1890 (1889) | C. r. Assoc. Franç. Avancem. Sci. 18(2): 511 |
| Boletus pinophilus var. fuscoruber (Forq.) Cetto | 1987 | Enzyklopädie der Pilze 1: 529 |
| Boletus pinophilus f. fuscoruber (Forq.) Estadès & Lannoy | 2001 | Docums Mycol. 31 (no 121): 60 |
| Boletus pinophilus var. viridicaerulescens Estadès & Lannoy | 2001 | Docums Mycol. 31 (no 121): 60 |
| Boletus pinophilus f. frondosophilus Klofac & Krisai | 2018 | Österr. Z. Pilzk. 27: 262 |
Rozsah taxonu a omezení určování
Badania filogenetyczne Beugelsdijka i współpracowników z 2008 r. rozgraniczyły cztery europejskie linie ewolucyjne: Boletus pinophilus, Boletus edulis, Boletus aereus oraz Boletus reticulatus. Analiza sekwencji ITS1–5.8S–ITS2 oraz fragmentu genu Gapdh objęła matrycę o długości 1356 pozycji (860 dla ITS i 496 dla Gapdh), z których 96 stanowiło pozycje informatywne parsymonijnie. Test jednorodności partycji dał wynik P = 0,56. W uzyskanych drzewach filogenetycznych B. pinophilus tworzył odrębną linię siostrzaną względem B. edulis. Na poziomie badanych markerów nie stwierdzono zróżnicowania genetycznego na linii północ–południe.
[7]W analizie filogenetycznej z 2008 r. uwzględniono m.in. szwedzkie kolekcje B. pinophilus: okaz SvdL12 (numery GenBank: ITS EU417865, Gapdh EU417903) oraz okaz SvdL18 (ITS EU417866, Gapdh EU417902). Jako przypuszczalnego partnera mikoryzowego wskazano dla nich rodzaj Pinus.
[7]Skórka kapelusza charakteryzuje się grubą galaretowatą warstwą. Jej elementy końcowe osiągają do 27 µm szerokości. W ścianach komórkowych oraz w postaci inkrustacji występuje czerwonobrązowy pigment, który ulega rozpuszczeniu wodorotlenkiem potasu (KOH).
[7]- Zakres ujęcia taksonomicznego
Boletus pinophilus w odrębnym ujęciu wskazanego atlasu i zachowanych źródeł rekordu. Starsze nazwy i źródłowe oznaczenia pozostają zachowane; nie wykonano rewizji typów, sekwencji ani ponownej identyfikacji dawnych okazów. Dane gatunków podobnych nie są danymi tego taksonu.
[5]
Laboratorní diagnostika
Strukturované údaje
Pokožka klobouku
Výtrusy
Materiál a metody výzkumu
- Výsledky zaznamenané v pramenech — Délka výtrusu
- Materiał badania: B. pinophilus species synopsis; individual analysed collection unreported. 15,5–20 µm [5]
Materiał badania: B. pinophilus species synopsis; individual analysed collection unreported. 13–21 µm [1]
Materiał badania: B. pinophilus species synopsis; individual analysed collection unreported. 12–17 µm [6] - Výsledky zaznamenané v pramenech — Šířka výtrusu
- Materiał badania: B. pinophilus species synopsis; individual analysed collection unreported. 4–6 µm [6]
Materiał badania: B. pinophilus species synopsis; individual analysed collection unreported. 4,5–5,5 µm [5]
Materiał badania: B. pinophilus species synopsis; individual analysed collection unreported. 3,5–6,5 µm [1]
Metody i zapisy źródłowe — B. pinophilus species synopsis; individual analysed collection unreported.
Pochodzenie materiału: nieokreślona w źródle.
Identyfikacja kropli: nierozstrzygnięta.
Inkrustacja strzępek skórki; Barwa pigmentu skórki — zapis źródłowy: „Pigment czerwonobrązowy, ścienny i inkrustujący.” [7]
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „Końcowe elementy skórki do27µm w tabeli syntezy morfologicznej.” [7]
Metody i zapisy źródłowe — B. pinophilus species synopsis; individual analysed collection unreported.
Pochodzenie materiału: nieokreślona w źródle.
Identyfikacja kropli: nierozstrzygnięta.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Boletus pinophilus: spores 13.0–21.0 × 3.5–6.5 µm, ratio 2.7–4.3; pileipellis trichodermium, hyphae not incrusted.” [1]
Metody i zapisy źródłowe — B. pinophilus species synopsis; individual analysed collection unreported.
Pochodzenie materiału: nieokreślona w źródle.
Identyfikacja kropli: nierozstrzygnięta.
Krople wewnątrz zarodnika — zapis źródłowy: „W zarodnikach obecne krople; liczba i podłoże preparatu niewskazane.” [5]
Długość zarodnika — zapis źródłowy: „Zarodniki15.5–20µm; atlas polski.” [5]
Kształt zarodnika — zapis źródłowy: „Cylindryczno-elipsoidalne; atlas polski.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Zarodniki gładkie w źródle polskim.” [5]
Szerokość zarodnika — zapis źródłowy: „Zarodniki4.5–5.5µm; atlas polski.” [5]
Metody i zapisy źródłowe — B. pinophilus species synopsis; individual analysed collection unreported.
Pochodzenie materiału: nieokreślona w źródle.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika — zapis źródłowy: „Zarodniki12–17µm; atlas czeski.” [6]
Szerokość zarodnika — zapis źródłowy: „Zarodniki4–6µm; atlas czeski.” [6]
Ověření výskytu — rozsah a omezení
Materiał: Udokumentowana obserwacja z województwa łódzkiego; nie użyto daty zbioru jako sezonu.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[5]Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje dořešení.
- Vazby dřívějších zjištění vyžadují opětovnou kontrolu.
- Nové zdroje vyžadují vypořádání informací zjištěných během rešerše.
Nejdůležitější látky a jejich účinek
Badania składu biochemicznego dojrzałych owocników zebranych w 2017 r. w pobliżu Bataku w bułgarskich Rodopach Zachodnich (Dospatliev i wsp., 2023) objęły analizę podstawowych składników odżywczych, profilu lipidowego oraz pierwiastków w porównaniu z pieprznikiem jadalnym (Cantharellus cibarius) i lejkkowcem dętym (Craterellus cornucopioides).
[8]Analizy laboratoryjne obejmowały standaryzowane metody badania żywności, spektrometrię absorpcji atomowej (AAS) oraz ICP do oznaczania pierwiastków, a także chromatografię gazową (GC) dla kwasów tłuszczowych i steroli oraz rozdział chromatograficzny ze spektrofotometrią dla fosfolipidów. Wyniki opracowano statystycznie za pomocą analizy wariancji ANOVA i testu Duncana (p < 0,05).
[8]Podstawowy skład chemiczny owocników borowika sosnowego z Rodopów:
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| Woda | 90,4 ± 1,22 | % | świeża masa | 3 | b |
| Tłuszcz surowy | 4,42 ± 0,07 | % | sucha masa | 3 | a |
| Białko ogólne | 22,82 ± 0,59 | % | sucha masa | 3 | a |
| Węglowodany ogółem | 66,81 ± 0,63 | % | sucha masa | 3 | b |
| Cukry rozpuszczalne | 6,98 ± 0,16 | % | sucha masa | 3 | a |
| Skrobia | 18,25 ± 0,11 | % | sucha masa | 3 | a |
| Włókno surowe | 7,49 ± 0,04 | % | sucha masa | 3 | a |
| Popiół | 5,95 ± 0,09 | % | sucha masa | 3 | a |
| Energia ogółem | 1687,23 ± 0,53 | kJ/100 g | sucha masa | 3 | a |
Zawartość makro- i mikroelementów oraz metali w suchej masie owocników (mg/kg s.m.):
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| N | 36517,33 ± 945,43 | mg/kg | sucha masa | 15 | a |
| P | 7347,93 ± 807,51 | mg/kg | sucha masa | 15 | a |
| K | 30555,6 ± 2735,73 | mg/kg | sucha masa | 15 | a |
| Na | 94,75 ± 23,57 | mg/kg | sucha masa | 15 | a |
| Ca | 256,96 ± 50,86 | mg/kg | sucha masa | 15 | a |
| Mg | 647,26 ± 98,79 | mg/kg | sucha masa | 15 | a |
| Fe | 98,42 ± 32,56 | mg/kg | sucha masa | 15 | a |
| Pb | 0,58 ± 0,29 | mg/kg | sucha masa | 15 | a |
| Cd | 0,61 ± 0,21 | mg/kg | sucha masa | 15 | a |
| Ni | 0,59 ± 0,11 | mg/kg | sucha masa | 15 | a |
| Mn | 10,42 ± 1,57 | mg/kg | sucha masa | 15 | a |
| Co | 0,26 ± 0,08 | mg/kg | sucha masa | 15 | a |
| Cu | 23,67 ± 6,15 | mg/kg | sucha masa | 15 | a |
| Zn | 69,01 ± 6,29 | mg/kg | sucha masa | 15 | a |
Zawartość głównych frakcji lipidowych:
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| Substancje niezmydlające się | 10,1 ± 0,2 | % | frakcja oleju glicerydowego | 3 | a |
| Substancje niezmydlające się | 0,5 ± 0,01 | % | suchy ekstrakt według opisu autorów | 3 | a |
| Sterole ogółem | 7,3 ± 0,3 | % | frakcja oleju glicerydowego | 3 | a |
| Sterole ogółem | 0,3 ± 0,01 | % | suchy ekstrakt według opisu autorów | 3 | a |
| Fosfolipidy ogółem | 9,3 ± 0,4 | % | frakcja oleju glicerydowego | 3 | a |
| Fosfolipidy ogółem | 0,4 ± 0,02 | % | suchy ekstrakt według opisu autorów | 3 | a |
Profil kwasów tłuszczowych we frakcji triacylogliceroli (TAG):
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| Kwas dekanowy C10:0 | 0,1 ± 0,05 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas laurynowy C12:0 | 0,1 ± 0,02 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas tridekanowy C13:0 | nie zidentyfikowano | % | profil kwasów tłuszczowych frakcji TAG | 3 | — |
| Kwas mirystynowy C14:0 | 0,2 ± 0,05 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas pentadekanowy C15:0 | 0,2 ± 0,03 | % | profil kwasów tłuszczowych frakcji TAG | 3 | b |
| Kwas palmitynowy C16:0 | 14,6 ± 0,2 | % | profil kwasów tłuszczowych frakcji TAG | 3 | c |
| Kwas palmitooleinowy C16:1 | 0,5 ± 0,03 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas heptadekanowy C17:0 | 0,2 ± 0,02 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas heptadecenowy C17:1 | 0,1 ± 0,01 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas stearynowy C18:0 | 4,2 ± 0,2 | % | profil kwasów tłuszczowych frakcji TAG | 3 | c |
| Kwas oleinowy C18:1 | 52,6 ± 0,5 | % | profil kwasów tłuszczowych frakcji TAG | 3 | b |
| Kwas linolowy C18:2 | 25,8 ± 0,6 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas linolenowy C18:3 | 0,8 ± 0,1 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas eikozanowy C20:0 | 0,4 ± 0,1 | % | profil kwasów tłuszczowych frakcji TAG | 3 | b |
| Kwas eikozadienowy C20:2 | 0,2 ± 0,05 | % | profil kwasów tłuszczowych frakcji TAG | 3 | a |
| Kwas arachidonowy C20:4 | nie zidentyfikowano | % | profil kwasów tłuszczowych frakcji TAG | 3 | — |
| Kwas behenowy C22:0 | nie zidentyfikowano | % | profil kwasów tłuszczowych frakcji TAG | 3 | — |
Skład frakcji steroli (udział w całkowitej sumie steroli):
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| Cholesterol | 4 ± 0,2 | % | suma steroli | 3 | a |
| Brassikasterol | 0,9 ± 0,1 | % | suma steroli | 3 | c |
| Kampesterol | 5,7 ± 0,1 | % | suma steroli | 3 | a |
| Stigmasterol | 15,2 ± 0,3 | % | suma steroli | 3 | b |
| Ergosterol | 66,8 ± 0,5 | % | suma steroli | 3 | b |
| β-sitosterol | 6,1 ± 0,1 | % | suma steroli | 3 | b |
| Δ5-awenasterol | 0,5 ± 0,1 | % | suma steroli | 3 | a |
| Δ7-stigmasterol | 0,8 ± 0,1 | % | suma steroli | 3 | a |
Skład frakcji fosfolipidów (udział w całkowitej sumie fosfolipidów):
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| Lizofosfatydylocholina | 8,9 ± 0,2 | % | suma fosfolipidów | 3 | a |
| Lizofosfatydyloetanoloamina | 8,1 ± 0,2 | % | suma fosfolipidów | 3 | a |
| Sfingomielina | 9,9 ± 0,1 | % | suma fosfolipidów | 3 | b |
| Fosfatydyloinozytol | 8,9 ± 0,1 | % | suma fosfolipidów | 3 | c |
| Fosfatydylocholina | 8,8 ± 0,2 | % | suma fosfolipidów | 3 | a |
| Fosfatydyloetanoloamina | 14 ± 0,3 | % | suma fosfolipidów | 3 | b |
| Monofosfatydyloglicerol | nie zidentyfikowano | % | suma fosfolipidów | 3 | — |
| Difosfatydyloglicerol | 8,3 ± 0,1 | % | suma fosfolipidów | 3 | a |
| Kwasy fosfatydowe | 33,1 ± 0,5 | % | suma fosfolipidów | 3 | a |
Udział wybranych kwasów tłuszczowych w poszczególnych frakcjach lipidowych:
| Składnik | Wynik | Jednostka | Mianownik | n w tabeli | Litera porównania |
|---|---|---|---|---|---|
| Jednonienasycone kwasy tłuszczowe TAG | 53,2 | % | frakcja kwasów tłuszczowych TAG | nie podano | — |
| Wielonienasycone kwasy tłuszczowe TAG | 26,8 | % | frakcja kwasów tłuszczowych TAG | nie podano | — |
| Kwas oleinowy PI | 40,6 | % | frakcja kwasów tłuszczowych PI | nie podano | — |
| Kwas palmitynowy PI | 36,1 | % | frakcja kwasów tłuszczowych PI | nie podano | — |
| Kwas stearynowy PI | 11,5 | % | frakcja kwasów tłuszczowych PI | nie podano | — |
| Kwas linolowy PI | 6,4 | % | frakcja kwasów tłuszczowych PI | nie podano | — |
| Nasycone kwasy tłuszczowe PI | 51,2 | % | frakcja kwasów tłuszczowych PI | nie podano | — |
| Nasycone kwasy tłuszczowe PE | 55,0 | % | frakcja kwasów tłuszczowych PE | nie podano | — |
W analizie głównych składowych (PCA) profile lipidowe charakteryzowały się wyjaśnieniem 68% zmienności przez pierwszą oś oraz 32% przez drugą oś. Sterole stanowiły około 72% frakcji niezmydlającej się. We frakcjach fosfolipidowych odnotowano wzrost udziału kwasu palmitynowego w szeregu PC < PI < PA < PE (p < 0,05), któremu towarzyszył spadek udziału kwasu oleinowego z 40,6% do 25,8%.
[8]Wyniki badań biochemicznych charakteryzują profil odżywczy owocników z bułgarskich Rodopów i potwierdzają ich wysokie walory konsumpcyjne.
[8]Analiza substancji lotnych świeżych owocników B. pinophilus zebranych w listopadzie 2013 r. w Beypınar (Turcja, prowincja Kırklareli, 733 m n.p.m.) przeprowadzona metodą chromatografii gazowej sprzężonej ze spektrometrią mas (GC-MS) pozwoliła na identyfikację związków tworzących profil zapachowy grzyba w porównaniu z B. edulis. Udziały poszczególnych substancji wyrażono jako procent powierzchni pików w całkowitym prądzie jonowym (TIC).
[10] [11]Skład frakcji lotnej świeżych owocników B. pinophilus według analizy GC-MS:
| Przypisanie w publikacji | Udział TIC, % | RT w tabeli | RI w tabeli |
|---|---|---|---|
| 2-Propenoic acid | 1,95 | 2.147 | 685 |
| 1,3-Octadiene | 1,75 | 2.438 | 988 |
| 2-Fluoro-5-trifluoromethylbenzoic acid, propyl ester | nd | 3.010 | 847 |
| 4-Penten-2-ol, 4 methyl | nd | 3.996 | 973 |
| Hexanal | 0,47 | 4.008 | 801 |
| Tricosanoic acid | 0,18 | 4.656 | 2731 |
| D-Norpropoxyphene | nd | 6.091 | 2240 |
| 1-Chloro-decane | 0,11 | 6.190 | 1250 |
| 3-Methyl-1-butanol | 0,7 | 6.459 | 736 |
| 1,2-Ethanedithiol | nd | 6.511 | 746 |
| 3-Octanone | 7,43 | 6.617 | 983 |
| Octanal | 0,37 | 7.200 | 1075 |
| 1-Octen-3-one | 5,8 | 7.544 | 956 |
| 2-Chloro-pentane | 0,35 | 7.749 | 1331 |
| 1-Hepten-3-one | nd | 8.233 | 1465 |
| Formic acid, ethenyl ester | nd | 8.420 | 989 |
| Octen-1-ol, acetate | nd | 8.851 | 1110 |
| Nonanal | 0,16 | 9.178 | 1106 |
| (E)-2-Octenal | 6,79 | 9.412 | 1151 |
| 5-Methyl-1-heptanol | 0,3 | 9.452 | 1053 |
| Benzene, 1,4-dichloro | nd | 10.048 | 839 |
| 3-Flouro-benzenamine | 0,39 | 10.106 | 1026 |
| Cyclooctanone | 0,2 | 10.229 | 746 |
| Phosphonic acid, methyl-, dioctyl ester | nd | 10.287 | 1165 |
| Isoprophyl5,11-dihydroxy-3,7,11trimethyl-2-dodecenoate | nd | 10.474 | 1334 |
| 1-Octen-3-ol | 55,97 | 10.777 | 998 |
| 1,7,7-Trimethyl-heptane-2-one | 2,04 | 11.378 | 1031 |
| 2,4-Octadienal | 0,14 | 12.294 | 1653 |
| 2-Octen-1-ol | 13,55 | 14.027 | 1610 |
| 4-(Benzoylmethyl)-6-methyl-2H-1,4-benzoxazin-3-one | nd | 15.037 | — |
| 4-Hexenoic acid, 6-hydroxy-4-methyl-, methyl ester | nd | 15.235 | 480 |
| 1,1,1,5,5,5-Hexafluoro-4-oxo-2-pentene-2-amine | nd | 15.626 | — |
| 1,2-Dimethyl-3,5-diphenyl-1H-Pyrazolium | nd | 16.140 | — |
| Cyclohexanemethyl propanoate | 0,1 | 22.173 | 744 |
| 3-Methyl-1-octyn-3-ol | 0,22 | 22.290 | 942 |
| 3-Methyl-3-hexanethiol | 0,46 | 22.833 | 988 |
| Pentanoic acid | 0,16 | 23.195 | 927 |
Głównymi składnikami aromatu były: 1-octen-3-ol (55,97%), 2-octen-1-ol (13,55%), 3-octanone (7,43%), (E)-2-octenal (6,79%) oraz 1-octen-3-one (5,80%). W tabeli 2 publikacji z 2015 r. zamieniono wartości 5,80 i 6,79 przypisane dwóm ostatnim związkom, lecz tabela 1, abstrakt i opis wyników podają wartości zgodne z zestawieniem. Do pozostałych zidentyfikowanych związków należały m.in. 1,7,7-trimethylheptan-2-one (2,04%), 2-propenoic acid (1,95%) oraz 1,3-octadiene (1,75%).
[10]Wyraźna dominacja alifatycznych związków ośmiowęglowych (C8) odpowiada za typowy, intensywny grzybowy aromat świeżego owocnika borowika sosnowego.
[10]Stanoviště a výskyt
Stanoviště, oblast a sezóna
Borowik sosnowy jest grzybem ektomikoryzowym związanym przede wszystkim z sosnami, zwłaszcza z sosną zwyczajną (Pinus sylvestris). Występuje na glebach ubogich, kwaśnych i piaszczystych, wyrastając bezpośrednio z ziemi. W runie towarzyszą mu często śmiałek pognieciony (Deschampsia flexuosa) oraz chrobotki (Cladonia).
[4] [5] [7]W Czechach owocniki pojawiają się od maja przez całe lato i jesień, niekiedy aż do listopada przy sprzyjających warunkach termicznych. Wcześniejsze opracowania Piláta z 1973 r. podawały przedział od maja do września. Lokalnie grzyb ten bywa liczny, choć w wielu rejonach pozostaje rzadki lub w ogóle nie występuje.
[4] [6]Zestawienie wybranych europejskich stanowisk i kolekcji badawczych:
| Miejsce | Data podana w źródle | Rodzaj zapisu |
|---|---|---|
| Czechy, Bělá koło Semil | 14 V 1950 | Nejdlová; typ PR608363; bór sosnowy |
| Czechy, Konstantinovy Lázně | 3 VII 1963 | A. Pilát; czysty bór sosnowy; figura 1 w opisie z 1973 r. |
| Polska, Łódzkie, Pawlikowice 2 km NW, DD95 | 14 X 2017 | GRej 307426; Beata Łyszkowska; 1 owocnik z ziemi; las mieszany |
| Polska, Łódzkie, Pawlikowice 2 km NW, DD95 | 14 X 2018 | GRej 320351; Beata Łyszkowska; 2 sąsiadujące owocniki; las mieszany |
| Polska, Mazowieckie, Osówiec Szlachecki 1 km N, EC25 | 13 IX 2020 | GRej 335617; Romuald Tomaszewski; 2 owocniki z ziemi; nasadzenie sosnowe |
| Czechy, Plzeňský kraj | 18 VIII 2023 | CMS0066-2023-0246 |
| Czechy, Plzeňský kraj | 17 VIII 2023 | CMS0071-2023-0086 |
| Czechy, Středočeský kraj | 21 V 2022 | CMS0087-2022-0076 |
| Czechy, Jihočeský kraj | 27 IX 2020 | CMS0071-2020-0247 |
| Czechy, Plzeňský kraj | 5 IX 2020 | CMS0071-2020-0189 |
| Czechy, Vysočina | 27 IX 2018 | CMS0066-2018-0113 |
| Finlandia, Salo, Tuohittu, Tuohitunnummi | 30 IX 2020 | Jukka Vauras; 2 owocniki; GBIF 3441186229 / FinBIF JX.1160813#20 |
| Bułgaria, Batak, zachodnie Rodopy | 2017 | Materiał badań biochemicznych; 41°46′02,6″N 24°08′48,4″E |
| Turcja, Beypınar, Kırklareli, Marmara | XI 2013 | Materiał analizy aromatu; 41°48′35″N 27°33′33″E; 733 m n.p.m. |
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Polsko | Lodžské vojvodství | VI–IX |
|
Zdroje
- B. pinophilus — species account, Boris Assyov
- Species Fungorum: Boletus pinophilus Pilát & Dermek, record 309751, current synonymy
- Index Fungorum: Boletus pinophilus, name record 309751
- Pilát A. (1973). Boletus pinophilus nomen novum pro Boletum pinicolam (Vittadini 1835) Venturi 1863. Česká Mykologie 27(1): 6–8.
- Snowarski M. Atlas grzybów Polski: Boletus pinophilus (borowik sosnowy). Page generated 2026-09-01; content changed 2025-10-19.
- Tejkal K. Česká mykologická společnost: Boletus pinophilus — hřib borový.
- Beugelsdijk D.C.M. et al. (2008). A phylogenetic study of Boletus section Boletus in Europe. Persoonia20:1–7. DOI 10.3767/003158508X283692.
- Dospatliev L., Petkova Z., Antova G., Angelova-Romova M., Ivanova M., Mustafa S. (2023). Proximate composition of wild edible mushrooms from the Batak Mountain, Bulgaria. JMBFS12(6):e4718. DOI 10.55251/jmbfs.4718.
- FinBIF / Atlas of Finnish Fungi via GBIF occurrence3441186229; Jukka Vauras; occurrence http://tun.fi/JX.1160813#20.
- Bozok F., Zarifikhosroshahi M., Kafkas E., Taşkın H., Büyükalaca S. (2015). Comparison of Volatile Compounds of Fresh Boletus edulis and B.pinophilus in Marmara Region of Turkey. NBHA43(1): 192–195. DOI 10.15835/nbha4319731.
- NBHA publisher metadata for Bozok et al. 2015, article9731