
Jadalny

Ustaw lokalizację, żeby zobaczyć dane dla swojego regionu.


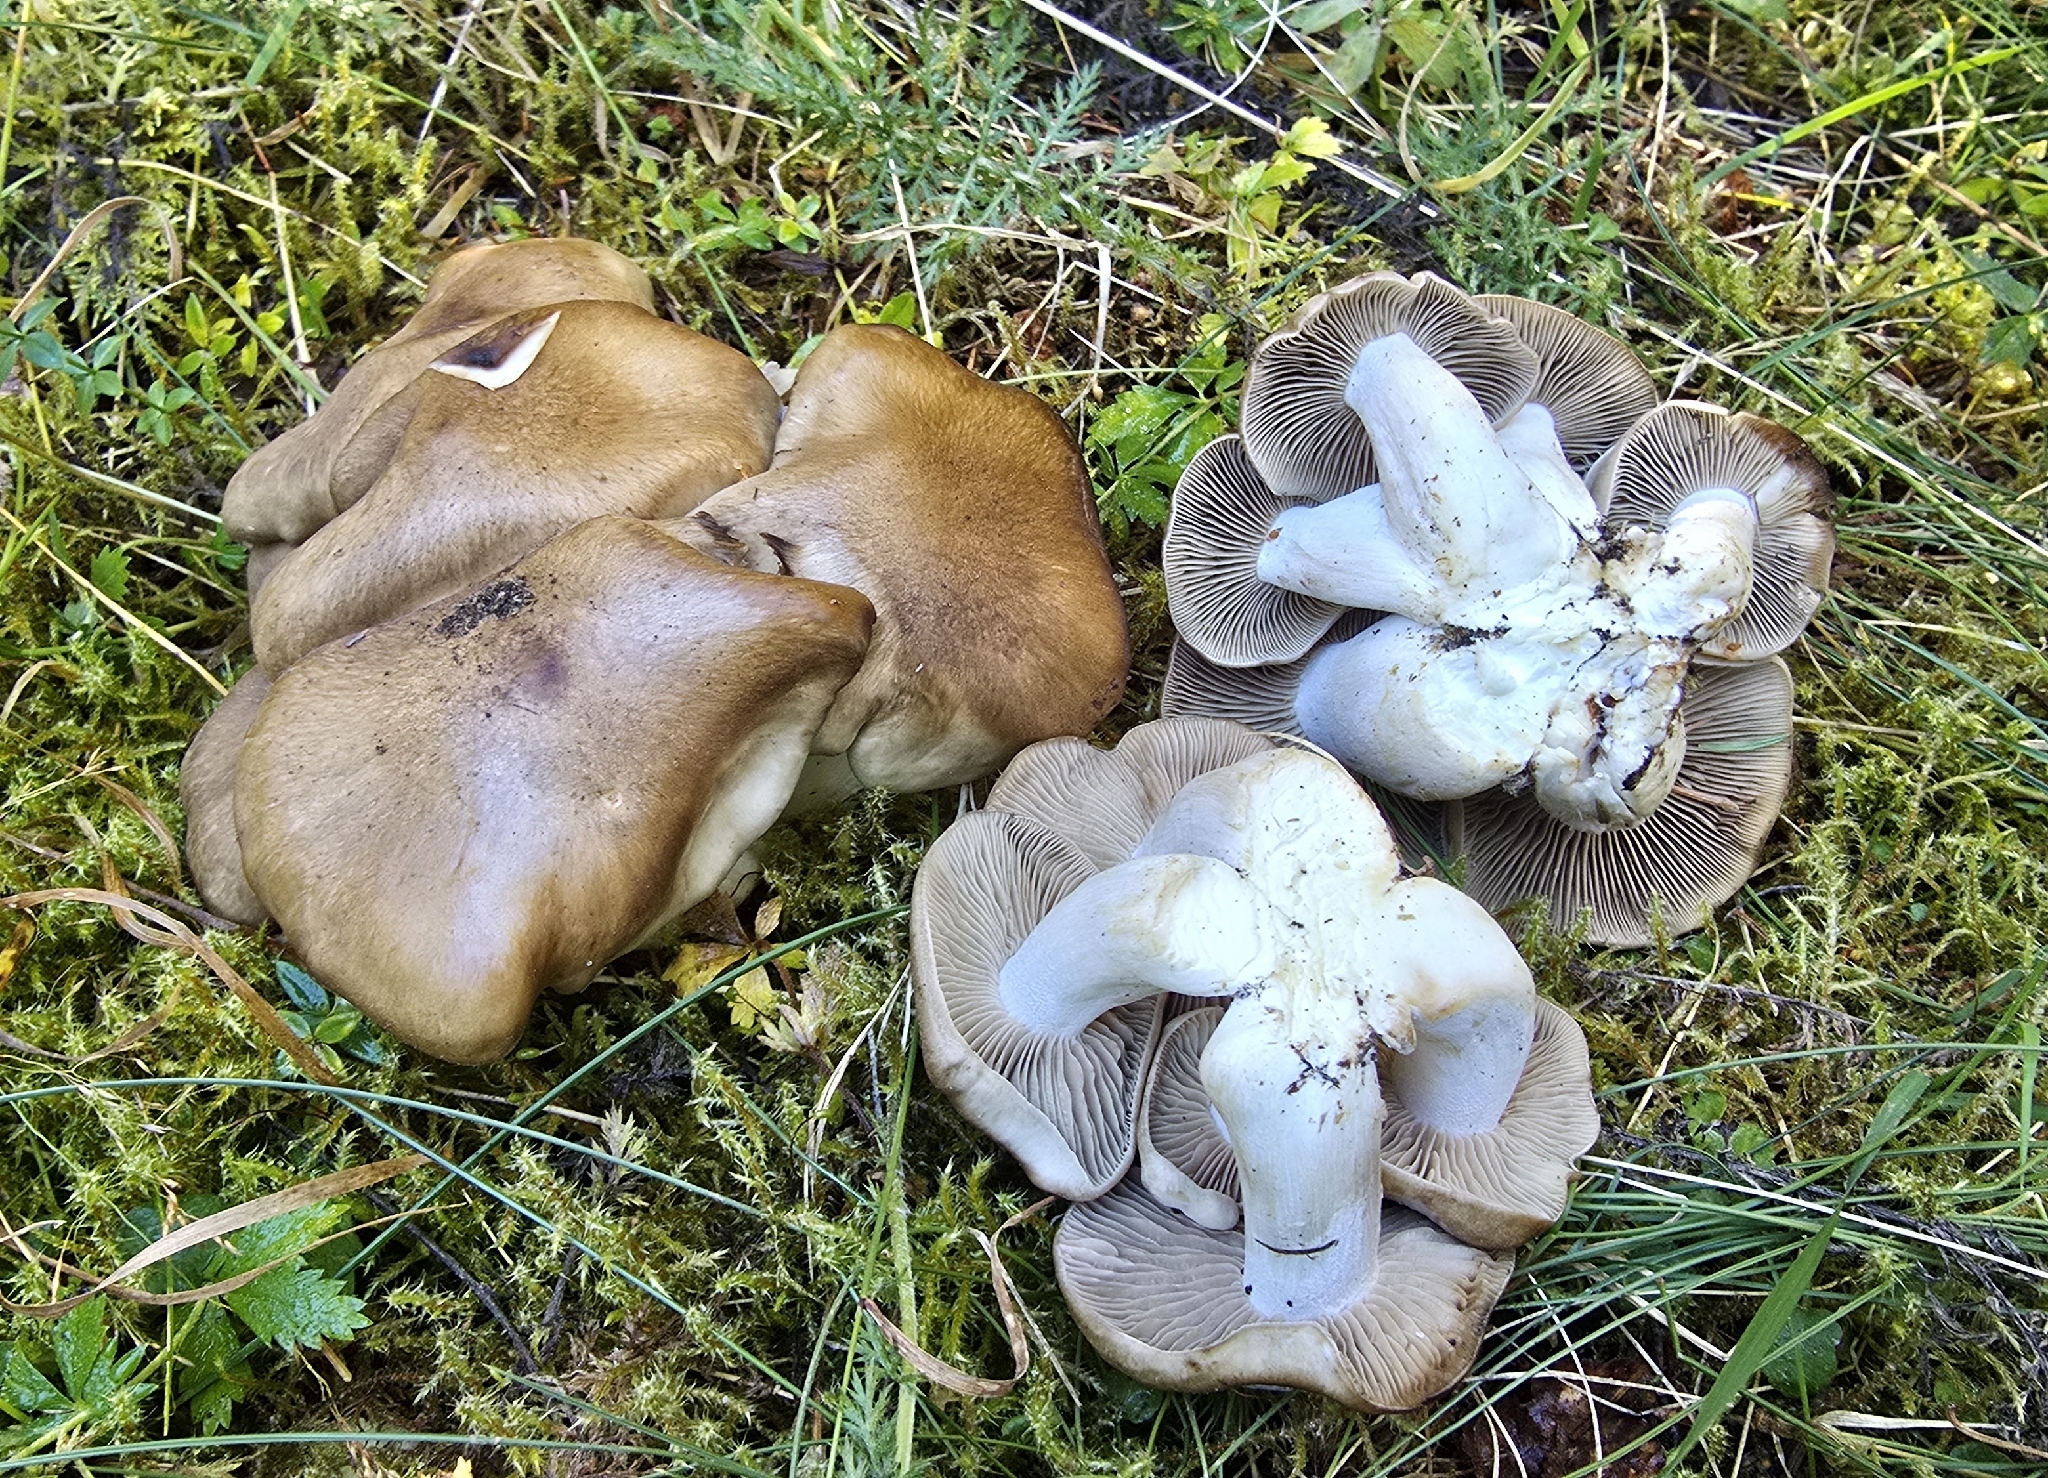
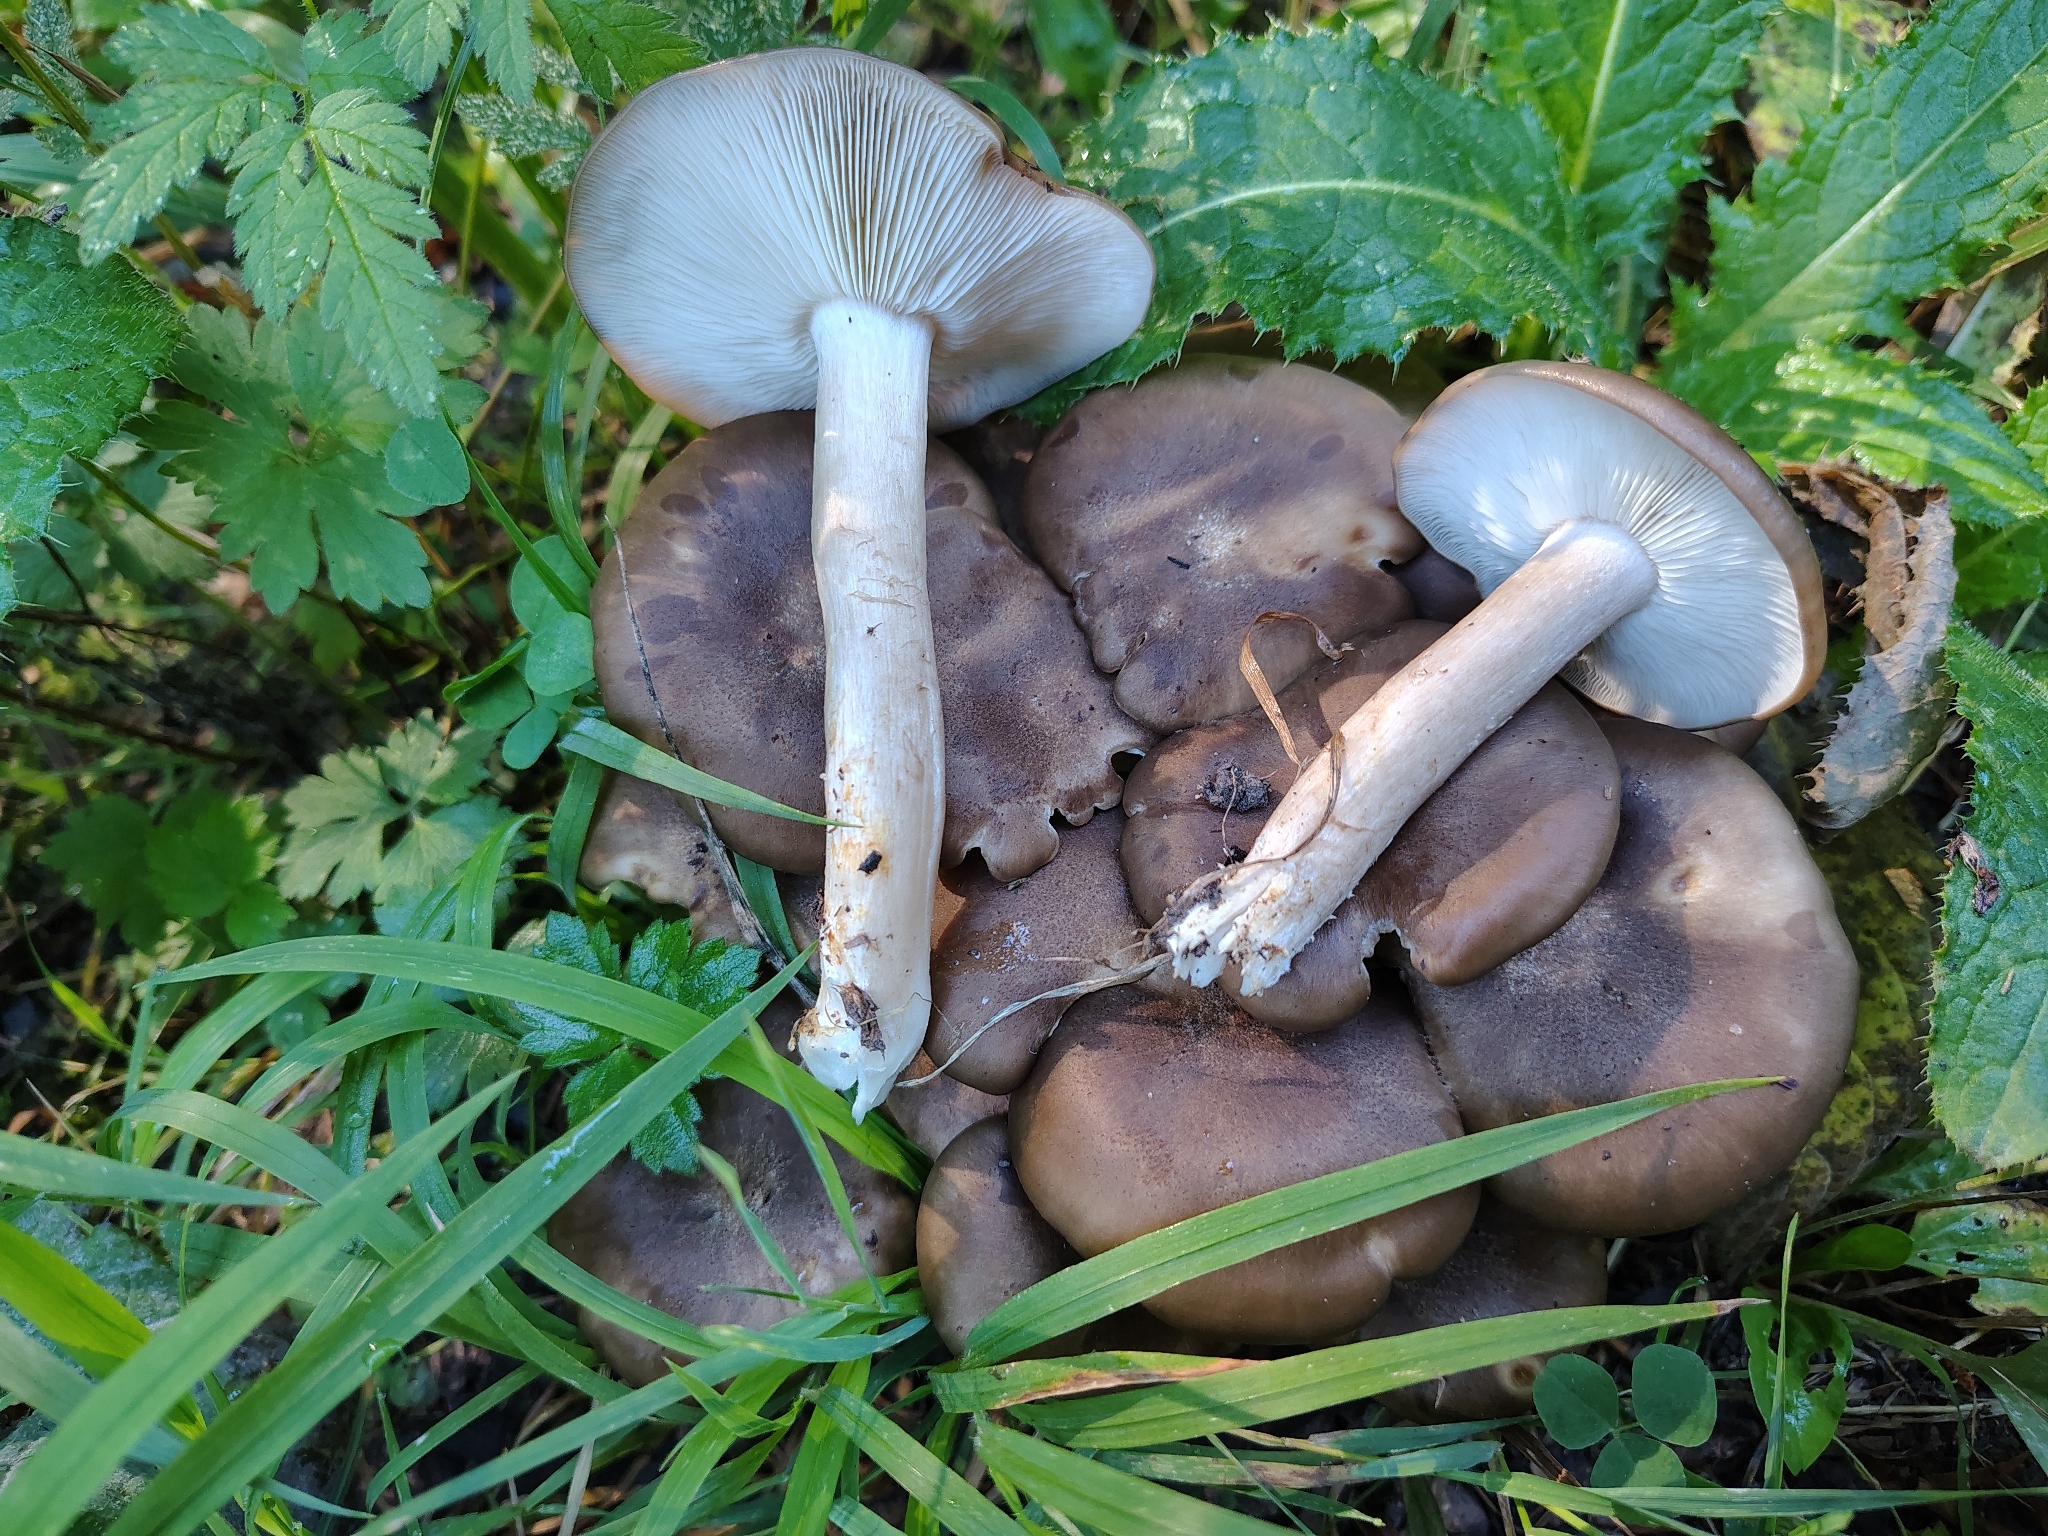
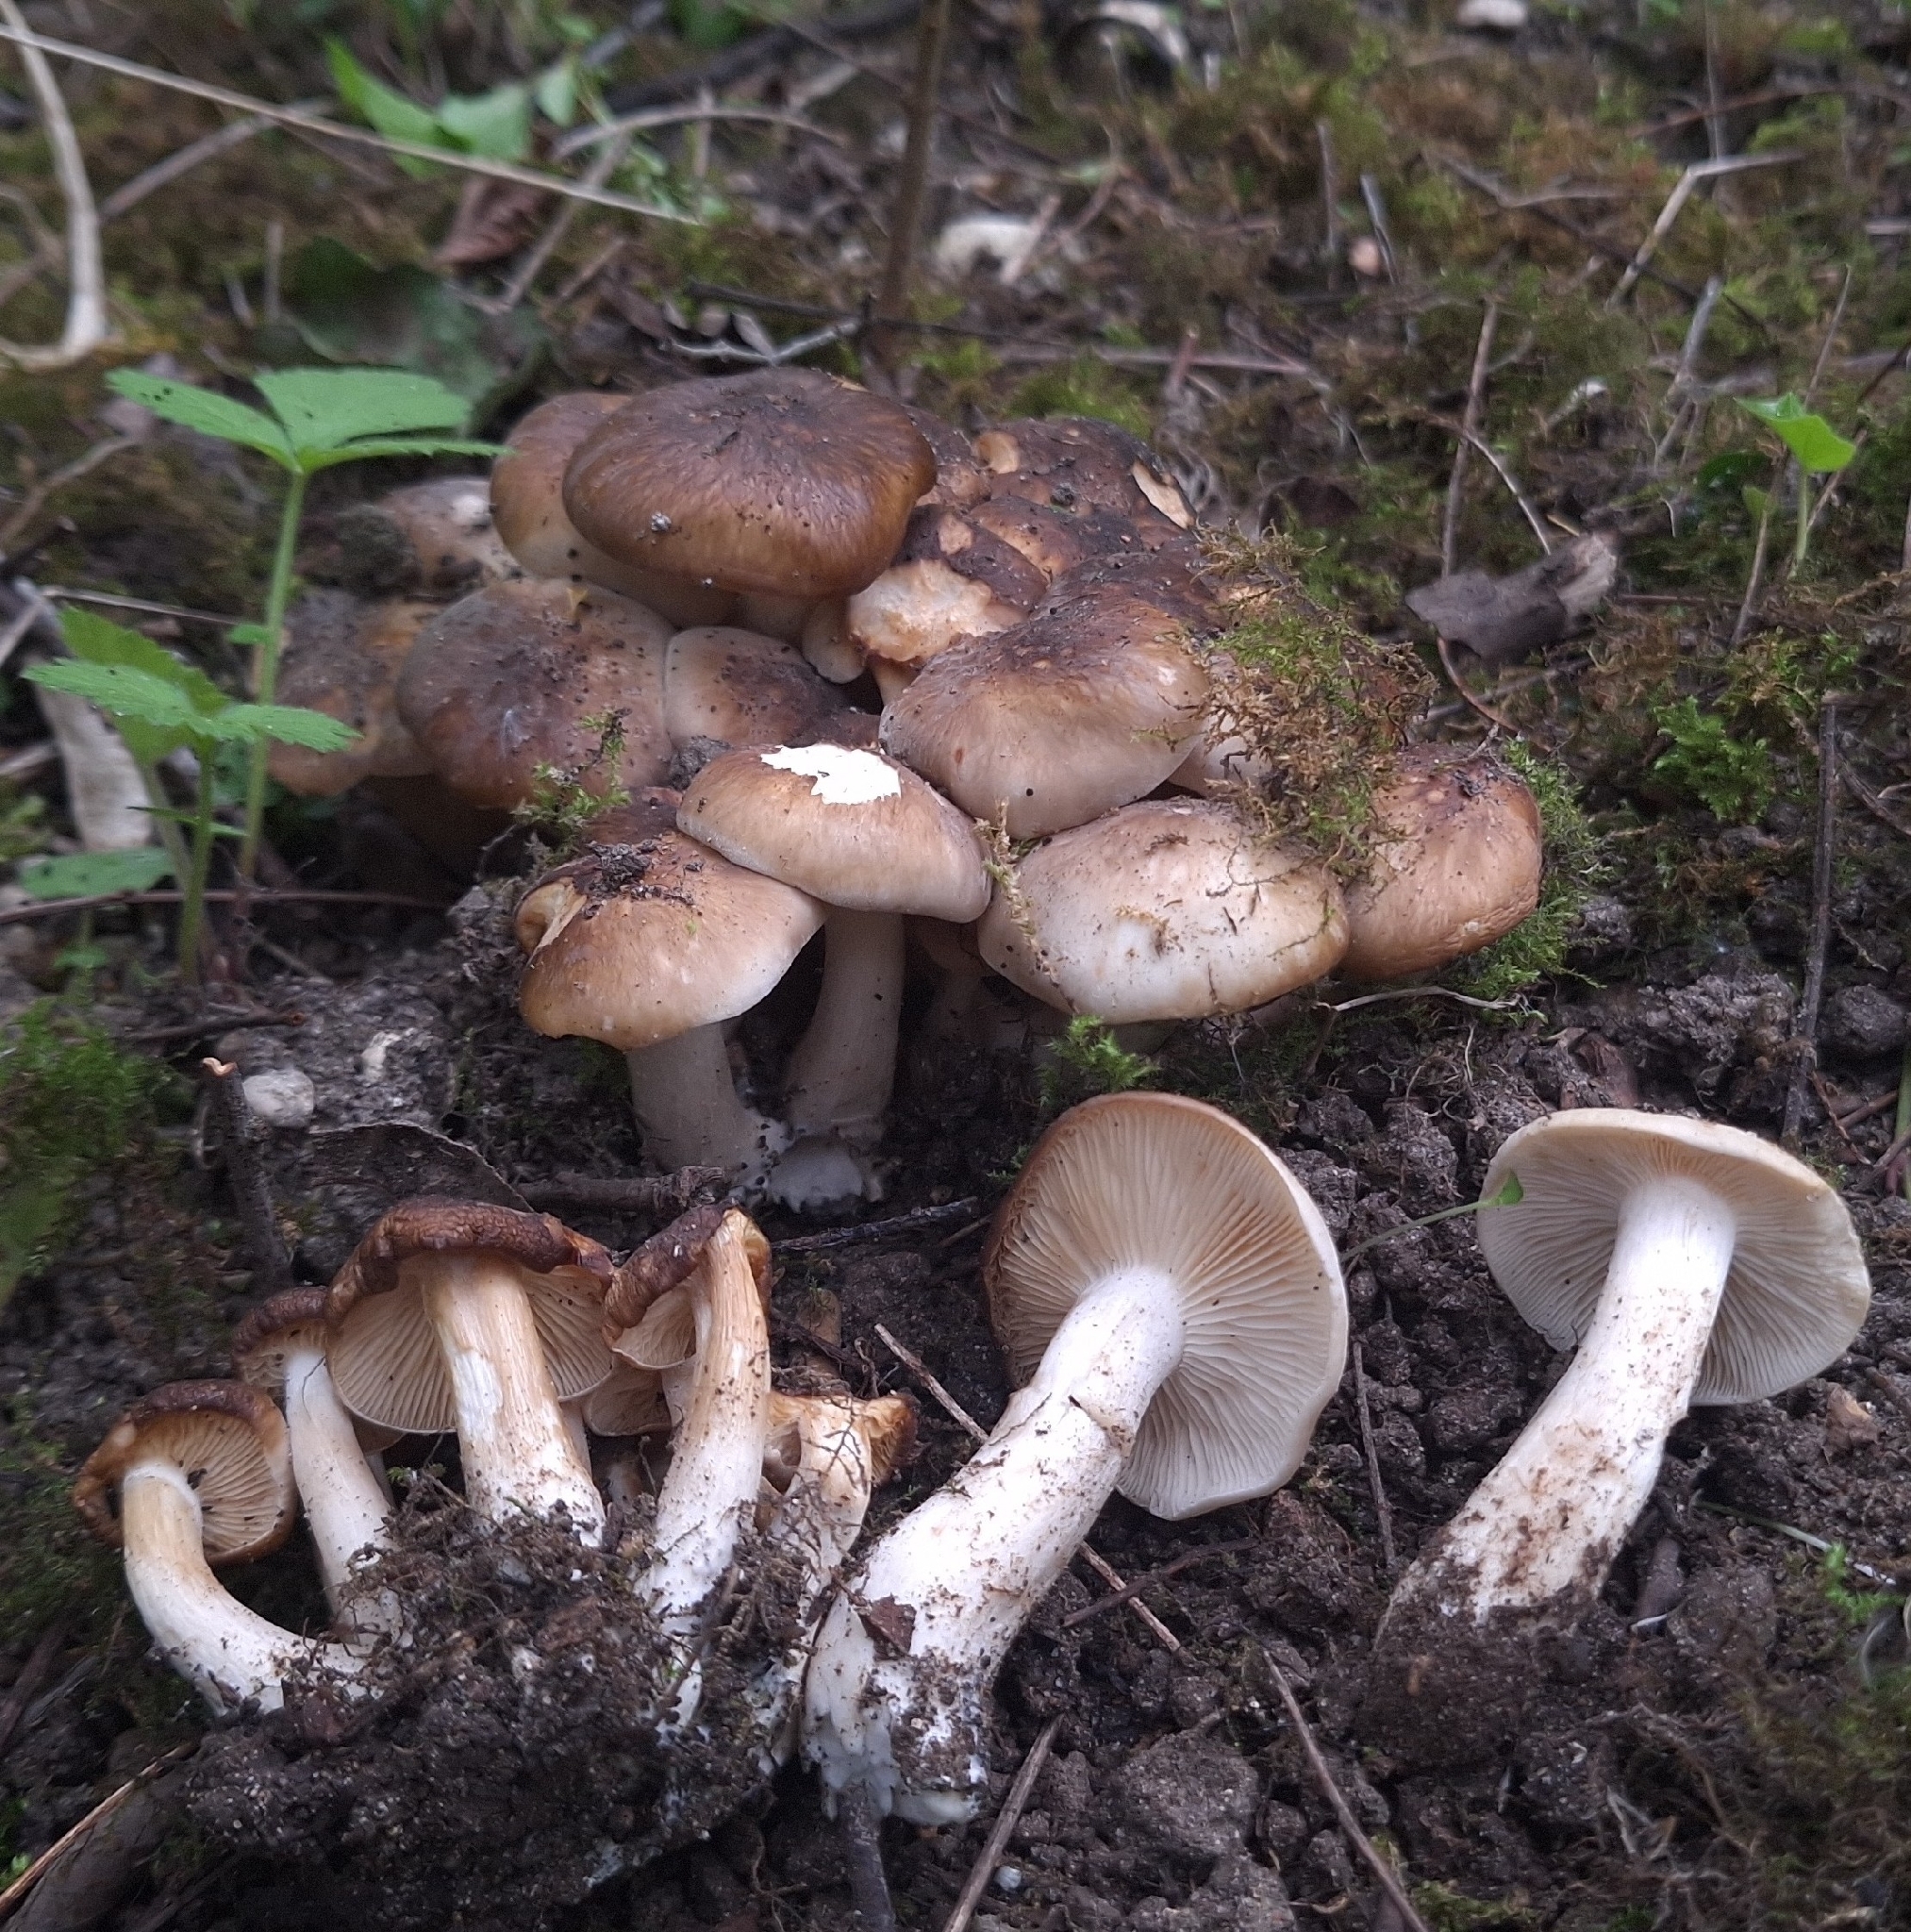
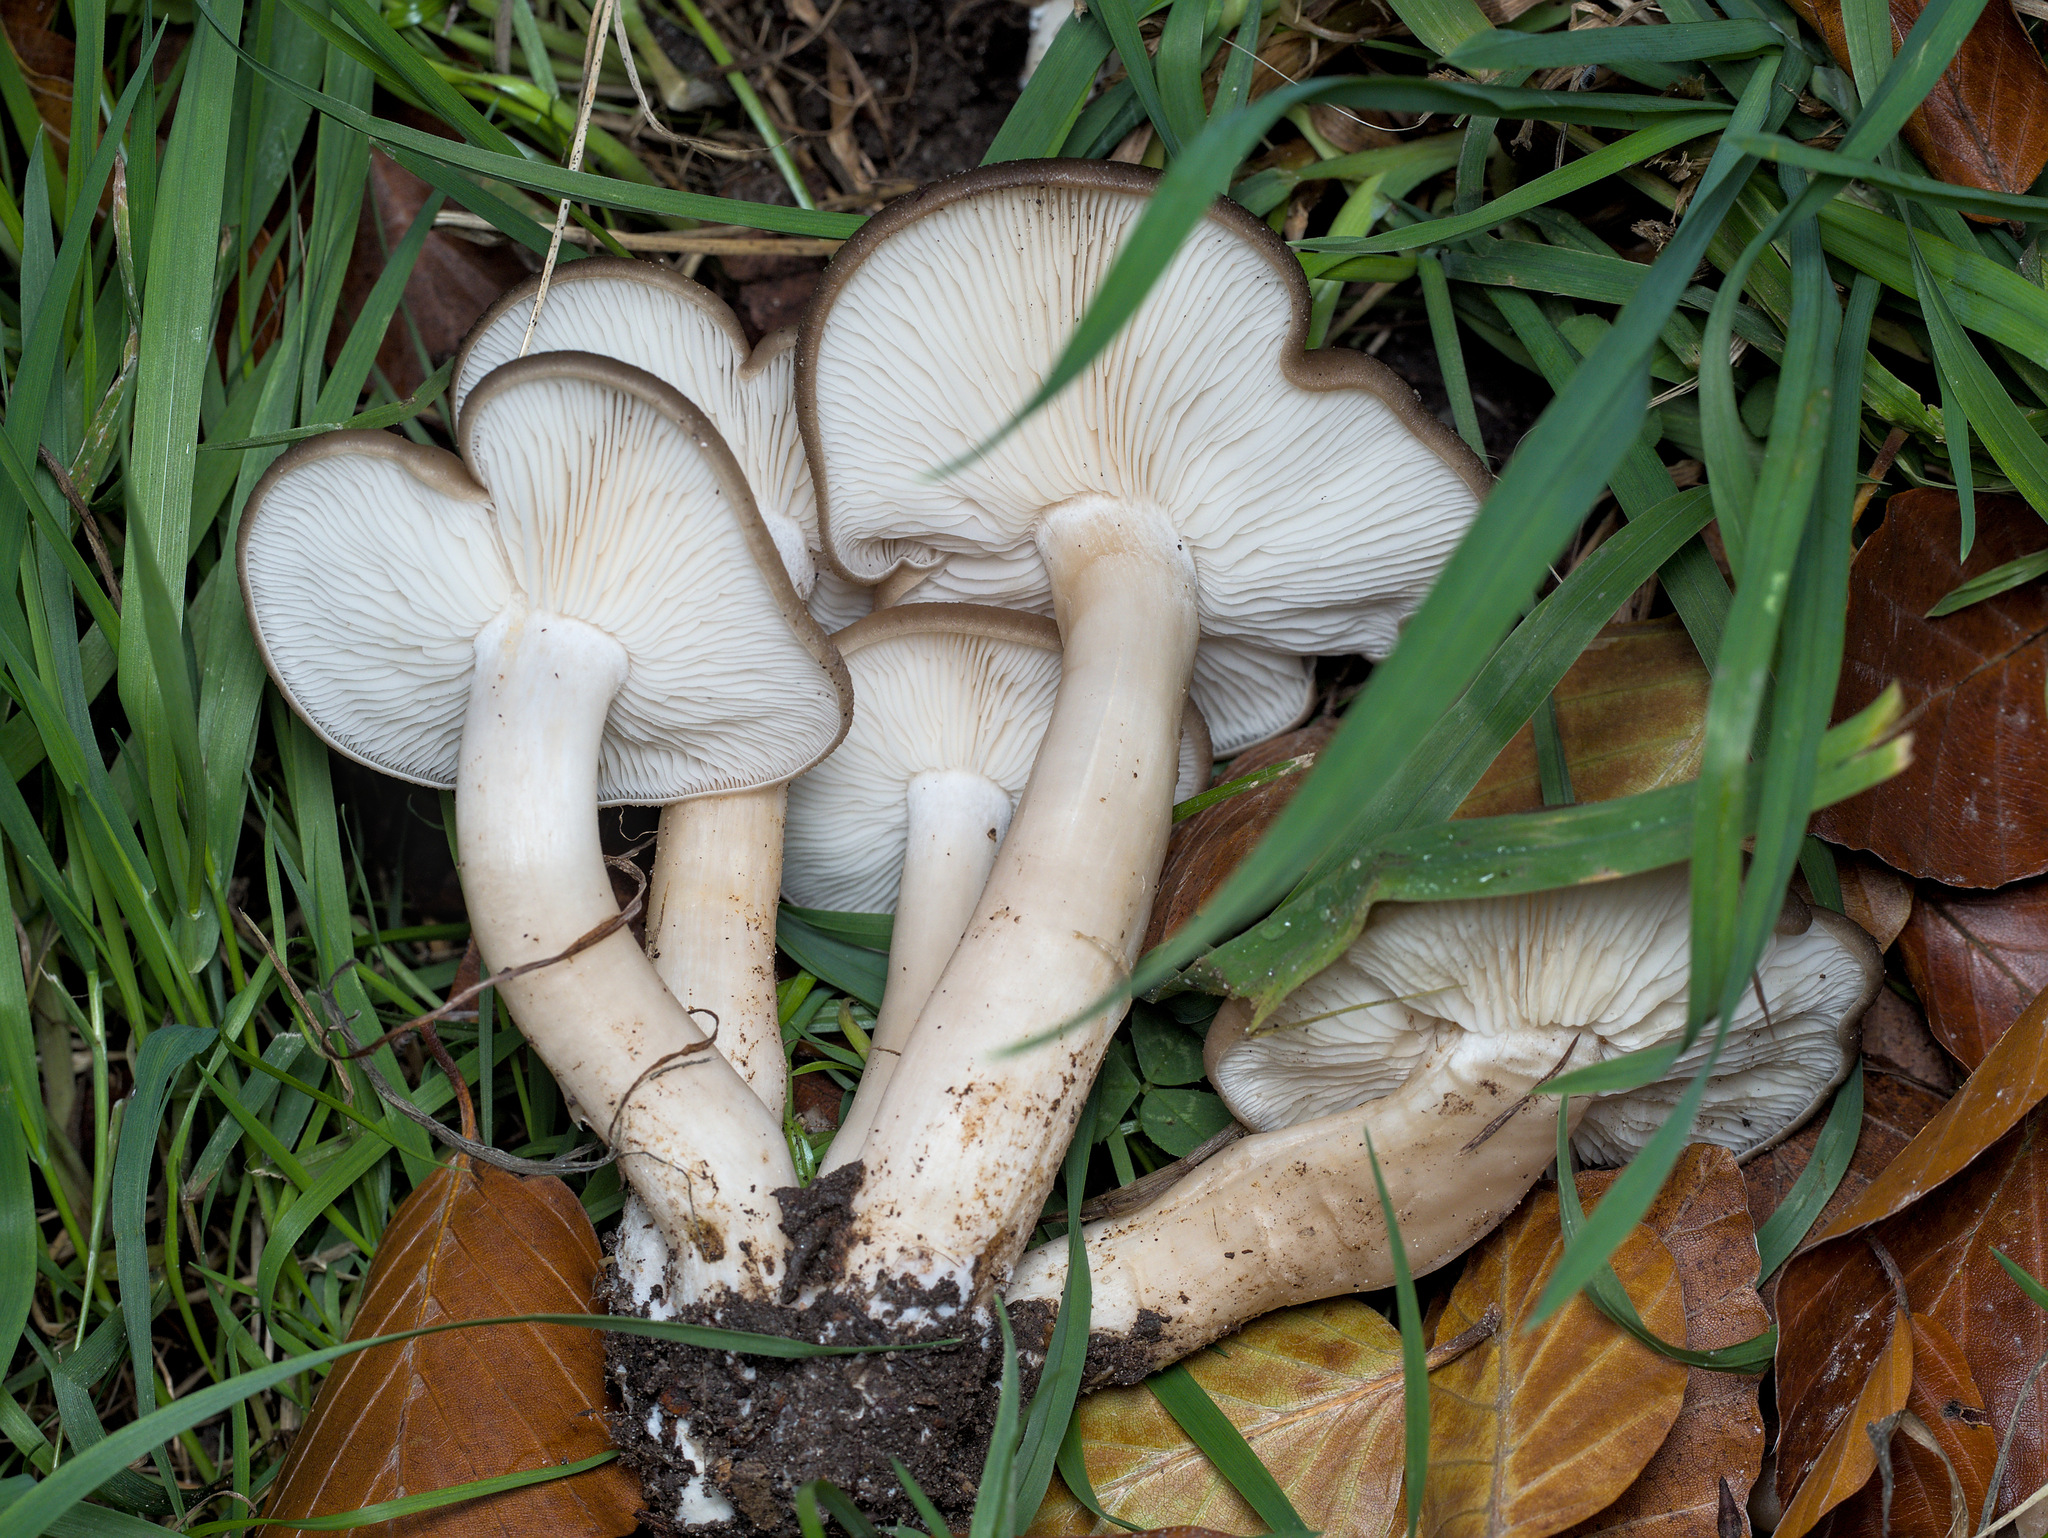
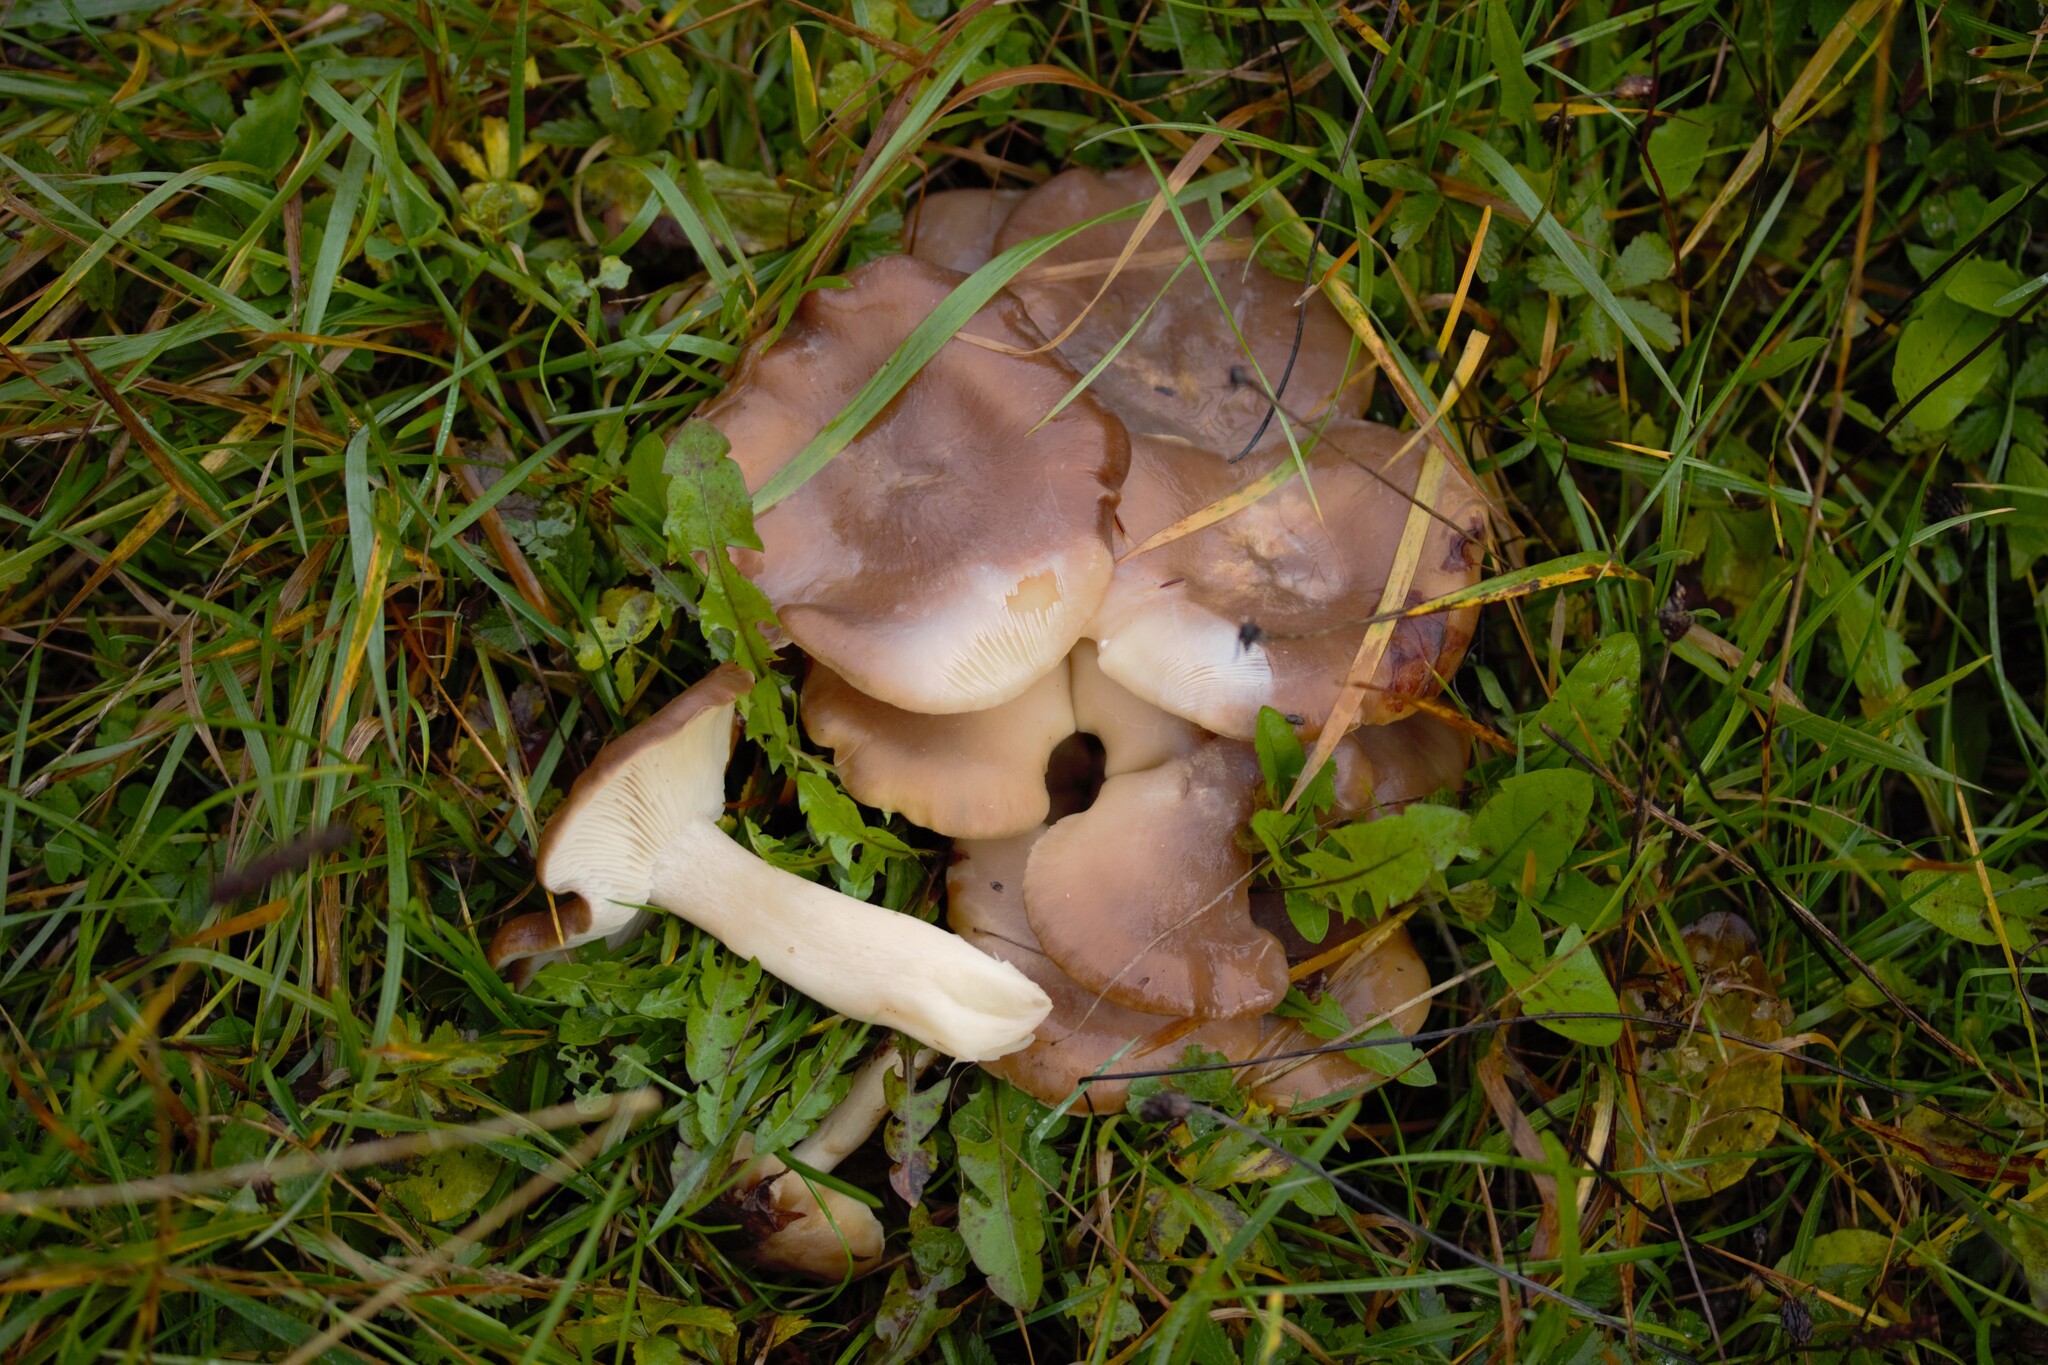
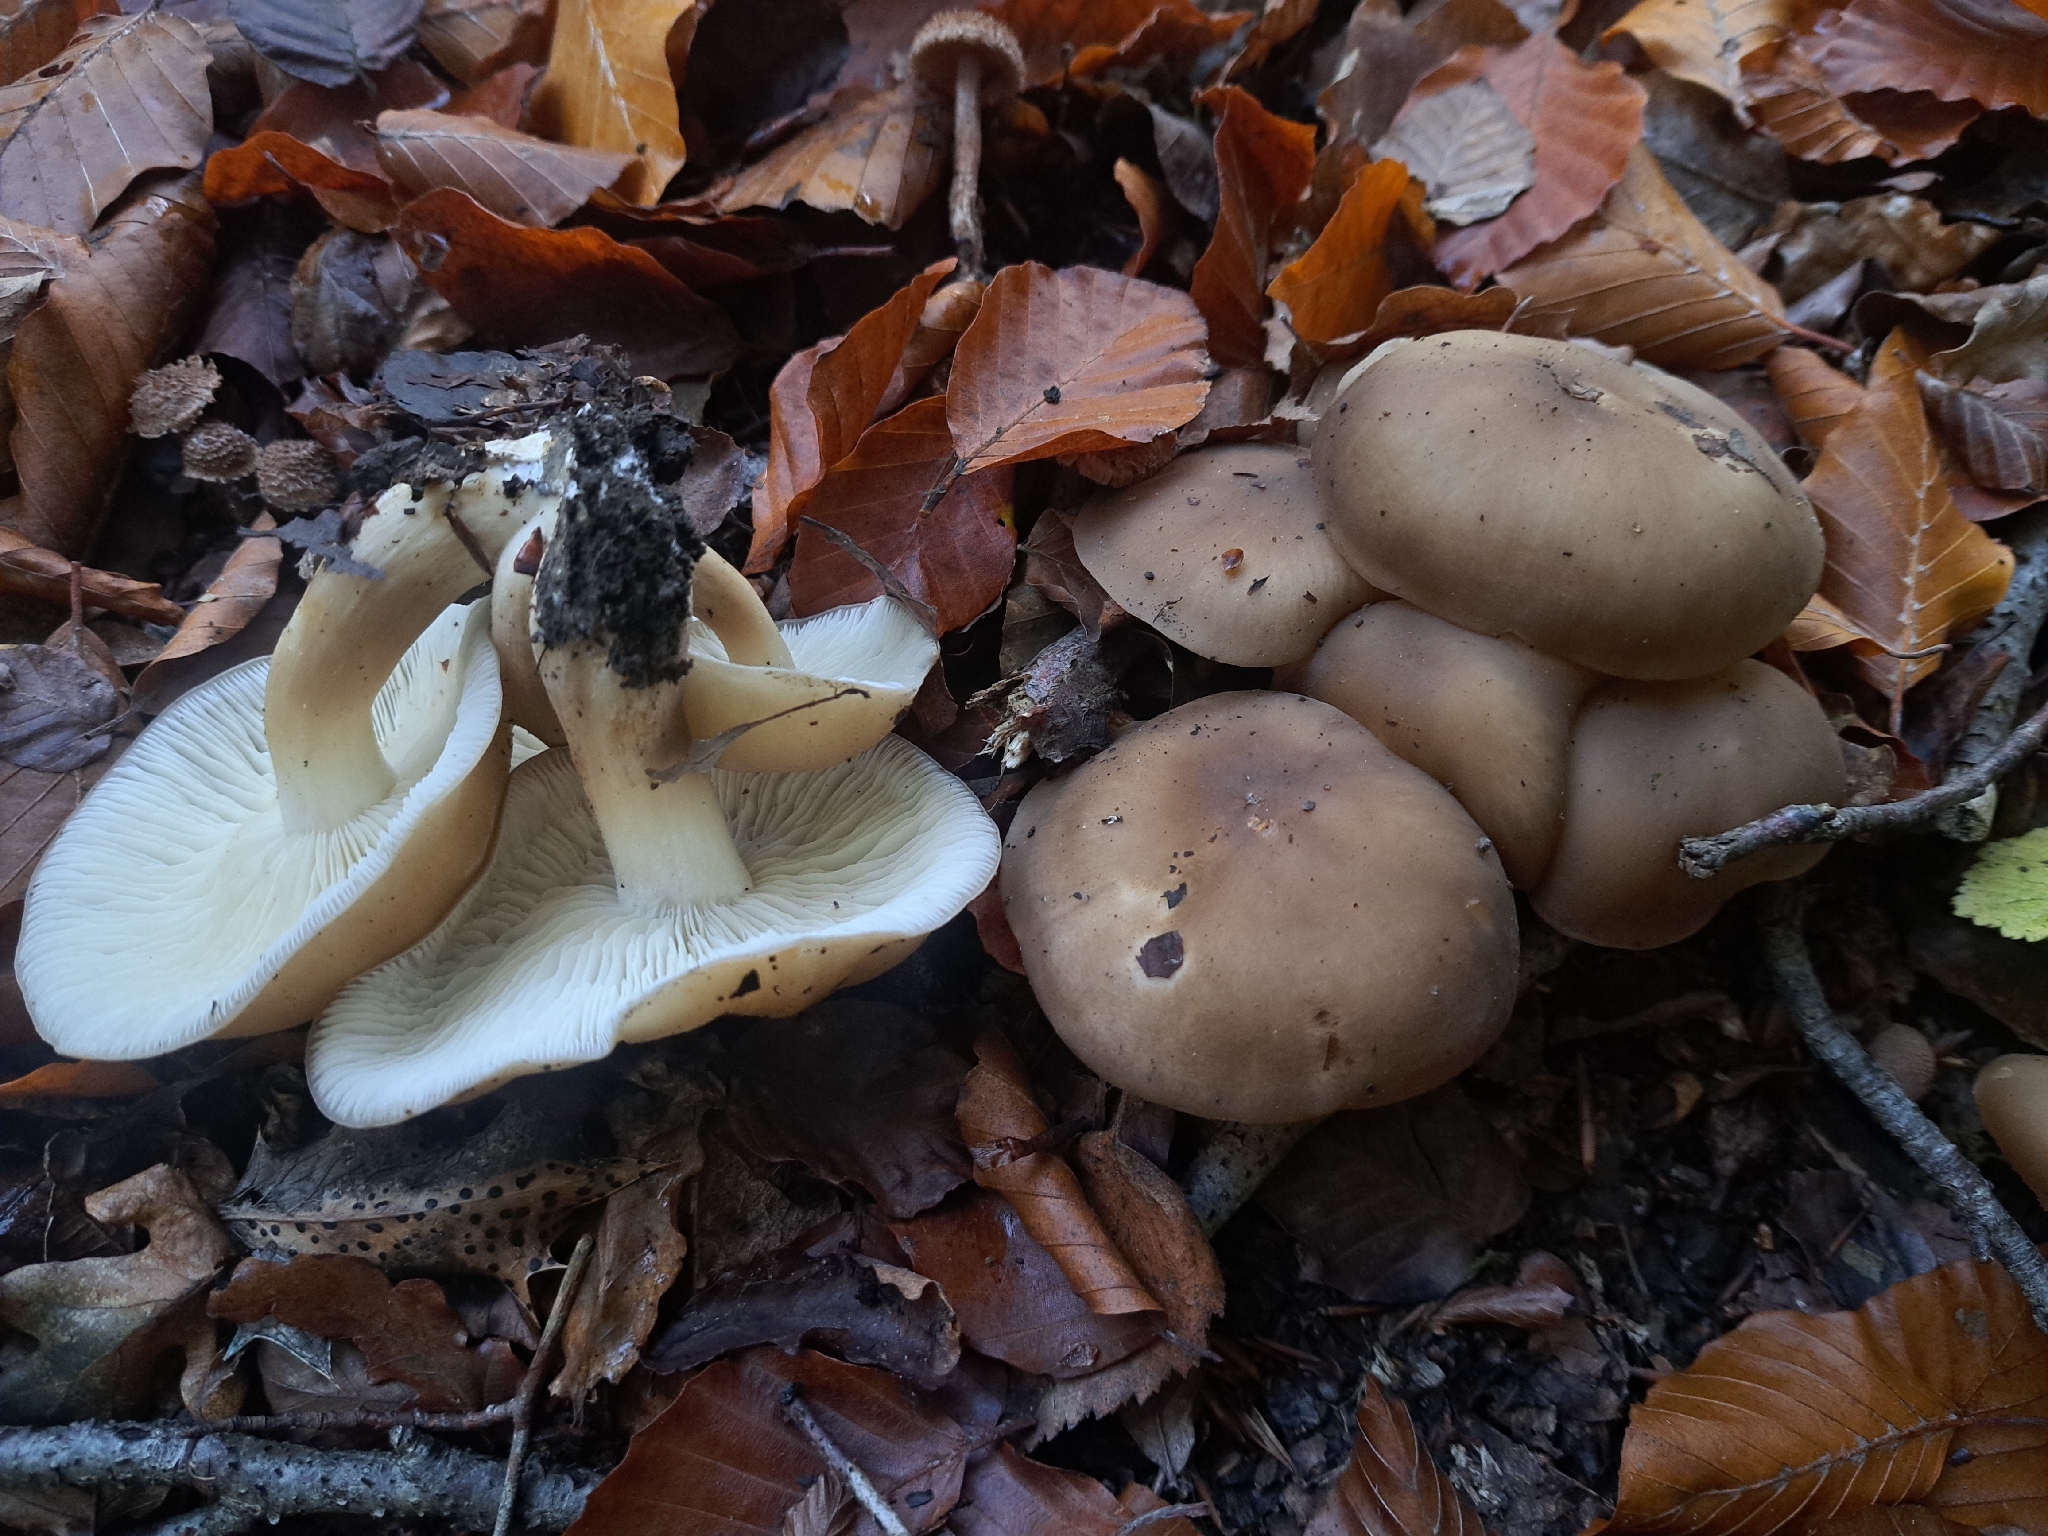
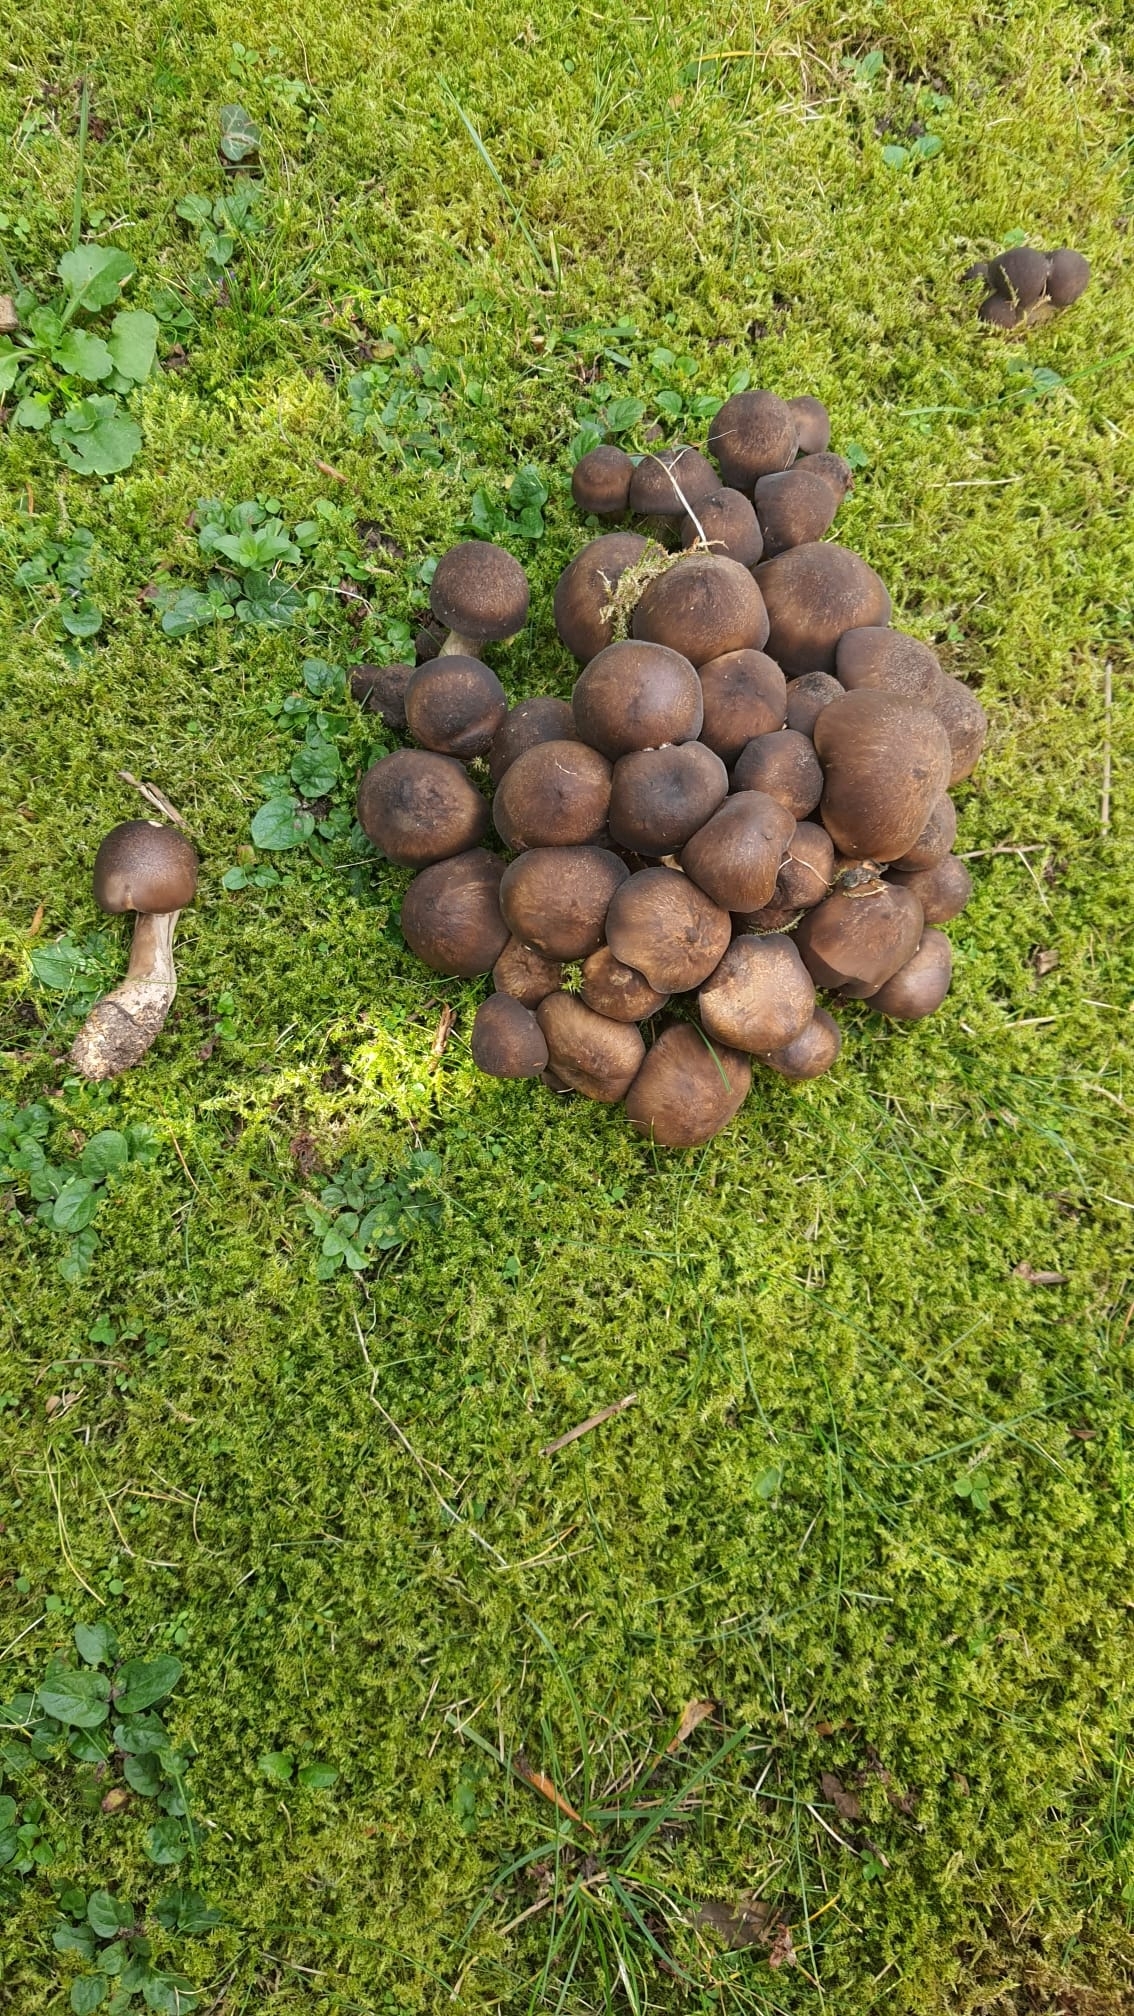
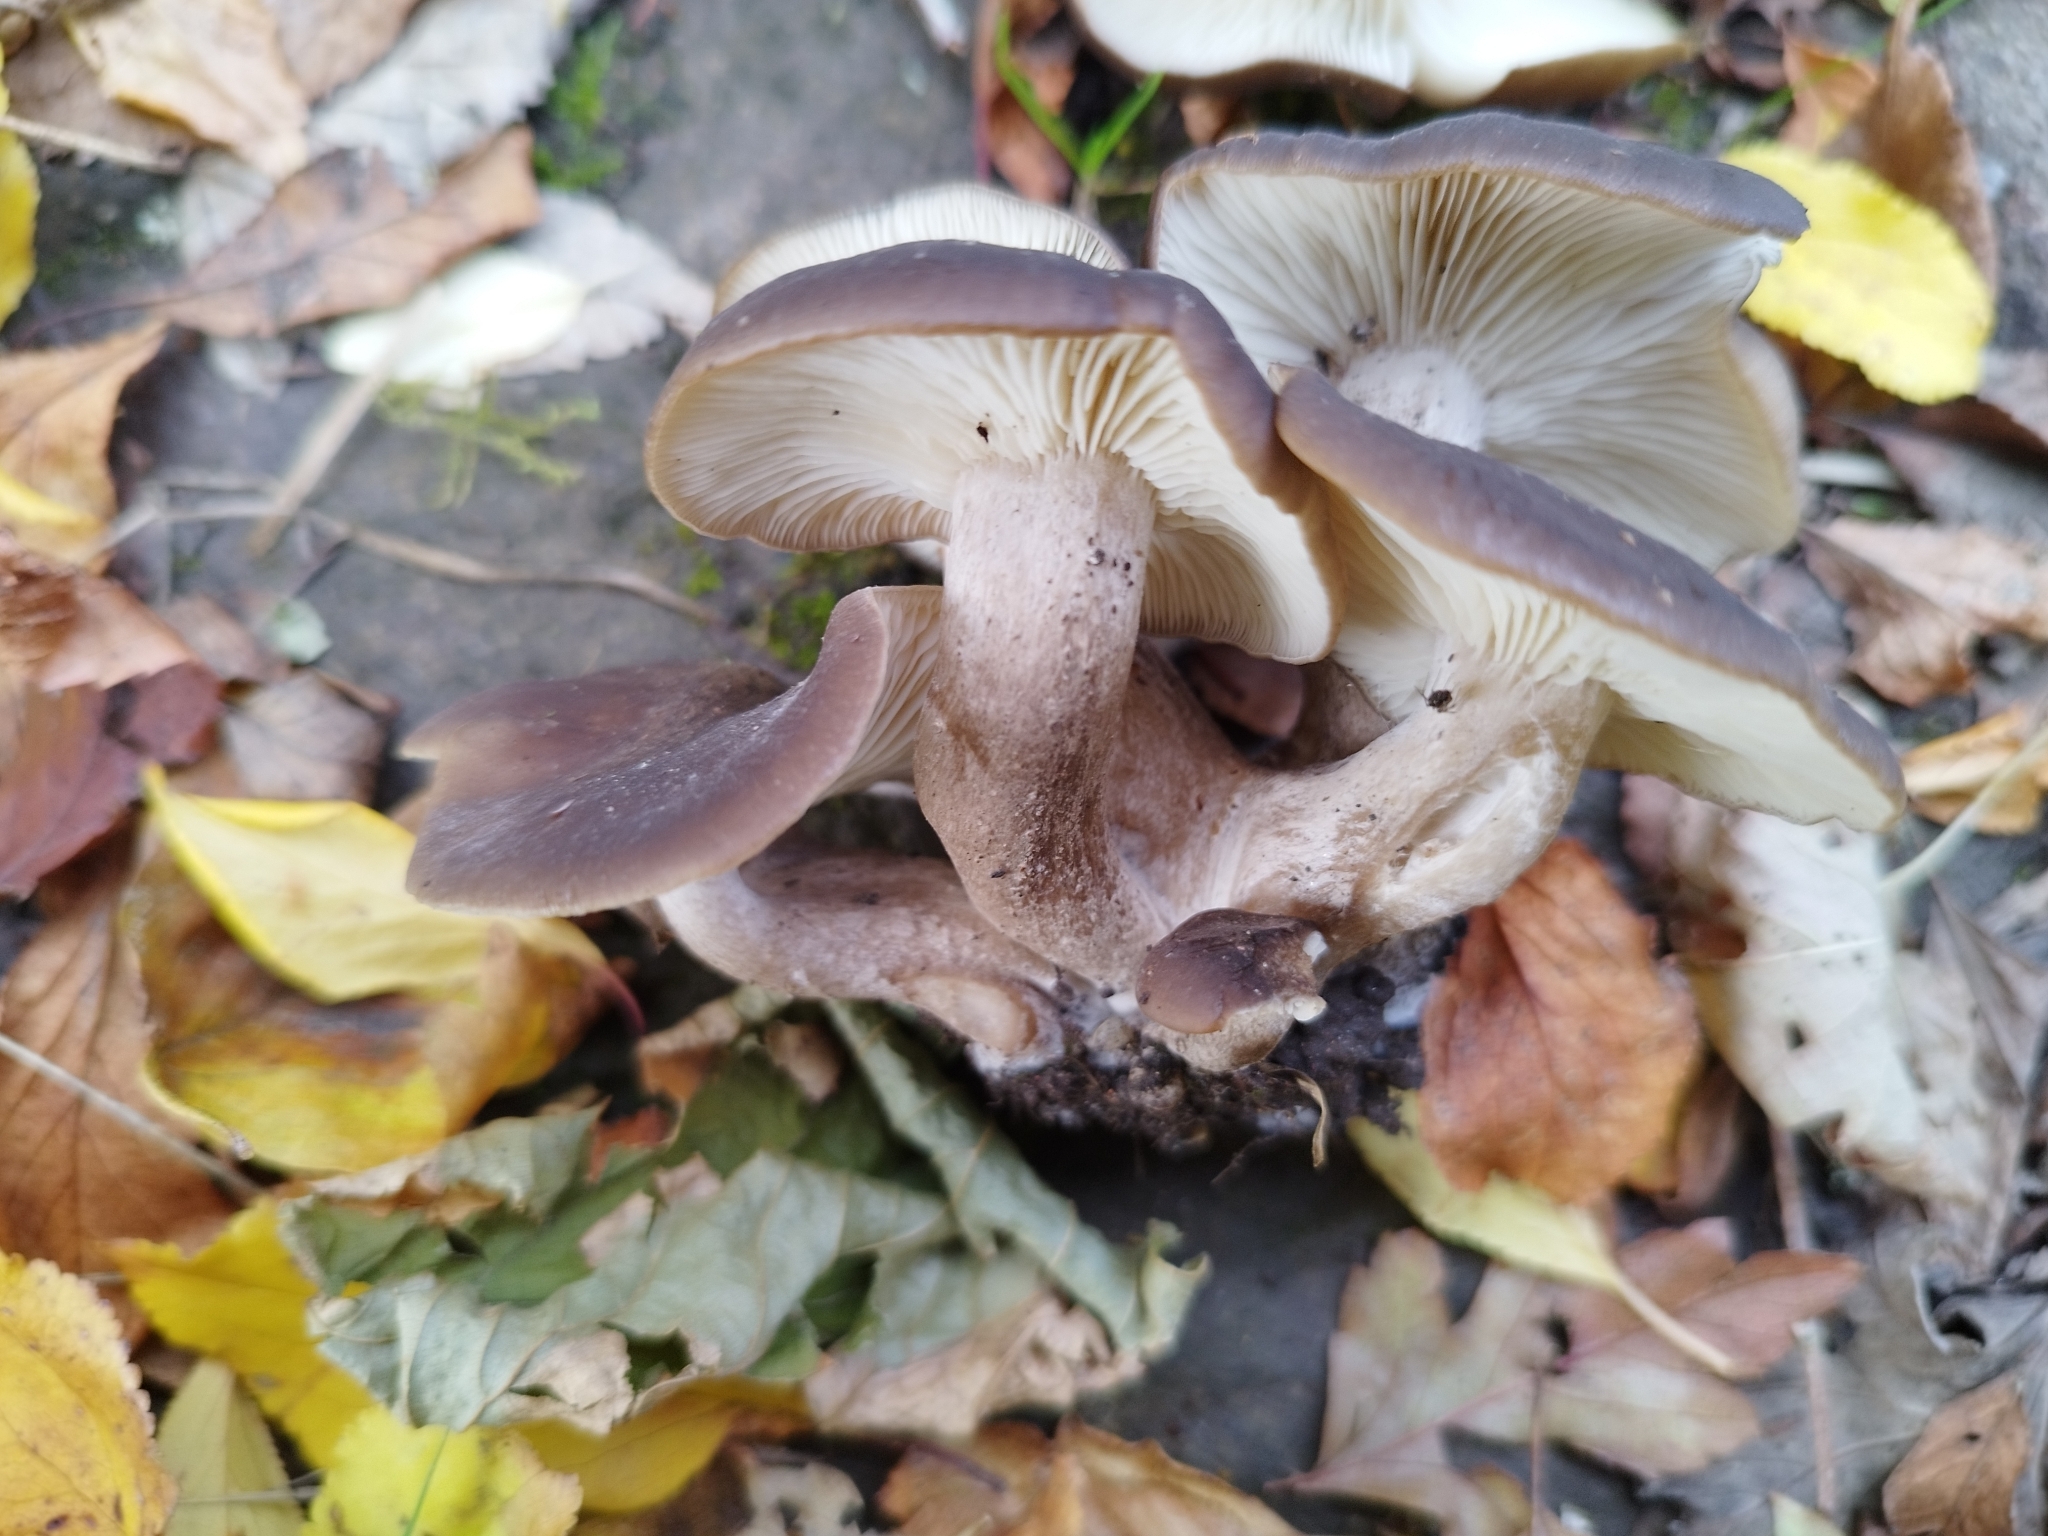
Kępkowiec jasnobrązowy to okazały grzyb kapeluszowy, rosnący w gęstych kępach liczących nawet kilkadziesiąt zrośniętych trzonów. Kapelusz ma średnicę od 4 do 12 cm, barwę popielatą po orzechowobrązową oraz falisty brzeg. Blaszki są gęste, początkowo białawe, z wiekiem kremowe do brązowawych, lecz nigdy różowe. Miąższ jest biały, chrząstkowaty i wybitnie sprężysty, o łagodnym smaku oraz delikatnym aromacie. To ceniony, bardzo smaczny i obficie plonujący jesienny grzyb jadalny.
Rozpoznawanie, siedlisko i najważniejsze różnice.
Grzybiarz
Budowa owocnika
- Typ budowy
- Owocnik ma kapelusz i trzon.
Kapelusz
- Kształt
- Kapelusz może mieć kształt półkulisty, wypukły, płaski lub wklęsły; u młodych owocników — spłaszczony.
- Powierzchnia
- Powierzchnia kapelusza może być lśniąca lub sucha.
- Ukształtowanie powierzchni
- Powierzchnia kapelusza może być gładka, a u starych owocników może być fałdowana.
- Pokrycie
- Powierzchnia kapelusza jest oprószona.
- Kolor
- Kapelusz może być brązowy, ochrowobrązowy, szarobrązowy, szary lub jasnobrązowy.
- Ułożenie brzegu
- U młodych owocników brzeg kapelusza jest podwinięty.
- Profil krawędzi
- Profil krawędzi jest ostry.
U starych owocników profil krawędzi jest ostry. - Średnica
- Kapelusz może mieć średnicę od 30 do 150 milimetrów.
- Środek
- Kapelusz ma garbek.
- Skórka
- W wilgotnych warunkach skórka kapelusza jest częściowo ściągalna.
Spód kapelusza
- Typ
- Hymenofor ma budowę blaszkową.
Blaszki przy trzonie
- Połączenie z trzonem
- Blaszki są przyrośnięte do trzonu.
- Szerokość przyrośnięcia hymenoforu
- Blaszki są szeroko przyrośnięte.
- Zbieganie hymenoforu po trzonie
- Blaszki zbiegają ząbkiem po trzonie.
- Barwa
- Hymenofor może być biały, brązowawy, kremowy, szary, szarobrązowy lub białawy.
- Barwa blaszek po uszkodzeniu
- Po uszkodzeniu lub nacisku blaszki nie zmieniają barwy.
- Ostrze
- Ostrze blaszki jest karbowane.
- Zróżnicowanie długości blaszek
- Blaszki mają nierówne długości.
- Rozstaw
- Blaszki są gęste.
- Szerokość
- Wysokość blaszek może wynosić do 10 milimetrów.
- Blaszeczki
- Stwierdzono obecność blaszeczek.
Trzon i podstawa
- Położenie
- Trzon ma położenie centralne.
- Kształt
- Trzon może mieć kształt walcowaty, a u młodych owocników może mieć kształt maczugowaty.
- Podstawa
- Podstawa trzonu może być walcowata lub zgrubiała, a u młodych owocników może być maczugowata.
- Kolor
- Trzon może być białawy, brązowawy lub szarawy, u młodych owocników może być białawy, a u dojrzałych owocników może być szarawy.
- Ukształtowanie powierzchni
- Powierzchnia trzonu jest gładka.
- Pokrycie powierzchni
- Powierzchnia trzonu może być włóknista. U młodych owocników może być oprószona. U dojrzałych owocników może być naga lub włóknista.
- Wnętrze
- Trzon jest pełny.
- Konsystencja
- Trzon jest włóknisty.
- Długość
- Trzon może mieć długość od 45 do 200 milimetrów.
- Grubość
- Trzon może mieć grubość od 8 do 20 milimetrów.
- Wygięcie osi
- Trzon jest wygięty.
Miąższ
- Barwa
- Miąższ może być biały lub białawy.
- Twardość i zwartość
- Miąższ jest zwarty.
- Smak
- Ma słaby smak.
- Sprężystość
- Miąższ, również w kapeluszu, jest sprężysty.
- Typ konsystencji miąższu
- W kapeluszu miąższ jest gumowaty.
- Zapach
- Zapach miąższu może być słaby, mączny; może być przyjemny; może być nieprzyjemny; może być niewyróżniający się; może być niewyczuwalny.
- Grubość
- Miąższ jest cienki.
Gdzie i kiedy rośnie
- Siedlisko
- Grzyb może występować w lasach liściastych, w lasach iglastych, na przydrożach, w parkach i ogrodach, w lasach mieszanych lub na łąkach.
- Podłoże
- Bezpośrednim podłożem wzrostu może być gleba, drewno zagrzebane lub ściółka.
- Sposób wyrastania
- Owocniki mogą wyrastać kępkami, szeregami, kręgami, pojedynczo, w grupach lub być zrośnięte.
- Owocnikowanie
- Owocniki mogą pojawiać się od września do listopada.
- Obszar występowania
- Potwierdzono występowanie w Polsce.
Jadalność i kuchnia
- Jadalność
- Jadalny
Prawo
- Ochrona
- W Polsce nie podlega ochronie gatunkowej.
- Handel
- W Polsce nie jest dopuszczony do obrotu handlowego ani do produkcji przetworów grzybowych.
Z czym można pomylić
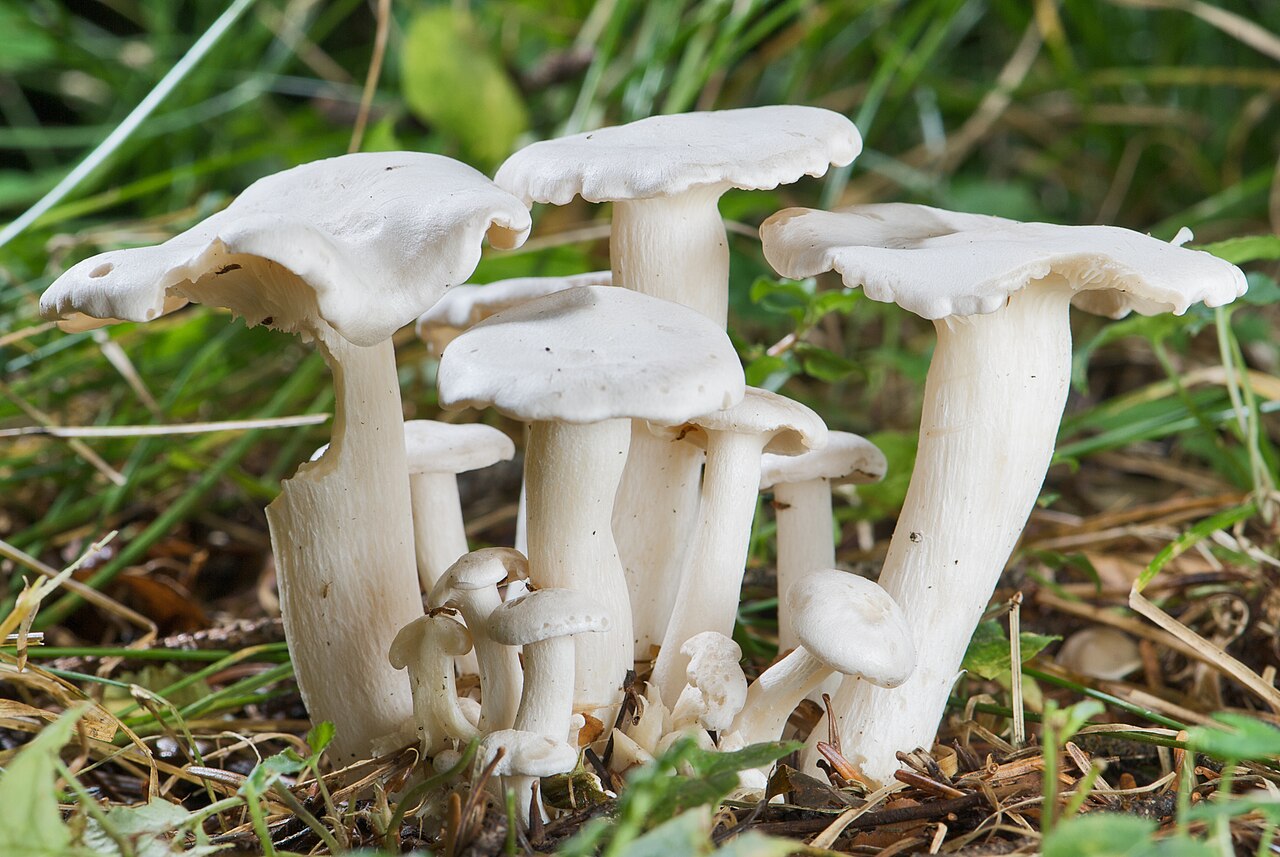
Bernie · Public domain
Wersja 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian. Domena publiczna zadeklarowana na stronie pliku Commons; metadane nie podają osobnego adresu licencji.
Źródło zdjęcia · Public domainLyophyllum connatum
Najważniejsze różnice
Lyophyllum connatum (kępkowiec białawy) różni się od L. decastes czysto białym lub kredowobiałym zabarwieniem całego owocnika oraz elipsoidalnymi zarodnikami o wymiarach 6–7 × 3,5–4 µm.
Clitocybe nebularis
Najważniejsze różnice
Clitocybe nebularis (lejkówka szarawa) bywa wymieniana jako gatunek o powierzchownie zbliżonym wyglądzie, różni się jednak miękkim, kruchym miąższem, odmiennym układem i barwą blaszek, specyficznym zapachem oraz szarawym odcieniem kapelusza i zazwyczaj pojedynczym lub luźnym wzrostem.
FAQ
Czy kępkowiec jasnobrązowy jest grzybem jadalnym?
Tak, jest cenionym grzybem jadalnym o zwartej, przyjemnie chrupkiej konsystencji miąższu.
W jaki sposób rosną jego owocniki?
Wyrastają w gęstych, zbitych kępach, z wieloma trzonami zrośniętymi ze sobą u podstawy.
Czy można go spożywać w stanie surowym?
Nie, na surowo jest ciężkostrawny i wymaga uprzedniej obróbki termicznej.
Gdzie najczęściej można go spotkać w naturze?
Występuje w lasach, parkach, na poboczach dróg i w ogrodach na bogatym w próchnicę podłożu.
W jakim okresie w roku pojawiają się owocniki?
Główny okres owocnikowania przypada na jesień, od września do listopada.
Jak ten gatunek jest postrzegany w Japonii?
Jako „hatake-shimeji” cieszy się ogromnym uznaniem kulinarnym i kulturowym.
Jaką konsystencję wykazuje miąższ po ugotowaniu?
Pozostaje jędrny, sprężysty i delikatnie chrupki, nie rozgotowując się na papkę.
Jakie wymagania sanitarne wiążą się z jego zbiorem?
Wymaga odcięcia zbitej podstawy trzonów z powodu nagromadzonej ziemi i piasku.
Czy kępkowiec był wykorzystywany do barwienia tkanin?
Tak, sporadycznie używano wywarów z owocników do uzyskiwania barw beżowych i jasnobrązowych.
Co symbolizował ten grzyb w europejskim folklorze?
Z powodu zrośniętych kęp symbolizował jedność rodziny, wspólnotę oraz płodność.
Miłośnik
Nazwy i historia
- Obowiązująca nazwa krajowa
- Kępkowiec jasnobrązowy
- Obowiązująca nazwa taksonomiczna
- Lyophyllum decastes
Obserwacje w domu
Wysyp zarodników
- Potrzebne materiały
- świeży, dojrzały kapelusz, kartka papieru, szklanka lub miseczka, woda
- Czas
- 2–24 h
- Wykonanie
- Połóż kapelusz spodem na papierze.
- Dodaj kroplę wody na wierzch i przykryj.
- Po 2–24 godzinach podnieś kapelusz i obejrzyj osad.
Czego szukać
- Barwa wysypu
- Wysyp zarodników ma barwę białą.
Pod mikroskopem
- Potrzebne materiały
- mikroskop świetlny, szkiełko podstawowe i nakrywkowe, igła, woda, zarodniki z wysypu
- Wykonanie
- Przenieś igłą odrobinę wysypu na szkiełko.
- Dodaj kroplę wody, przykryj szkiełkiem i obejrzyj zarodniki.
Czego szukać
- Kształt zarodnika
- Zarodnik ma kształt niemal kulisty.
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką.
- Wymiary
- Zarodnik może mieć długość od 5,5 do 7,1 mikrometra i szerokość od 4,4 do 6,5 mikrometra.
- Średnie wymiary zarodnika — materiał 1
- Średnia długość: 6,5 mikrometra; średnia szerokość: 5,1 mikrometra.
Wymiary porównuj po skalibrowaniu skali mikroskopu.
Ekologia i rozmieszczenie
- Drzewa liściaste w otoczeniu
- W otoczeniu rosną buki, dęby, brzoza i klon jesionolistny.
- Drzewa iglaste w otoczeniu
- W otoczeniu rosną sosny i jodły.
- Krzewy w otoczeniu
- W otoczeniu rośnie bez czarny.
Zastosowania pozakulinarne
W tradycyjnych praktykach wiejskich kępkowiec jasnobrązowy znajdował zastosowanie w wytwarzaniu kompostów i wzbogacaniu gleb ogrodowych po zakończeniu owocnikowania, z racji zdolności szybkiej mineralizacji resztek roślinnych w glebie oraz wspierania żyzności podłoża pod uprawy przydomowe. Ponadto w dawnych, historycznych technikach barwierskich wywary ze starych, mocno dojrzałych i ciemniejących owocników były okazjonalnie używane do nadawania naturalnym włóknom lnianym i wełnianym stonowanych, trwałych odcieni beżu, piaskowej szarości oraz jasnego brązu w lokalnym rękodziele tekstylnym.
Historia i kultura
W kulturze Dalekiego Wschodu, a zwłaszcza w Japonii, kępkowiec jasnobrązowy – znany jako hatake-shimeji – cieszy się od stuleci wyjątkowym statusem. W tradycyjnej japońskiej hierarchii kulinarnej funkcjonuje powszechnie cytowane przysłowie: „matsutake dla zapachu, shimeji dla smaku” (matsutake wa nioi, shimeji wa aji). Przysłowie to ugruntowało pozycję kępkowców jako symbolu doskonałości smakowej i harmonii w diecie, stawiając ich walory smakowe wyżej nawet od luksusowej gąski sosnowej. W dawnych japońskich wierzeniach i lokalnych tradycjach zbieranie tych grzybów zbiegało się z jesiennymi obrzędami dziękczynnymi za plony ziemi, a sam grzyb uchodził za dar urodzajnych pól i miedz.
W tradycji europejskiej losy tego gatunku wyglądały zupełnie inaczej. Przez stulecia kępkowiec był traktowany przez ludność wiejską z dużą ostrożnością, a w wielu regionach Europy Środkowej i Zachodniej uchodził za grzyb podejrzany lub wręcz niepożądany. Nietypowy, kępiasty wzrost ze zrośniętymi trzonami budził w kulturze ludowej zabobonny lęk, a brak jednoznacznej pozycji w regionalnych zielnikach sprawił, że kępkowiec rzadko pojawiał się w folklorze jako motyw pozytywny. Dopiero rozwój nowoczesnej mykologii w XIX i XX wieku oraz popularyzacja wiedzy przyrodniczej pozwoliły na przełamanie dawnych uprzedzeń w europejskich społecznościach grzybiarzy.
Jadalność i bezpieczeństwo
Kępkowiec jasnobrązowy jest cenionym grzybem jadalnym o wybitnych walorach konsumpcyjnych, jednak jego spożycie bezwzględnie wymaga dokładnej obróbki termicznej. Zjedzenie owocników w stanie surowym bądź niedogotowanym wiąże się z poważnym ryzykiem silnych zatruć żołądkowo-jelitowych, objawiających się nudnościami, bólami brzucha oraz wymiotami. Związki odpowiedzialne za te dolegliwości mają charakter termolabilny, dlatego właściwe gotowanie, duszenie lub smażenie całkowicie neutralizuje to zagrożenie i zapewnia bezpieczeństwo konsumpcji.
Miąższ kępkowca charakteryzuje się łagodnym, przyjemnym smakiem z subtelną orzechową nutą oraz wyrazistym, grzybowym aromatem. Jego cechą szczególną jest niezwykła jędrność i sprężystość – struktura kapeluszy pozostaje chrupka i zwarta nawet po długotrwałym procesie gotowania, co wyróżnia ten gatunek na tle wielu innych grzybów jadalnych.
Preferencje kulinarne wykazują wyraźne zróżnicowanie geograficzne. W Japonii oraz innych krajach wschodnioazjatyckich kępkowiec uchodzi za jeden z najbardziej pożądanych przysmaków, chętnie kupowany na targowiskach i uprawiany komercyjnie. W Europie Środkowo-Wschodniej, w tym w Polsce, cieszy się uznaniem koneserów ceniących jego chrupkość, podczas gdy w krajach anglosaskich pozostaje gatunkiem w dużej mierze niszowym i rzadko trafiającym na talerze.
Siedlisko i występowanie
Kępkowiec jasnobrązowy występuje w strefie umiarkowanej półkuli północnej, obejmując swym zasięgiem Europę, Azję oraz Amerykę Północną. W Europie Środkowej jest gatunkiem szeroko rozprzestrzenionym, choć w wyższych partiach górskich i w chłodniejszych rejonach północnych pojawia się znacznie rzadziej.
Gatunek ten jest saprotrofem rozwijającym się na glebach zasobnych w próchnicę, zwłaszcza w miejscach z zakopanym martwym drewnem, butwiejącymi korzeniami lub ściółką drzewną. Zasiedla lasy liściaste i mieszane (zwłaszcza w pobliżu dębów, buków i brzóz), a także tereny antropogeniczne: parki, ogrody, przydroża, pobocza leśnych duktów i zarośla.
Sezon owocnikowania kępkowca trwa od późnego lata do późnej jesieni, zazwyczaj od sierpnia do listopada. Szczyt pojawu przypada na wrzesień i październik. Przy łagodnej aurze owocniki trwają do pierwszych silniejszych mrozów, sporadycznie do początku grudnia. W cieplejszych rejonach Europy Południowej sezon przesuwa się na miesiące późnojesienne i wczesnozimowe, natomiast w chłodniejszym klimacie borealnym kończy się już w październiku.
Źródła
- Bocian 2017 — nowe stanowisko Lyophyllum decastes
- ČMS — Lyophyllum decastes
- Ellen Larsson, Henrik Sundberg 2011. Lyophyllum shimeji, a species associated with lichen pine forest in northern Fennoscandia. Mycoscience 52:289–295. DOI 10.1007/s10267-010-0104-1
- Marek Snowarski, Atlas grzybów Polski, Lyophyllum decastes; karta zmieniona 17.01.2023, strona wygenerowana 01.09.2026
Badacz
Jadalność i kuchnia
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jadalność
- Jadalny — źródło oznaczenia
ČMS — Lyophyllum decastes · Kuchyňské využití: Je jedlá — source author assessment; not a legal trade permission.
Nazwy naukowe i taksonomia
- Obowiązująca nazwa naukowa
Lyophyllum decastes
Nazwa naukowa gatunku to Lyophyllum decastes (Fr.) Singer, należący do rodziny kępkowcowatych (Lyophyllaceae). W bazie NCBI odnotowano bazonim Agaricus decastes Fr. 1818 oraz datę kombinacji Singera z 1949 roku, natomiast źródła ČMS podają rok 1951. Oficjalną polską nazwą atlasową jest kępkowiec jasnobrązowy, a w dawniejszym piśmiennictwie funkcjonowało zwyczajowe określenie podblaszek gromadny.
[29] [28] [34] [24] [31] [32] [23] [35]W piśmiennictwie mykologicznym odnotowano liczne historyczne nazwy i kombinacje: Agaricus aggregatus Schaeff. 1774, Agaricus decastes Fr. 1818, Agaricus decastes var. decastes Fr. 1818, Clitocybe aggregata (Schaeff.) Gillet 1874, Clitocybe decastes (Fr.) P. Kumm. 1871, Lyophyllum aggregatum (Schaeff.) Kühner 1938 oraz Tricholoma aggregatum (Schaeff.) Ricken 1915. Zestawienia te obejmują zarówno ujęcia oparte na epitecie decastes, jak i nazwy z epitetem aggregatum. W bazach MycoBank i GBIF odmiennie ujmowane są relacje taksonomiczne względem Lyophyllum fumosum.
[29] [28] [34] [24] [31] [32] [23] [35]Zakres taksonu i ograniczenia oznaczania
Nazwa Lyophyllum decastes bywa stosowana zarówno w odniesieniu do wąsko ujmowanego gatunku, jak i do szerszego kompleksu pokrewnych kępkowców. Analizy sekwencji ITS i LSU przeprowadzone przez Larsson i Sundberga w 2011 r. wyodrębniły cztery klady: L. decastes, L. fumosum, L. shimeji oraz nienazwany Lyophyllum sp. Część kolekcji z porostowych borów sosnowych północnej Fennoskandii, oznaczanych wcześniej jako L. decastes, okazała się należeć do L. shimeji, natomiast badany szczep handlowy uplasował się w odrębnym kladzie Lyophyllum sp. Oznaczenie na podstawie cech makroskopowych i nazwy handlowej różni się zakresem od identyfikacji genetycznej.
[29] [28] [34] [24] [31] [32] [23] [35]Badania filogenetyczne sekcji Difformia rodzaju Lyophyllum przeprowadzone w 2011 r. objęły sekwencjonowanie pełnego regionu ITS oraz około 900 bp z rejonu 5′ LSU dla 47 taksonów (w tym Lepista nebularis jako grupy zewnętrznej). W macierzy o długości 1758 pozycji (1573 po wyłączeniu pozycji niejednoznacznych) zidentyfikowano 162 znaki parsymonijnie informatywne. Analiza dała 24 725 drzew o długości 463 kroków (CI = 0,7387, RI = 0,8762; zdeponowane w TreeBASE pod nr 10823). Wartości wsparcia bootstrap wyniosły 100% dla kladu L. decastes, 95% dla L. shimeji, 59% dla L. fumosum oraz 100% dla Lyophyllum sp. W obrębie kladu L. decastes wyróżniono dwa podklady (europejski i japoński) o poparciu 89%.
[34] [24] [31] [28] [23] [35] [29] [33] [22]- Zakres ujęcia taksonomicznego
Katalogowy wpis Lyophyllum decastes (Fr.) Singer zgodny z dokładnym zaakceptowanym dopasowaniem GBIF i polskim atlasem. Zachowano granice materiału publikacji i kolekcji. Szersza grupa opisana przez Kuo i historyczny kompleks L.decastes/L.fumosum/L.loricatum nie stanowią niezależnego dowodu cechy ściśle wydzielonej linii; historyczne nazwy i materiały pozostają przy źródłach.
[9] [34]
Dokumentacja źródłowa
Ustalenia źródła: Atlas podaje kombinację Lyophyllum decastes (Fr.) Singer 1951, rodzinę Lyophyllaceae oraz synonimy Agaricus decastes Fr. 1818 i Lyophyllum aggregatum (Schaeff.) Kühner 1938. W części o pomyłkach mówi, że według przytoczonych informacji L. fumosum ma zrośnięte podstawy trzonów, nieco mniejsze owocniki i zapach stęchły; zarazem zaznacza, że oba imiona mogą oznaczać jeden gatunek. Źródło więc zachowuje nierozstrzygnięcie, nie ustala synonimii.
[6]Ustalenia źródła: Polski atlas podaje nazwę Lyophyllum decastes (Fr.) Singer, kępkowiec jasnobrązowy, podblaszek gromadny oraz rodzinę Lyophyllaceae. W uwadze wymienia L. aggregatum jako nazwę powiązaną i relacjonuje rozbieżność rejestrów: checklisty i MycoBank mają oddzielać L. fumosum, a GBIF traktować je jako synonim L. decastes; rejestrów nie weryfikowano ponownie. Dla L. loricatum autor wskazuje zwartą skórkę kapelusza chrzęszczącą przy przełamaniu.
[10]Ustalenia źródła: Kuo wyraźnie zaznacza, że nie wie, ile gatunków kryje się pod nazwą Lyophyllum decastes, i celowo traktuje opis jako grupę potencjalnych gatunków. Pisze, że cechy polowe, takie jak kolor kapelusza, nie muszą wskazywać granic genetycznych, po czym podaje klucz do czterech taksonów grupy. Treść tej karty nie jest więc dowodem dla wąskiego europejskiego L. decastes sensu stricto ani rozstrzygnięciem granic taksonu.
[19]Ustalenia źródła: Bibliografia Reinharda Agerera zawiera pracę Agerera i Beenkina z 1998 r. „Lyophyllum decastes (Fr.) Sing. + Quercus robur L.”, Descriptions of Ectomycorrhizae 3:43–47. Jest to dowód istnienia i tytułu publikacji. Zachowany wpis nie zawiera jej opisu anatomicznego, pomiarów korzeni ani protokołu identyfikacji; nie przypisano mu takich wyników.
[22]Ustalenia źródła: Notatka z pełnego odczytu strony zapisuje niemieckie nazwy Brauner Rasling, Büschelrasling, Geselliger Rasling i Ockerbrauner Büschelrasling. Arnold podaje zarodniki elipsoidalne 6–7 × 3–4 µm, co różni się od kulistawych wymiarów w polskim atlasie, atlasie ČMS i u Kuo. Zachowany zapis nie podaje liczebności pomiarów ani metody. Rozbieżność należy pozostawić jawnie jako sprzeczne opisy źródeł; sama nie wskazuje, który pomiar jest błędny.
[23]Ustalenia źródła: Notatka ČMS zapisuje Lyophyllum decastes (Fr.) Singer 1951 i czeską nazwę líha nahloučená wraz z listą synonimów atlasu. Zaznacza rozbieżność roku kombinacji: 1951 w atlasie wobec 1949 w NCBI. Karta mówi, że L. fumosum sprawia problematyczną pomyłkę i że dostępne informacje mogą wskazywać na jeden gatunek pod obiema nazwami, ale nie rozstrzyga tej kwestii. Jest to zachowana niepewność źródła, nie nowa decyzja nomenklaturalna.
[24]Ustalenia źródła: Larsson i Sundberg (2011) rozdzielili kompleks Lyophyllum na podstawie ITS i około 900 par zasad 5′ LSU. Klad oznaczony L. decastes miał wsparcie bootstrap 100%, a podklady materiału liściastego ze Szwecji i Norwegii oraz iglastego z Japonii po 89%. Jeden komercyjny szczep sprzedawany jako L. decastes znalazł się w odrębnym Lyophyllum sp. Ekologii L. shimeji nie przypisano L. decastes; autorzy nie rozstrzygnęli wszystkich granic nazw, w tym L. loricatum.
[29]Ustalenia źródła: Dydaktyczna karta Uniwersytetu Claude Bernard Lyon 1 stosuje przy Lyophyllum decastes francuskie nazwy Tricholome agrégé oraz Tricholome en touffes. Są to nazwy zwyczajowe podane przez to źródło, bez nowej decyzji o synonimii naukowej lub tożsamości odrębnych linii kompleksu.
[31]Ustalenia źródła: Zachowany odczyt NCBI podaje Lyophyllum decastes (Fr.) Singer 1949, basionim Agaricus decastes Fr. 1818, rodzinę Lyophyllaceae oraz angielską nazwę fried chicken mushroom. NCBI zastrzega, że nie jest autorytetem nomenklaturalnym. Notatka nie zawiera własnego odczytu Index Fungorum, MycoBank ani pierwodruku kombinacji, zatem rozbieżność 1949 wobec 1951 w atlasie ČMS pozostaje nierozstrzygnięta.
[32]Diagnostyka laboratoryjna
Dane ustrukturyzowane
Podstawki
Zarodniki
- Średni iloraz długości i szerokości zarodnika
- Średni iloraz długości i szerokości zarodnika wynosi 1,3. [10]
- Średnica zarodnika
- Średnica zarodnika może wynosić od 5 do 7 mikrometrów. [4]
- Długość zarodnika
- Zarodnik może mieć długość od 5,5 do 7,1 mikrometra. [10]
- Iloraz długości i szerokości zarodnika
- Iloraz długości i szerokości zarodnika może wynosić od 1,1 do 1,5. [10]
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką. [4] [10]
- Szerokość zarodnika
- Zarodnik może mieć szerokość od 4,4 do 6,5 mikrometra. [10]
Materiał i metody badań
Dane mikroskopowe — źródło i ograniczenia
Materiał: Zarodniki kolekcji GRej 362388, zebranej 5 października 2022 roku w okolicy Krzynek; źródło deklaruje eksykat.
Zakres odczytu: Pełny tekst.
Ograniczenia: Zachowany dokument jest odczytem pełnej karty przez Chrome, nie oryginalnym HTML. Źródło nie podaje liczby pomiarów ani medium. Średnia 1,3 jest podana wprost w źródle; nie obliczono jej z granic zakresu i nie jest zakresem średnich kolekcji.
[10]- Wyniki źródłowe — Długość zarodnika
- 5,8–7,1 µm [10]
5,5–7 µm [10]
Materiał badania: Okaz zgłoszenia GRej 362388, 5.10.2022, okolice Krzynek, zachodniopomorskie; eksykat zadeklarowany. Średnia długość zarodnika w badanym materiale wynosi 6,5 mikrometra. [10] - Wyniki źródłowe — Szerokość zarodnika
- Materiał badania: Okaz zgłoszenia GRej 362388, 5.10.2022, okolice Krzynek, zachodniopomorskie; eksykat zadeklarowany. Średnia szerokość zarodnika w badanym materiale wynosi 5,1 mikrometra. [10]
5–6,5 µm [10]
4,4–5,7 µm [10]
Metody i zapisy źródłowe — Owocniki zebrane 23.12.2015 przy Mirosławcu i Gniewoszu; eksykaty w prywatnym zielniku autora.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Opis metody w źródle: Mikroskop OLYMPUS BX53; ponowne uwodnienie wcześniej zasuszonych okazów. Środek rehydratacji nie został podany.
Liczba sterygm jednej podstawki — zapis źródłowy: „Podstawki z 4sterygmami.” [4]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Własne wyniki autora s.33: podstawki 35–45 × 8–10 µm,4sterygmy.” [4]
Kształt podstawki — zapis źródłowy: „Podstawki opisane jako maczugowate.” [4]
Średnica zarodnika — zapis źródłowy: „Zarodniki prawie kuliste; źródłowa średnica 5–7 µm.” [4]
Kształt zarodnika — zapis źródłowy: „Zarodniki opisane jako prawie kuliste.” [4]
Powierzchnia zarodnika — zapis źródłowy: „Powierzchnia zarodników opisana jako gładka.” [4]
Metody i zapisy źródłowe — Okaz zgłoszenia GRej 362388, 5.10.2022, okolice Krzynek, zachodniopomorskie; eksykat zadeklarowany.
Długość zarodnika — zapis źródłowy: „GRej 362388: pierwsza oś 5,8–7,1 µm; druga 4,4–5,7 µm.” [10]
Długość zarodnika — zapis źródłowy: „GRej 362388: podana średnia długości zarodnika: 6,5 µm.” [10]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „GRej 362388: Q 1,1–1,5; źródłowa średnia 1,3.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej 362388: druga oś 4,4–5,7 µm; pierwsza 5,8–7,1 µm.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej 362388: podana średnia szerokości zarodnika: 5,1 µm.” [10]
Metody i zapisy źródłowe — Ogólny opis mikroskopowy w Atlasie grzybów Polski; nie wskazano konkretnej kolekcji ani wykonawcy pomiarów.
Długość zarodnika — zapis źródłowy: „Ogólny atlas Polski: 5,5–7 × 5–6,5 µm; pierwsza oś.” [10]
Kształt zarodnika — zapis źródłowy: „Ogólny atlas Polski: zarodniki kulistawe.” [10]
Powierzchnia zarodnika — zapis źródłowy: „Ogólny atlas Polski: zarodniki gładkie.” [10]
Szerokość zarodnika — zapis źródłowy: „Ogólny atlas Polski: 5,5–7 × 5–6,5 µm; druga oś.” [10]
Indywidualne kolekcje GRej
Zakres odczytu: Otworzono wszystkie 14 stron GRej powiązanych z atlasem. Dane 13 kolekcji opisanych w źródle jako Lyophyllum decastes zapisano osobno z datą, lokalizacją i eksykatem, jeżeli je podano. Zachowano źródłowe statusy oznaczenia; odczyt rejestru nie jest nowym niezależnym oznaczeniem.
Granice przypisania: Wpisy o niepewnym oznaczeniu pozostają w zachowanym odczycie źródła, bez przypisania ich jako kolekcji gatunku. Dat pojedynczych znalezisk nie przekształcono w sezon, a sąsiedztwa drzew w partnerstwo mikoryzowe.
[10]Własna kolekcja i cechy materiału z publikacji z 2017 roku
Materiał i metoda: Bocian opisał kolekcję zebraną 23 grudnia 2015 r. w okolicy Mirosławca i Gniewosza, w kwadracie ATPOL Bb 93. Oznaczenie oparto na świeżych cechach makroskopowych oraz zarodnikach i podstawkach. Zasuszone owocniki rehydratowano i badano mikroskopem świetlnym OLYMPUS BX53. Materiał trafił do prywatnego zielnika autora; numeru eksykatu nie podano.
Cechy opisanej kolekcji: W opisie tej kolekcji szerokość blaszek stanowiła 85% grubości kapelusza. Trzony rozszerzały się ku podstawie i zrastały. Miąższ opisano jako jednorodny, białawy, a tuż pod skórką kapelusza lekko szary. Proporcji 85% nie przeliczono na milimetry ani nie utożsamiono z szerokością blaszek całego gatunku.
[4]Dokumentacja źródłowa
Ustalenia źródła: Tabela porównawcza Bociana zestawia L. decastes i L. fumosum oraz cechy cytowane z kilku opracowań. Wyniki własnej kolekcji odróżniono od danych Gumińskiej, Breitenbacha i Fungi Nordica oznaczonych osobnymi przypisami. Przykładowo własne podstawki mają 35–45 × 8–10 µm; szerszy zestaw porównawczy obejmuje również 32–47 µm. Nie scalono tych zakresów w jeden pomiar tej samej próby.
[4]Ustalenia źródła: Jako rzadszy podobny gatunek źródło wymienia L. loricatum z ciemniejszym, chrzęstnym kapeluszem, nieprzyjemnym zapachem, gorzkawym smakiem i większymi zarodnikami. Karta podaje nagłówki trzech czeskich znalezisk: 0071-2022-0208 z 30.09.2022 w Karlovarským kraju, 0071-2020-0260 z 28.09.2020 w Jihočeským kraju i 0066-2017-0153 z 07.10.2017 w Středočeským kraju. Teksty przypisano Tejkalowi i Bartůškowi, obrazy Tejkalowi.
[6]Ustalenia źródła: Odczyt obejmuje 14 wpisów GRej. Zgłoszenia oznaczone jako L. decastes obejmują m.in. lubuskie, łódzkie, podkarpackie i zachodniopomorskie; wpis 319170 z Lublina jest tylko Lyophyllum sp. (L. decastes?) i nie potwierdza gatunku. Pojedyncze daty z 6 maja 2014 i 17 czerwca 2022 nie wyznaczają zwykłego sezonu. Osobny okaz: jsb.161102-02112016-8JS, leg. Jacek Soboń, det. Błażej Gierczyk, okolice Radomiłowic na Pogórzu Kaczawskim.
[10]Ustalenia źródła: Dla grupy Kuo podaje zarodniki 4–6 µm, kuliste lub prawie kuliste, gładkie i nieamyloidalne, brak cystyd na powierzchni i ostrzu blaszek oraz ziarna syderofilne w podstawkach po acetokarminie; sprzążki są obecne. Wymienione zbiory Herb. Kuo to 09110406, 01130516, 09110514, 05140601 i 11110701 (WW), bez stanów i liczebności pomiarów. Klucz odróżnia m.in. L. loricatum i L. fumosum.
[19]Ustalenia źródła: Klucz Kuo rozdziela cztery elementy grupy Lyophyllum decastes i zestawia m.in. L. loricatum oraz L. fumosum. Autor zastrzega, że liczba rzeczywistych gatunków w grupie pozostaje nieznana i że barwa kapelusza może nie odpowiadać granicom genetycznym. Nie przeniesiono grupowych porównań na diagnozę europejskiego L. decastes sensu stricto.
[19]Ustalenia źródła: Notatka z pełnego odczytu strony zapisuje niemieckie nazwy Brauner Rasling, Büschelrasling, Geselliger Rasling i Ockerbrauner Büschelrasling. Arnold podaje zarodniki elipsoidalne 6–7 × 3–4 µm, co różni się od kulistawych wymiarów w polskim atlasie, atlasie ČMS i u Kuo. Zachowany zapis nie podaje liczebności pomiarów ani metody. Rozbieżność należy pozostawić jawnie jako sprzeczne opisy źródeł; sama nie wskazuje, który pomiar jest błędny.
[23]Ustalenia źródła: Notatka ČMS zapisuje Lyophyllum decastes (Fr.) Singer 1951 i czeską nazwę líha nahloučená wraz z listą synonimów atlasu. Zaznacza rozbieżność roku kombinacji: 1951 w atlasie wobec 1949 w NCBI. Karta mówi, że L. fumosum sprawia problematyczną pomyłkę i że dostępne informacje mogą wskazywać na jeden gatunek pod obiema nazwami, ale nie rozstrzyga tej kwestii. Jest to zachowana niepewność źródła, nie nowa decyzja nomenklaturalna.
[24]Ustalenia źródła: Ghaleb i współautorzy (2025) otrzymali surowy preparat LDP z komercyjnych owocników z Yunnan Mei Food Co. Ltd.; nie podali voucheru ani oznaczenia DNA materiału. Ekstrakcja wodą 1:40 przy 70 °C trwała 3 godziny i była powtarzana; zastosowano odproteinowanie TCA, strącanie etanolem i liofilizację. Badano 32 samce BALB/c w czterech grupach po osiem: kontrolnej, DSS i dwóch grupach LDP 200 lub 400 mg/kg. DSS 3% podawano przez siedem dni, a LDP dożołądkowo przez 14 dni. Materiał i model doświadczalny nie są dowodem skuteczności spożywania grzyba u ludzi.
[27]Ustalenia źródła: Kuo explicite mówi, że opis obejmuje Lyophyllum decastes species group, ponieważ pod tą nazwą może kryć się kilka gatunków; zaznacza, że cechy terenowe nie rozstrzygają tego problemu. Jego historyczny klucz rozdziela cztery elementy grupy. Opisu nie należy zawężać do europejskiego L. decastes sensu stricto ani przedstawiać jako rewizji molekularnej. Notatka z pełnego odczytu zapisuje biały, jędrny miąższ, który nie zmienia barwy na powietrzu, brak obu osłon, kuliste lub prawie kuliste zarodniki 4–6 µm, gładkie i nieamyloidalne, brak cystyd, ziarna syderofilne w podstawkach po acetokarminie oraz obecne sprzążki. Wymieniono pięć kodów Herb. Kuo, lecz bez stanów USA i N pomiarów. Zakres informacji pozostaje grupowy.
[28]Ustalenia źródła: Materiał docelowego kladu Larssona i Sundberga obejmuje siedem wpisów: Brunsson 19920924/HM572544, Andersson 19901016/HM572546, Bengtsson 19910929/HM572545 i LAS06-152/HM572547 ze Szwecji; Aase 19821031/HM572543 z Norwegii; Sundberg 20091007 a/HM572548 i b/HM572549 z Japonii. Osobno pozostają porównawcze Aase 19811014/HM572550 oraz komercyjny szczep/HM572551 z kladu Lyophyllum sp. Analiza obejmowała 47 taksonów i 1573 pozycje; protokół PCR odesłano do innej pracy.
[29]Ustalenia źródła: Liang i współautorzy (2025) opisują w odczytanym fragmencie metod kulturę z Shandong Academy of Agricultural Sciences, początkowo na PDA w 25 °C przez siedem dni. Podłoże suche obejmuje trociny 32%, kolby kukurydzy 21%, otręby pszenne 17%, mąkę kukurydzianą 15%, okrywy soi 7%, łuski bawełny 5% i śrutę sojową 3%. Po kolonizacji i zabiegu scratching owocnikowanie prowadzono w 18 °C. Abstrakt podaje maksima aminokwasów i polisacharydów w stadium dojrzałym; nie odczytano pełnych metod oznaczeń, liczebności ani podstawy masy.
[30]Uzupełnione metody oznaczeń
Ustalenia źródła: Nowy odczyt tekstu wydawcy Lianga 2025 podaje stadium PR w 11. dniu, YO w 16. dniu i MA w 25. dniu po zabiegu scratching. Wolne aminokwasy oznaczano po ekstrakcji 100 mg liofilizowanej próbki w wodzie, metodą HPLC z detekcją MS. Polisacharydy ekstrahowano z 1 g suchego proszku w 42 mL wody przez 2,5 godziny w 65 °C; po oczyszczeniu oznaczano metodą fenolowo-siarkową z krzywą glukozy przy 490 nm. Statystyka podaje co najmniej trzy niezależne pomiary i mean±SE, ale opis słupków błędu mówi o SD. Rozbieżności tej nie zamieniono w wybrany dowolnie typ niepewności.
[30]Dokumentacja źródłowa
Ustalenia źródła: Karta Lyon stosuje nazwy Tricholome agrégé i Tricholome en touffes. Opisuje świeży miąższ jako gumowato elastyczny i trudny do rozerwania, a po wyschnięciu jako bardziej kruchy; blaszki są cienkie i gęste oraz nie zmieniają barwy po potarciu. Jako możliwe podłoże wymienia zakopane drewno. Zachowana notatka nie podaje okazu, miejsca pomiaru ani N; wymiar trzonu 4–8 à 0,8–2 cm pozostawiono literalnie.
[31]Ustalenia źródła: Atlas polski nazywa takson kępkowcem jasnobrązowym i podblaszką gromadnym, podaje rodzinę Lyophyllaceae oraz jesień jako sezon bez dokładnych miesięcy. Występowanie opisuje zwykle w zrośniętych grupach; wymienia lasy liściaste i iglaste, trawiaste miejsca, pobocza, parki, ogrody, humus, pokrzywy i inne rośliny azotolubne, wykopy oraz ziemne piwnice. Autor odnotowuje trudność odróżniania brązowych kępkowców; MycoBank nie został niezależnie sprawdzony. Rekord 256144 opisuje L. decastes var. decastes z Krosna, zebrany przez Annę Hreczkę 06.05.2014 i mikroskopowo potwierdzony przez W. Czerniawskiego; notatka mówi, że okaz znajduje się u Czerniawskiego. Wpis 291766 podaje voucher BGF0006585. Wpisy 362388 i 372968 deklarują voucher bez identyfikatora. Nie dopisano numerów ani miejsc depozytu, których źródło nie podaje.
[34]Ustalenia źródła: Polski atlas odnotowuje trudności odróżniania brązowych kępkowców. Zapis obejmuje źródłowe oznaczenia L. decastes, natomiast wpis GRej 319170 brzmi Lyophyllum sp. (L. decastes?) i pozostaje niepewny. Nie włączono go do potwierdzonych stanowisk gatunku ani nie uznano pierwotnych oznaczeń wszystkich zbiorów za niezależnie zrewidowane.
[34]Ustalenia źródła: Xu i współautorzy (2023) badali przemysłową kulturę LRG-d 1 i monokariony LRG-d 1-1, LRG-d 1-2 oraz LRG-d 1-5. Genom LRG-d 1-1 złożony z odczytów Nanopore i Illumina miał 47,7 Mb w 15 kontigach, N90 2,08 Mb i 14 499 przewidywanych modeli genów. Zidentyfikowano 541 genów kodujących 577 CAZymów. W proteomice czterech podłoży wykryto 1071 białek, w tym 182 CAZymy i 258 enzymów wydzielanych. PDB porównywano z PDB z otrębami, łuską bawełny lub trocinami; zwiększona produkcja dwóch lakaz i reduktazy chinonowej dotyczy tych kultur, a nie składu dzikich owocników.
[35]Ustalenia źródła: Polski atlas opisuje kapelusz jako czasem niemal biały, a trzon jako pełny i elastyczny. Określenie elastyczności w tym zdaniu dotyczy trzonu; źródło odrębnie opisuje miąższ. Nie wskazano wieku dla niemal białej barwy kapelusza.
[10]Ustalenia źródła: Atlas ČMS opisuje blaszki jako szeroko przyrośnięte, czasem zbiegające krótkim ząbkiem. W zapachu wymienia czasem lekką mysią nutę. Smak określa jako łagodny, mączny, czasem lekko rzodkiewkowy. Każde z tych określeń zachowuje przypisaną mu część owocnika lub cechę oraz źródłowe warunkowanie.
[6]Ustalenia źródła: Strona AWL opisuje trzon jako brudnobiały, ciemniejący od podstawy. Odczyt nie wskazuje końcowej barwy zmiany ani dokładnego wieku owocnika. Tę informację przypięto do nowego fragmentu strony, ponieważ zachowana starsza notatka obejmowała wyłącznie inne cechy.
[3]Weryfikacja występowania — zakres i ograniczenia
Materiał: Stanowisko koło Mirosławca i Gniewosza oraz zestawienie wcześniejszych stanowisk w Polsce (Bocian 2017, s. 32–38).
Zakres odczytu: Pełny tekst.
Data przeglądu: 28.10.2026.
[4]Zakres opracowania
Przed ukończeniem rekord wymaga uzupełnienia lub rozliczenia.
- Nowe źródła wymagają rozliczenia informacji napotkanych podczas przeglądu.
Podstawa prawna i zakres oceny
Przepisy dla lokalizacji: Polska
Dokumentacja źródłowa
Ustalenia źródła: Nie znaleziono gatunku ani sprawdzonych kombinacji: Lyophyllum decastes, Lyophyllum aggregatum, Agaricus decastes, Clitocybe decastes, Agaricus aggregatus, Clitocybe aggregata, Tricholoma aggregatum, kępkowiec jasnobrązowy, podblaszek gromadny, w pełnych wykazach makrogrzybów ochrony ścisłej i częściowej. Nie ustala to ogólnego prawa zbioru. Czerwona lista i ochrona gatunkowa są odrębne. Nie sprawdzono warunków konkretnego terenu ani prawa innych krajów. Zachowana notatka odczytu odnosi się do tego samego aktu, którego oryginalny PDF pozostaje w bazie; nie jest niezależną podstawą prawną.
[25]Ustalenia źródła: Nie znaleziono gatunku ani sprawdzonych kombinacji w pełnych 72 pozycjach załącznika nr 1. Jadalność lub wpis innego gatunku nie stanowi pozytywnej podstawy obrotu tym taksonem. To podstawa przedmiotowa i ogólne wymagania aktu, bez dowodu atestu danej partii, uprawnień sprzedawcy lub spełnienia wszystkich warunków. Zachowana notatka odczytu odnosi się do tego samego aktu, którego oryginalny PDF pozostaje w bazie; nie jest niezależną podstawą prawną.
[26]Najważniejsze substancje i ich działanie
W 2023 r. Xu i współpracownicy opublikowali wyniki sekwencjonowania genomu przemysłowego szczepu dikariotycznego LRG-d1 oraz trzech monokarionów (LRG-d1-1, LRG-d1-2, LRG-d1-5) przy użyciu platform Nanopore PromethION i Illumina NovaSeq 6000 PE150:
| Parametr | LRG-d1-1 | LRG-d1-5 | LRG-d1-2 |
|---|---|---|---|
| Wielkość złożenia | 47,72 Mb | 42,98 Mb | 40,04 Mb |
| Liczba kontigów | 15 | 18 | 2400 |
| Najdłuższy kontig | 6,62 Mb | 5,16 Mb | 16,686 kb |
| N50 | 3,92 Mb | 3,53 Mb | 90,6 kb |
| N90 | 2,08 Mb | 1,28 Mb | 9774 bp |
| Zawartość GC | 50,25% | 50,38% | 50,35% |
| Platforma sekwencjonowania | Nanopore + Illumina | Nanopore + Illumina | Illumina |
Złożenia oparte na długich odczytach pozwoliły uzyskać niemal chromosomową ciągłość sekwencji dla monokarionów 1 i 5.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Anotacja genomu monokarionu LRG-d1-1 ujawniła 14 499 genów kodujących białka o łącznej długości 23,95 Mb (50,2% genomu). Średnia długość genu wynosiła 1652,21 bp, eksonu 264,52 bp (średnio 6,25 eksonu na gen), a intronu 74 bp. Test BUSCO wykazał kompletność na poziomie 95,7% (725 z 758 ortologów). Sekwencje powtarzalne stanowiły 25,67% genomu (12,25 Mb), z dominacją retrotranspozonów Gypsy/DIRS1 (10,67%). Analiza filogenomiczna 346 ortologów pojedynczej kopii oszacowała czas rozejścia się linii Lyophyllaceae i Agaricaceae na około 52,34 mln lat temu, a oddzielenie od Hypsizygus marmoreus, Termitomyces i L. atratum odpowiednio na 45,53, 40,51 i 37,32 mln lat temu. Wskaźnik tożsamości nukleotydowej fastANI przekraczał 92% pomiędzy szczepami L. decastes.
[34] [24] [31] [28] [23] [35] [29] [33] [22]W genomie LRG-d1-1 zidentyfikowano 541 genów z 577 przypisaniami enzymów aktywnych węglowodanowo (CAZymes), w tym 253 hydrolazy glikozydowe (GH, głównie rodziny GH5, GH18, GH3, GH43), 77 transferaz glikozylowych (GT), 24 liazy polisacharydowe (PL), 40 esteraz węglowodanowych (CE), 154 enzymy pomocnicze (AA) oraz 29 domen wiążących węglowodany (CBM). Anotowano 25 lakaz i 7 peroksydaz klasy II. W badaniach sekretomu na podłożach lignocelulozowych (z dodatkiem otrąb pszennych, łusek bawełnianych i trocin) zidentyfikowano 1071 wydzielanych białek, w tym 182 CAZymes. Wykryto 17 lakaz i 3 peroksydazy; enzymy MDBLdec1_07135 i MDBLdec1_09727 należały do najsilniej indukowanych lakaz, peroksydazy MDBLdec1_05507 i MDBLdec1_11977 pojawiały się wyłącznie w obecności lignocelulozy, a reduktaza chinonowa AA6 MDBLdec1_12289 wykazywała wzrost obfitości od 12,4- do 27,7-krotnego.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Z hodowanych owocników wyizolowano surowy ekstrakt polisacharydowy LDP o wydajności 18% m/m, zawierający 1,4% białka oraz 59 mg/mL węglowodanów w przeliczeniu na D-glukozę. Chromatografia żelowa (GPC) wykazała heterogenną masę cząsteczkową Mw 5,59 × 10⁶ Da oraz Mn 2,47 × 10⁶ Da. Analiza składu monosacharydowego metodą HPLC-UV po derywatyzacji PMP ujawniła następujące składowe:
| Cukier | Zawartość (mg/kg ekstraktu) | Udział (%) | Czas retencji (min) |
|---|---|---|---|
| Glukoza | 154 961,5 | 67,03 | 34,17 |
| Galaktoza | 36 376,92 | 15,73 | 35,97 |
| Mannoza | 23 434,62 | 10,14 | 23,73 |
| Fukoza | 9153,85 | 3,96 | 39,66 |
| Ryboza | 5984,62 | 2,59 | 27,52 |
| Kwas galakturonowy | 1276,92 | 0,55 | 29,94 |
Działanie frakcji polisacharydowej LDP badano na mysim modelu wrzodziejącego zapalenia jelita grubego wywołanego 3% siarczanem dekstranu sodu (DSS) u samców myszy BALB/c (grupy po 8 osobników). Podawanie ekstraktu w dawkach 200 i 400 mg/kg mc. przez 14 dni istotnie łagodziło objawy kliniczne (indeks aktywności choroby DAI), zmniejszało spadek masy ciała oraz hamowało skracanie jelita grubego. Badania histopatologiczne i barwienia MUC2, PAS oraz Alcian Blue wykazały zachowanie struktury nabłonka, ochronę komórek kubkowych i warstwy śluzowej, a także podwyższoną ekspresję białek połączeń ścisłych (occludyny i ZO-1).
[34] [24] [31] [28] [23] [35] [29] [33] [22]W badaniach tkanki jelita myszy podawanie LDP zmniejszało poziom mieloperoksydazy (MPO) oraz stężenia prozapalnych cytokin mierzonych testem ELISA (TNF-α, IL-1β, IL-6), a także podnosiło poziom cytokin przeciwzapalnych IL-4 i TGF-β, wykazując rozbieżną istotność obu dawek dla TNF-α (spadek istotny tylko przy wysokiej dawce), IL-1β oraz IL-4. W badaniu qPCR podawanie LDP hamowało ekspresję mRNA TNF-α oraz zwiększało ekspresję mRNA IL-10, przy czym wzrost ekspresji mRNA IL-10 był istotny statystycznie przy wysokiej dawce (400 mg/kg mc.), a nieistotny przy dawce niskiej. Wpływ ten był zależny od dawki, z silniejszym efektem protekcyjnym przy dawce 400 mg/kg mc.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Analiza sekwencjonowania genu 16S rRNA (region V3–V4) mikrobioty kałowej myszy wykazała, że frakcja LDP przeciwdziałała dysbiozie wywołanej DSS. Ekstrakt podnosił wskaźniki różnorodności alfa (Shannon, Chao1, ACE) i obniżał indeks Simpsona. W analizach taksonomicznych obserwowano odbudowę liczebności typów Bacillota, Bacteroidota i Actinomycetota przy ograniczeniu udziału Pseudomonadota, a na poziomie rodzin i rodzajów – wzrost względnej obfitości Lachnospiraceae, Muribaculaceae oraz Lactobacillus (w tym Lactobacillus johnsonii) przy jednoczesnym spadku potencjalnie chorobotwórczych Enterobacteriaceae i Escherichia-Shigella.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Analizy metabolomiczne i transkryptomiczne hodowanych owocników wykazały dynamiczne zmiany biochemiczne w trakcie rozwoju. W stadium dojrzałym odnotowano maksymalne stężenie wolnych aminokwasów wynoszące 45 107,39 µg/g oraz polisacharydów na poziomie 13,66 mg/g.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Z owocników Lyophyllum decastes opisywano wcześniej struktury polisacharydowe zawierające rozgałęzienia beta-(1→3)/(1→6)-glukanowe, ugrupowania alfa-(1→4)-glukozowe i beta-(1→6)-galaktozowe, a także swoistą lektynę wiążącą alfa-galaktozę. Z wyciągów wodnych wyizolowano również 6-hydroksy-L-tryptofan wykazujący aktywność hamującą tyrozynazę pieczarki dwuzarodnikowej (Agaricus bisporus).
[34] [24] [31] [28] [23] [35] [29] [33] [22]Dane sekwencyjne szczepów LRG-d1 zdeponowano w bazach NCBI GenBank (CP107701–CP107715 dla LRG-d1-1; JAOWSY000000000 dla LRG-d1-5), Genome Warehouse (GWHBOVF00000000, GWHBOVC00000000, GWHBOVD00000000) oraz proteomicznej OMIX002140. Analiza genetyczna ujawniła tetrapolarny, heterotaliczny system kojarzenia: lokus A z genami homeodomenowymi zlokalizowano na chromosomie 01, a lokus B z genami receptorów feromonów na chromosomie 10, przypisując monokarionowi LRG-d1-1 profil alleliczny A1B1, a monokarionom LRG-d1-2 i LRG-d1-5 układ A2B2.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Wyniki analityczne
Odrębne źródłowe wyniki analityczne
- protein
- Wynik oznaczenia wynosi 1,4 %. Podstawa masy nie została podana w źródle. Metoda według źródła: Source-reported protein determination in crude LDP; basis not stated.[27] [1]
- total carbohydrates as D-glucose equivalent
- Wynik oznaczenia wynosi 59 mg/mL. Podstawa masy nie została podana w źródle. Metoda według źródła: Source-reported carbohydrate determination; solution concentration, not mass of fruitbody.[27] [1]
- LDP weight-average molecular mass Mw
- Wynik oznaczenia wynosi 5590000 Da. Podstawa masy nie została podana w źródle. Metoda według źródła: Agilent/RI,PL aquagel-OH Mixed-H300×7.5mm8µm;woda1mL/min30°C;standardy dekstranu.[27] [1]
- LDP number-average molecular mass Mn
- Wynik oznaczenia wynosi 2470000 Da. Podstawa masy nie została podana w źródle. Metoda według źródła: Agilent/RI,PL aquagel-OH Mixed-H300×7.5mm8µm;woda1mL/min30°C;standardy dekstranu.[27] [1]
- Glucose
- Wynik oznaczenia wynosi 154961,5 miligrama na kilogram. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Glucose
- Wynik oznaczenia wynosi 67,02823 %. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Galactose
- Wynik oznaczenia wynosi 36376,92 miligrama na kilogram. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Galactose
- Wynik oznaczenia wynosi 15,73475 %. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Mannose
- Wynik oznaczenia wynosi 23434,62 miligrama na kilogram. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Mannose
- Wynik oznaczenia wynosi 10,13659 %. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Fucose
- Wynik oznaczenia wynosi 9153,85 miligrama na kilogram. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Fucose
- Wynik oznaczenia wynosi 3,959475 %. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Ribose
- Wynik oznaczenia wynosi 5984,62 miligrama na kilogram. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Ribose
- Wynik oznaczenia wynosi 2,588633 %. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
- Galacturonic acid
- Wynik oznaczenia wynosi 1276,92 miligrama na kilogram. Podstawa masy nie została podana w źródle. Metoda według źródła: 50mg/2MTFA120°C6h;metanol/NaOH/PMP70°C1h;3xchloroform;0.22µm;Agilent1260InfinityII/XDB-C18 4.6×250mm5µm;UV254nm;0.1Mbufor fosforanowy pH6.7:ACN82:18,1mL/min30°C,20µL.[27] [1]
Odrębne źródłowe wyniki analityczne
- total amino acids
- Wynik oznaczenia wynosi 45107,39 mikrograma na gram. Podstawa masy nie została podana w źródle. Statystyka: średnia. Metoda według źródła: Free amino acids:100mg freeze-dried sample in10mL water, ultrasound30min, dichloromethane,0.22µm filtration, HPLC UltiMate3000/C18-HypersilGold with MS.[30] [2]
- polysaccharides
- Wynik oznaczenia wynosi 13,66 mg/g. Podstawa masy nie została podana w źródle. Statystyka: średnia. Metoda według źródła: Dried powder1g with42mL water,65°C2.5h; ethanol precipitation,Sevag deproteinization,3500Da dialysis,lyophilization; phenol-sulfuric acid/glucose calibration at490nm.[30] [2]
Model przedkliniczny i zakres wyników
Ustalenia źródła: Wyniki Ghaleba rozdzielono według oznaczenia i dawki. Dla IL-10 mRNA niska dawka względem DSS nie była istotna, a wysoka miała p < 0,001. Dla TNF-α w ELISA niska dawka nie była istotna, a wysoka miała p < 0,01; nie jest to to samo oznaczenie co TNF-α mRNA. Dla IL-4 w ELISA odpowiednio podano brak istotności i p < 0,01. MPO oznaczano immunologicznie, nie osobną kinetyką enzymu. Liczby OTU wynosiły NC 2831, DSS 1863, LDPL 2420 i LDPH 3081. Źródło zawiera rozbieżności chronologii, platformy 16S, zestawu izolacji i progów gwiazdek; zachowano je bez ujednolicania.
[27]Wyniki stadium dojrzałego
Ustalenia źródła: Liang 2025 podaje dla dojrzałego stadium MA 45 107,39 µg/g aminokwasów oraz 13,66 mg/g polisacharydów. Oba maksima są zapisane w starszym odczycie abstraktu i w nowym odczycie tekstu wydawcy. Stadium MA oznacza zbiór w 25. dniu po zabiegu scratching. Nie jest to wynik dzikiej populacji, a zapis metod i niepewności zachowuje odrębne ograniczenia publikacji.
[30]Badania ekologiczne
Bibliograficzny opis mikoryzy z dębem
Agerer i Beenken 1998: Bibliografia Reinharda Agerera wymienia opis Lyophyllum decastes z Quercus robur w Descriptions of Ectomycorrhizae 3, s. 43–47. Odczytany materiał jest wpisem bibliograficznym autora i nie obejmuje tych pięciu stron. Nie ustala zatem szczegółów kolekcji ani zastosowanej metody.
[22]Podłoże jednego stanowiska z 2015 roku
Lokalne warunki: Stanowisko miało charakter ruderalny; wcześniej składowano tam gruz i inne odpady nieorganiczne. Gleba była gliniasta, z cienką warstwą liściastej ściółki. Owocniki rosły na ziemi. Jest to opis tego stanowiska, bez przypisania gatunkowi ogólnej preferencji gliny ani uznania warstwy ściółki za bezpośrednie podłoże owocnikowania.
[4]Dokumentacja źródłowa
Ustalenia źródła: Bocian (2017) relacjonuje literaturowy okres owocnikowania od września do późnej jesieni, a własną kolekcję znalazł 23 grudnia 2015 r. w okolicy Mirosławca i Gniewosza. Data grudniowa jest datą konkretnego zbioru, a nie dopisanym miesiącem zwykłego sezonu. „Późnej jesieni” nie zamieniono na dokładny dzień ani nie użyto pojedynczego znaleziska do rozszerzenia atlasowego zakresu.
[4]Ustalenia źródła: Karta ČMS podaje owocnikowanie od sierpnia do listopada oraz występowanie rozproszone, zwykle w kępach, czasem obfitych. Wymienia pniaki, korzenie drzew, ściółkę i resztki drewna zakrytego w glebie, a także lasy, ogrody i pobocza dróg. Są to ogólne dane czeskiej karty atlasowej; nie opisują polskich stanowisk ani nie dowodzą relacji mikoryzowej z wymienionymi drzewami.
[6]Ustalenia źródła: Atlas określa gatunek jako niezbyt częsty; owocniki zwykle rosną w zrośniętych grupach, czasem liczących kilkadziesiąt, w kręgach lub szeregach, rzadko pojedynczo. Sezon zapisano jako jesień bez dokładnych miesięcy. Wymienione środowiska obejmują lasy liściaste i iglaste, trawiaste miejsca, pobocza dróg, parki i ogrody, miejsca humusowe, pokrzywy oraz inne rośliny azotolubne, a także wykopy i ziemne piwnice.
[10]Ustalenia źródła: Polski atlas wymienia miejsca humusowe oraz pokrzywy i inne rośliny azotolubne w sąsiedztwie kępkowca. Opisuje lasy liściaste i iglaste, trawiaste miejsca, pobocza, parki, ogrody, wykopy i ziemne piwnice. Rośliny towarzyszące nie są przez to uznane za gospodarzy mikoryzowych. To zakres atlasu i wymienionych zgłoszeń, bez pomiaru zawartości azotu lub automatycznego przypisania każdemu stanowisku takiego samego podłoża.
[10]Ustalenia źródła: W obrębie grupy Kuo opisuje grzyb jako saprotroficzny, zwykle rosnący w gęstych skupieniach na naruszonej glebie przy drogach, ścieżkach i terenach zagospodarowanych, czasem w lesie. Podaje lato i jesień, a na zachodnim wybrzeżu Ameryki Północnej jesień–wiosnę; zasięg określa jako szeroki w Ameryce Północnej. Są to dane grupowe, nie polskie stanowiska ani dowód gospodarza.
[19]Ustalenia źródła: Tytuł pracy Agerera i Beenkina (1998) wymienia parę Lyophyllum decastes i Quercus robur. Pełnego opisu pierwotnego nie uzyskano. Relację zachowano jako temat bibliograficznie wskazanego opracowania, bez awansu tytułu do niezależnie odczytanego wyniku mikoryzy i bez dopisania danych mikrometrii, DNA lub konkretnego stanowiska.
[22]Ustalenia źródła: Atlas ČMS podaje sezon sierpień–listopad i występowanie rozproszone w Czechach. Wymienia lasy, ogrody, pobocza dróg, pniaki, korzenie, ściółkę oraz resztki drewna ukryte w glebie; owocniki zwykle występują w kępach, czasem obfitych. To ogólny opis karty, bez voucheru, liczby stanowisk ani szczegółowych danych lokalizacyjnych, więc nie należy traktować go jako listy czeskich znalezisk.
[24]Ustalenia źródła: W tabeli Larssona i Sundberga docelowe zbiory L. decastes ze Szwecji opisano jako trawnik, las bukowy, trawę przy drzewach liściastych i pryzmę kompostową; zbiór norweski jako pastwisko, a oba japońskie jako trawnik pod Pinus. Są to konteksty określonych sekwencjonowanych kolekcji, nie wykaz gospodarzy mikoryzowych. Komercyjnego szczepu należącego do Lyophyllum sp. nie wykorzystano jako dzikiego stanowiska L. decastes.
[29]Ustalenia źródła: Zachowane 14 rekordów GRej obejmuje m.in. Rogoziniec w lubuskiem (168165, 11.09.2008), Pawlikowice w łódzkiem (272798, 11.11.2015), Krosno w podkarpackiem (256144, 06.05.2014) oraz Krzynki w zachodniopomorskiem (362388, 05.10.2022). Wpis 319170 z Lublina ma oznaczenie Lyophyllum sp. (L. decastes?) i nie stanowi potwierdzenia gatunku. Sezonowe daty pojedynczych zgłoszeń nie zastępują jesiennego opisu atlasowego.
[34]Siedlisko i występowanie
Siedlisko, obszar i pora roku
W Czechach gatunek owocuje od sierpnia do listopada (VIII–XI). Występuje rozproszony, tworząc obfite zrosty owocników na żyznych siedliskach leśnych, w ogrodach, parkach i przy drogach, wyrastając na glebie bogatej w próchnicę, ściółce, wokół starych pniaków i korzeni oraz na zagrzebanym w ziemi drewnie.
[34] [24] [31] [28] [23] [35] [29] [33] [22]W Ameryce Północnej grzyb ten rośnie saprotroficznie na naruszonej glebie wzdłuż dróg, ścieżek i terenów zagospodarowanych oraz w lasach; pojawia się latem i jesienią, a na wybrzeżu pacyficznym od jesieni do wiosny. We Francji notowany jest od późnego lata do jesieni pod drzewami liściastymi, często na zagrzebanym drewnie. W Europie Środkowej owocuje głównie wiosną i jesienią w prześwietlonych lasach liściastych i mieszanych, zaroślach i parkach.
[34] [24] [31] [28] [23] [35] [29] [33] [22]W badaniach filogenetycznych Larsson i Sundberga (2011 r.) do ścisłego kladu Lyophyllum decastes przypisano siedem zsekwencjonowanych kolekcji z Europy i Japonii:
| Kolekcja | Kraj | Zielnik | Siedlisko | GenBank |
|---|---|---|---|---|
| Brunsson 19920924 | Szwecja | L | Trawnik | HM572544 |
| Andersson 19901016 | Szwecja | L | Las bukowy, głęboka gleba uprawna | HM572546 |
| Bengtsson 19910929 | Szwecja | L | Trawa w lesie liściastym | HM572545 |
| LAS 06-152 | Szwecja | GB | W sąsiedztwie pryzmy kompostowej (wcześniej jako L. loricatum) | HM572547 |
| Aase 19821031 | Norwegia | O | Pastwisko | HM572543 |
| Sundberg 20091007a | Japonia | GB | Trawnik pod sosną (Pinus) | HM572548 |
| Sundberg 20091007b | Japonia | GB | Trawnik pod sosną (Pinus) | HM572549 |
Kolekcje te potwierdzają występowanie gatunku zarówno w środowiskach leśnych, jak i antropogenicznych.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Biologia odżywiania kępkowca jasnobrązowego łączy cechy saprotrofii i zdolności do oddziaływań mikoryzowych. Morfologicznie i ekologicznie opisywany jest najczęściej jako saprotrof rozkładający materię organiczną i zagrzebane drewno, co potwierdza profil enzymatyczny szczepu LRG-d1 zdolnego do degradacji lignocelulozy. Równocześnie Pera i Alvarez wykazali tworzenie ektomikoryzy in vitro z Pinus pinaster, a Agerer i Beenken (1998 r.) opisali syntezę mikoryzową z dębem szypułkowym (Quercus robur). Występowanie w pobliżu dębów, buków czy sosen wskazuje na plastyczność ekologiczną, bez ścisłego przywiązania do jednego partnera mikoryzowego.
[34] [24] [31] [28] [23] [35] [29] [33] [22]Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Źródła |
|---|---|---|---|
| Czechy | Nie ustalono regionów w zapisanych danych | VIII–XI |
|
| Polska | Lubuskie / Lubusz — obszar podany w metadanych GBIF; województwo łódzkie; województwo podkarpackie; województwo zachodniopomorskie; Dolny Śląsk — zakres nazwany przez źródło | IX–XI |
|
Materiały
Kolekcje zielnikowe
- 1016* (zielnik własny)
Polska; 1 km na SW od Rogoziniec; 2008-09-11; Tomasz Ślusarczyk
[21]- Kolekcja
Polska; 2,5 km SE,Jasień,gm.Kobiele Wielkie; 2009-09-11; Jacek Nowicki
[21]- Kolekcja
Polska; 250 m SE od wsi Kotlewy (cz. wsi Żaby ), gm.Dobryszyce; 2012-10-25; Jacek Nowicki
[21]- Kolekcja
Polska; Krosno; 2014-05-06; Anna Hreczka
[21]- Kolekcja
Polska; Pawlikowice, 3 km na północny zachód od wsi; 2015-11-11; Beata Łyszkowska
[21]- BGF0006585
Polska; 2 km na NW od wsi Pawlikowice; 2016-10-04; Beata Łyszkowska
[21]- Kolekcja
Polska; Puszcza Bukowa, ok. 1,8 km na W od Kołbacza; 2016-08-29; Grazyna Domian
[21]- Kolekcja
Polska; Puszcza Bukowa, 1,9 km na N od Glinnej; 2018-09-29; Grazyna Domian
[21]- Kolekcja
Polska; 1,5 km SE od wsi Czyżów, gm.Kleszczów; 2018-09-29; Jacek Nowicki
[21]- Kolekcja
Polska; okolice Woli Niżnej; 2019-09-08; Anna Hreczka
[21]- Kolekcja
Polska; 0,5 km N od wsi Tomaszów; gm. Ładzice; 2022-06-17; Jacek Nowicki
[21]- Kolekcja
Polska; Równina Pyrzycka (Barlinecki PK, prop. rez. Buczyny Barlineckie), 1,9 km na W od miejscowości Krzynki; 2022-10-05; Grazyna Domian
[21]- Kolekcja
Polska; Wzgórza Bukowe (rez. Buczynowe Wąwozy), 2,5 km NW od Dobropola Gryfińskiego; 2023-10-03; Grazyna Domian
[21]- Zasuszone okazy L. decastes złożono w prywatnym zielniku autora publikacji; numeru nie podano.
Polska; Bezpośrednie sąsiedztwo miejscowości Mirosławiec i Gniewosz; kwadrat ATPOL Bb 93; 2015-12-23
[5]
Źródła
- lyophyllum_decastes.close58.24.exact-results
- lyophyllum_decastes.close58.27.exact-results
- W. Arnold, Brauner Rasling – Büschelrasling, awl.ch, aktualizacja 13.02.2026 (także [23])
- Bocian 2017 — nowe stanowisko Lyophyllum decastes
- nr47.bocian 2017.collection-record-extract
- ČMS — Lyophyllum decastes (także [24])
- nr47.eli.protection.20261028
- nr47.eli.trade.20261028
- Lyophyllum decastes — exact accepted taxon
- Marek Snowarski — Atlas grzybów Polski: Lyophyllum decastes
- Kuo — Lyophyllum decastes species group (także [28])
- nr47.legal.verification.20261028
- Dokładne dane kolekcji odczytanych w 14 stronach GRej — identyfikacja według źródła. (także [34])
- Reinhard Agerer, Ludwig Beenken 1998. Lyophyllum decastes (Fr.) Sing. + Quercus robur L. Descriptions of Ectomycorrhizae 3:43–47; bibliografia autora
- Rozporządzenie Ministra Środowiska 9.10.2014; Dz.U. 2014 poz. 1408
- Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U. 2026 poz. 258
- Eslam Ghaleb, Yamina Alioui, Jamalat Yazeed, Natheer Wahan, Ahmed Bashah, Ali AL-waqeerah, Aamna Atta, Yuxin Sun, Yi Xin, Liang Wang, Bin Feng, Weifeng Mao 2025. Lyophyllum decastes-derived polysaccharides alleviate DSS-induced colitis in mice by suppressing inflammation, enhancing intestinal barrier integrity, and restoring gut microbiota homeostasis. Frontiers in Pharmacology 16:1644325, 11.07.2025. DOI 10.3389/fphar.2025.1644325
- Ellen Larsson, Henrik Sundberg 2011. Lyophyllum shimeji, a species associated with lichen pine forest in northern Fennoscandia. Mycoscience 52:289–295. DOI 10.1007/s10267-010-0104-1
- Lidan Liang, Peijin Zhang, Jiayan Lu, Wenjin Han, Pengfei Ren, Yufei Lan, Qingji Wang, Zhuang Li, Li Meng 2025. Exploring the Mechanisms of Amino Acid and Bioactive Constituent Formation During Fruiting Body Development in Lyophyllum decastes by Metabolomic and Transcriptomic Analyses. Journal of Fungi 11(8): 586, 08.08.2025. DOI 10.3390/jof11080586; PMID 40863538
- Université Claude Bernard Lyon 1, Lyophyllum decastes, baza dydaktyczna grzybów
- NCBI Taxonomy, taxid 64660, Lyophyllum decastes
- Joan Pera, Isabel F. Alvarez 1995. Ectomycorrhizal fungi of Pinus pinaster. Mycorrhiza 5:193–200. DOI 10.1007/BF00203337
- Lili Xu, Wujie Yang, Tianmei Qiu, Xia Gao, Hongyong Zhang, Shuliang Zhang, Hui Cui, Lizhong Guo, Hailong Yu, Hao Yu 2023. Complete genome sequences and comparative secretomic analysis for the industrially cultivated edible mushroom Lyophyllum decastes reveals insights on evolution and lignocellulose degradation potential. Frontiers in Microbiology 14:1137162, 23.03.2023. DOI 10.3389/fmicb.2023.1137162